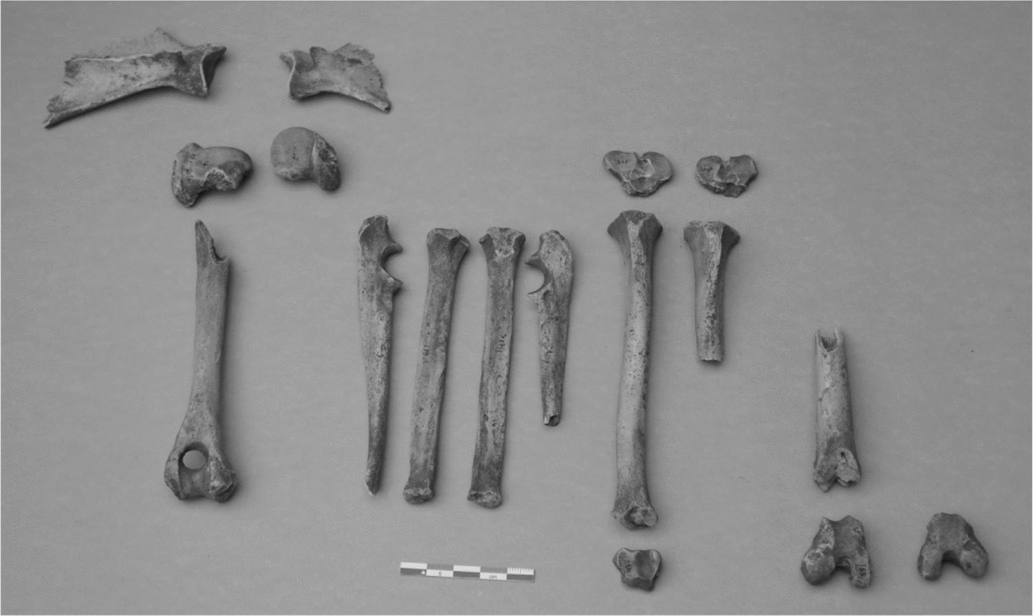


El perro doméstico (Canis lupus familiaris) es el producto de la primera experiencia humana de domesticación animal. Su origen nos retrotrae al Paleolítico superior o incluso antes (Galibert et al. Reference Galibert, Quignon, Hitte and Andre2011; Germonpré et al. Reference Germonpré, Sablin, Stevens, Hedges, Hofreiter, Stiller and Després2009; Morey Reference Morey2006; Thalmann et al. Reference Thalmann, Shapiro, Cui, Schuenemann, Sawyer, Greenfield, Germonpré, Sablin, López-Giráldez, Domingo-Roura, Napierala, Peter Uerpmann, Loponte, Acosta, Giemsch, Schmitz, Worthington, Buikstra, Druzhkova, Graphodatsky, Ovodov, Wahlberg, Freedman, Schweizer, Koepfli, Leonard, Meyer, Krause, Pääbo, Green and Wayne2013; Vilà et al. Reference Vilà, Savolainen, Maldonado, Amorim, Rice, Honeycutt, Crandall, Lunderberg and Wayne1997). Estudios morfológicos, conductuales y genéticos demuestran que el perro doméstico es una subespecie del lobo gris (Canis lupus). Los perros domésticos más antiguos, con cronologías de entre 15.000 y 36.000 años aP (Germonpré et al. Reference Germonpré, Sablin, Stevens, Hedges, Hofreiter, Stiller and Després2009; Thalmann et al. Reference Thalmann, Shapiro, Cui, Schuenemann, Sawyer, Greenfield, Germonpré, Sablin, López-Giráldez, Domingo-Roura, Napierala, Peter Uerpmann, Loponte, Acosta, Giemsch, Schmitz, Worthington, Buikstra, Druzhkova, Graphodatsky, Ovodov, Wahlberg, Freedman, Schweizer, Koepfli, Leonard, Meyer, Krause, Pääbo, Green and Wayne2013), proceden de Europa y del sudeste asiático y China (Boyko Reference Boyko2011; Ding et al. Reference Ding, Oskarsson, Ardalan, Angleby, Dahlgren, Tepeli, Kirkness, Savolainen and Zhang2012; Freedman et al. Reference Freedman, Gronau, Schweizer, Ortega-Del Vecchyo, Han, Silva, Galaverni, Fan, Marx, Lorente-Galdos, Beale, Ramirez, Hormozdiari, Alkan, Vilà, Squire, Geffen, Kusak, Boyko, Parker, Lee, Tadigotla, Siepel, Bustamante, Harkins, Nelson, Ostrander, Marques-Bonet, Wayne and Novembre2014; Leonard et al. Reference Leonard, Wayne and Wheeler2002; Morey Reference Morey1992; Thalmann et al. Reference Thalmann, Shapiro, Cui, Schuenemann, Sawyer, Greenfield, Germonpré, Sablin, López-Giráldez, Domingo-Roura, Napierala, Peter Uerpmann, Loponte, Acosta, Giemsch, Schmitz, Worthington, Buikstra, Druzhkova, Graphodatsky, Ovodov, Wahlberg, Freedman, Schweizer, Koepfli, Leonard, Meyer, Krause, Pääbo, Green and Wayne2013; Wang et al. Reference Wang, Zhai, Yang, Fan, Cao, Zhong, Wang, Liu, Wu, Cheng, Poyarkov, Poyarkov, Tang, Zhao, Gao, Lv, Irwin, Savolainen, Wu and Zhang2013). Análisis genéticos de especímenes americanos prehispánicos y euroasiáticos apoyan la hipótesis del origen común a partir del lobo gris y no una domesticación independiente en el Nuevo Mundo (Leonard et al. Reference Leonard, Wayne and Wheeler2002).
La domesticación del perro se ha asociado a la transformación de las estrategias de caza hacia técnicas a distancia con arco y flecha durante el Epipaleolítico. Esta nueva estrategia propició una intensificación de la relación entre los perros predomesticados y los cazadores, donde los primeros colaboraron rastreando y transportando las presas. El proceso se retroalimentó al fortalecerse y estrecharse los lazos entre perros y humanos (Galibert et al. Reference Galibert, Quignon, Hitte and Andre2011).
En el continente americano, los hallazgos más tempranos de perro doméstico proceden de Norteamérica. Estos corresponden a los sitios de Danger Cave, localizado en la cuenca del lago Bonneville, al oeste de Utah, de entre 9000 y 10.000 años de antigüedad (Grayson Reference Grayson1988), y Hinds Cave, en el sudoeste de Texas, de 9260 ± 170 años cal aP (Tito et al. Reference Tito, Belknap, Sobolik, Ingraham, Cleeland and Lewis2011:1).
El registro arqueológico americano muestra que el perro se utilizó tanto como defensa, compañía y auxiliar de caza, pero también como proveedor de carne, pelo y piel (Prates et al. Reference Prates, Prevosti and Berón2010; Tito et al. Reference Tito, Belknap, Sobolik, Ingraham, Cleeland and Lewis2011). Al mismo tiempo, el perro aparece asociado a diferentes tipos de economías y patrones de movilidad. Trabajos recientes que sistematizan la información disponible para Sudamérica muestran que los registros sudamericanos son claramente más tardíos, menos numerosos y están presentes en contextos arqueológicos menos diversos que los norteamericanos (Acosta y Loponte Reference Acosta and Loponte2011; Prates et al. Reference Prates, Prevosti and Berón2010). Los fechados más tempranos para Sudamérica se sitúan entre 7500 y 4500 años aP y la presencia del perro se vuelve más abundante a partir del 3500 aP (Prates et al. Reference Prates, Prevosti and Berón2010). La mayoría de los perros recuperados provienen de la zona andina (Ecuador, Perú, Bolivia, norte y centro de Chile y noroeste argentino) en contextos de sociedades horticultoras, con mayor grado de sedentarismo y complejidad social que las sociedades cazadoras-recolectoras (Acosta y Loponte Reference Acosta and Loponte2011; Acosta et al. Reference Acosta, Loponte and García Esponda2011; Prates et al. Reference Prates, Prevosti and Berón2010).
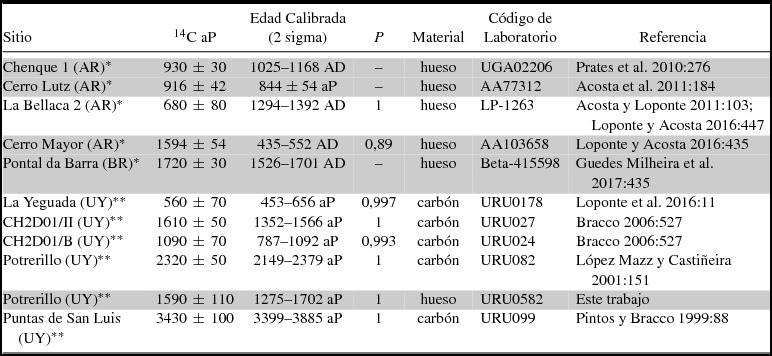
Fuera de la región andina, se recuperaron restos de perro doméstico en la Pampa (cuenca del río Paraná) y Patagonia septentrional argentina, el litoral oeste y el sudeste uruguayo y el sur de Brasil. Para las regiones de Pampa y Patagonia los registros de perro doméstico provienen en todos los casos de asentamientos de cazadores-recolectores. Se trata de ocho individuos en siete yacimientos, dos localizados en el norte de Patagonia (Chenque 1 y Angostura 1 [Prates et al. Reference Prates, Prevosti and Berón2010]) y los cinco restantes en los humedales del bajo Río Paraná (Anahí, Cerro Lutz, Cerro Mayor, La Argentina y La Bellaca 2 [Acosta y Loponte 2010; Acosta et al. Reference Acosta, Loponte and García Esponda2011; Loponte y Acosta Reference Loponte and Acosta2016]). Si se consideran únicamente los fechados taxón, en el caso de Patagonia el ejemplar de Chenque 1 se sitúa en 930 ± 30 años aP (Tabla 1; Prates el al. Reference Prates, Prevosti and Berón2010:276), mientras que en la región del río Paraná uno de los individuos recuperados en Cerro Lutz fue fechado en 916 ± 42 años aP (Tabla 1; Acosta et al. Reference Acosta, Loponte and García Esponda2011:184) y otro recuperado en Cerro Mayor en 1594 ± 59 años aP (Tabla 1; Loponte y Acosta Reference Loponte and Acosta2016:435). Al considerar los fechados de contexto, el rango cronológico de los perros domésticos prehispánicos en Argentina se extiende entre 1594 ± 59 años aP y 680 ± 80 años aP, éste último proveniente del sitio de La Bellaca 2 (Acosta y Loponte Reference Acosta and Loponte2011:103; Berón Reference Berón, Gutierrez, de Nigris, Fernandez, Giardina, Gil, Izeta, Neme and Yacobaccio2010; Berón y Prevosti Reference Berón and Prevosti2006; Prates et al. Reference Prates, Prevosti and Berón2010).Footnote 1 Los restos de perros aparecen enterrados en posición anatómica en dos de los sitios mencionados (Cerro Lutz y Chenque 1) y como piezas aisladas mezcladas con otros restos zooarqueológicos en los restantes (Berón Reference Berón, Gutierrez, de Nigris, Fernandez, Giardina, Gil, Izeta, Neme and Yacobaccio2010; Loponte y Acosta Reference Loponte and Acosta2016; Prates et al. Reference Prates, Prevosti and Berón2010).
Edades 14C mencionadas en el trabajo. Las fechas sombreadas corresponden a fechas taxón. En los fechados señalados con * las calibraciones se tomaron de la publicación original. Los fechados señalados con ** fueron calibrados para este trabajo utilizando CALIB REV 7.1.0 (Stuiver et al. Reference Stuiver, Reimer and Reimer2017). AR = Argentina, BR = Brasil, UY = Uruguay.

Recientemente se publicó el primer ejemplar de perro doméstico precolombino para Brasil. Se trata de fragmentos de maxilar y dos molares superiores recuperados en un montículo de tierra del sur de Brasil (Pontal da Barra, Rio Grande do Sul). El fragmento de maxilar arrojó un fechado de 1720 ± 30 años aP (Tabla 1; Guedes Milheira et al. Reference Guedes Milheira, Loponte, García Esponda, Acosta and Ulguim2017:490).
En Uruguay se han recuperado hasta el momento tres esqueletos de perro doméstico enterrados en posición anatómica, además de restos aislados en cinco sitios prehistóricos de la región sudeste y en La Yeguada, un sitio prehistórico de la región oeste (litoral del río Uruguay; Bracco Reference Bracco1995; González Reference González1999; López Mazz Reference López Mazz2001; López Mazz y Castiñeira Reference López Mazz and Castiñeira2001; Loponte et al. Reference Loponte, Ottalagano, Acosta, Bortolotto, Gascue, Viglioco and Boretto2016; Pintos y Capdepont Reference Pintos and Capdepont2001). El ejemplar del litoral del río Uruguay se identificó a partir de un canino inferior en un contexto fechado en 560 ± 70 aP (Tabla 1; Loponte et al. Reference Loponte, Ottalagano, Acosta, Bortolotto, Gascue, Viglioco and Boretto2016:11).
En este trabajo se sistematiza la información disponible sobre los especímenes de perro doméstico recuperados en las tierras bajas del sudeste de Uruguay (González Reference González1999; Pintos y Bracco Reference Pintos, Bracco, López and Sans1999; Pintos y Capdepont Reference Pintos and Capdepont2001). Se presenta información de procedencia, contexto, características morfológicas y edad de los ejemplares. Además, se los ubica cronológicamente en el contexto regional a partir de fechados radiocarbónicos contextuales y un fechado taxón. Se discute el rol que pudo haber cumplido el perro en estas sociedades en función de otros elementos del registro arqueológico que han sido interpretados como indicadores de un proceso de transformación hacia economías con mayor sedentarismo y territorialidad, horticultura y probable control de animales salvajes durante el Holoceno tardío (véanse entre otros Bracco et al. Reference Bracco, Inda and del Puerto2015; Gianotti Reference Gianotti, Mameli and Muntañola2005; Iriarte Reference Iriarte2006; López Mazz Reference López Mazz1998, Reference López Mazz2001; Moreno Reference Moreno2014).
La Prehistoria de las Tierras Bajas del Sudeste Uruguayo
En torno a 5200 años aP comienza en la región del Bañado de India Muerta la emergencia de asentamientos humanos con montículos (Bracco y Ures Reference Bracco, Ures, López Mazz and Sans1999; Bracco et al. Reference Bracco, del Puerto, Inda, Loponte and Acosta2008) cuya presencia aumenta a partir del Holoceno tardío (5000–3000 años aP; Bracco Reference Bracco2006; Bracco y López Mazz Reference Bracco, López Mazz, Curbelo, Toscano and Femenías1992; Bracco et al. Reference Bracco, del Puerto, Inda, Loponte and Acosta2008; López Mazz Reference López Mazz2001). Con posterioridad a 3000 años aP, y con mayor intensidad después de 2500 años aP, aumenta la dispersión de estos sitos, comenzando a ocuparse en forma más intensa zonas más próximas a la Laguna Merín (Bracco Reference Bracco2006; Bracco et al. Reference Bracco, del Puerto, Inda and Castiñeira2005).
Estas sociedades practicaron una economía que integró el manejo y domesticación de plantas como el maíz, los porotos, la calabaza, el boniato y el maní (del Puerto e Inda Reference Del Puerto, Inda, Zukol, Osterrieth and Brea2009; Iriarte Reference Iriarte2006; López Mazz et al. Reference López Mazz, Martín Dabezies and Capdepont2014). La economía animal comprendió la explotación de ambientes de humedal donde se integran bañados, praderas y montes, incluyendo el consumo de peces (Bracco et al. Reference Bracco, Cabrera, López Mazz, Durán and Bracco2000; Moreno Reference Moreno2014; Pintos Reference Pintos, Durán and Bracco2000). El aprovisionamiento de materias primas líticas muestra una progresiva reducción en la movilidad (López Mazz et al. Reference López Mazz, Nadal, Suárez, De León, Salvo, López Mazz and Gascue2009) que coincide con asentamientos interpretados como más complejos desde un punto de vista arquitectónico y político (Bracco Reference Bracco2006; Bracco et al. Reference Bracco, del Puerto, Inda and Castiñeira2005; Gianotti Reference Gianotti, Mameli and Muntañola2005; Iriarte Reference Iriarte2006; López Mazz Reference López Mazz2001).
Registros Prehistóricos de Perros Domésticos en las Tierras Bajas del Este de Uruguay
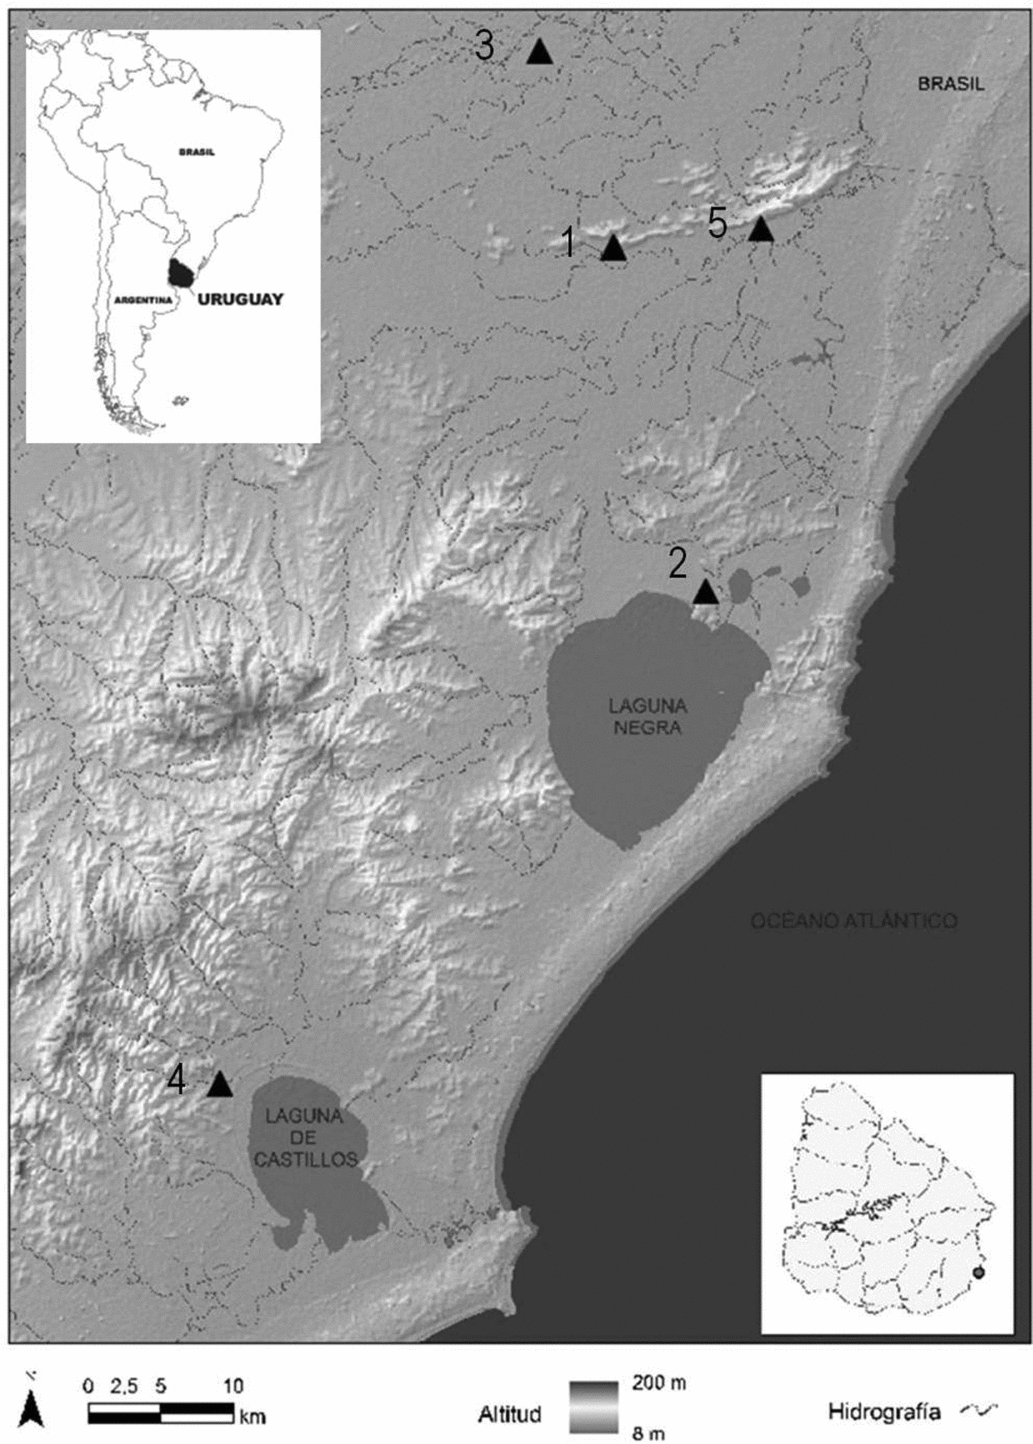
A lo largo de los más de 30 años de investigaciones arqueológicas en la región sudeste de Uruguay, se recuperaron restos de perro doméstico en varios sitios geográficamente dispersos (Figura 1). Los hallazgos consisten tanto en ejemplares en posición anatómica como piezas aisladas. Dichos ejemplares son los que se presentan en este trabajo y fueron analizados siguiendo los criterios metodológicos que se detallan a continuación.
Sector sur de la cuenca de la Laguna Merín con la localización de los sitios arqueológicos mencionados en este trabajo: (1) Ch2D01; (2) Potrerillo de Santa Teresa; (3) Puntas de San Luis; (4) Cráneo Marcado; (5) Isla Larga.

La identidad taxonómica se estableció con base en caracteres diagnósticos del cráneo, mandíbula y dientes y la comparación osteológica con cánidos salvajes de la región, Lycalopex gymnocercus, Cerdocyon thous y Chrysocyon brachyurus. Para establecer si se trata de cráneos dolicocéfalos, mesocéfalos o braquicéfalos se estimaron los índices cefálico (IC = ancho bicigomático × 100/longitud total) y craneofacial (ICF = longitud nasal × 100/longitud craneal; Harcourt Reference Harcourt1974; Sisson y Grossman Reference Sisson and James1982).
Varios caracteres mandibulares y dentales se transformaron durante la evolución del perro doméstico, resultando en rasgos diagnósticos para la discriminación de la especie (Clutton- Brock Reference Clutton-Brock, Brothwell and Higgs1980; Koler-Matznick Reference Koler-Matznick2002; Morey y Wiant Reference Morey and Wiant1992; Olsen Reference Olsen1985; Sisson y Grossman Reference Sisson and James1982). A nivel de la mandíbula se tomaron medidas que permiten establecer la robustez en comparación con los zorros (Tonni y Politis Reference Tonni and Politis1981). Estas son longitud, altura del segundo molar (M2) y largo y ancho del proceso ascendente. También se estimó el ángulo de divergencia entre las ramas a nivel del tercer molar (M3), cuyo valor en el perro doméstico varía entre 25° y 30°. Se relevó la forma de los bordes mandibulares, que tienden a ser rectos en los zorros y convexos en los perros domésticos, y la línea dentaria en vista oclusal, que tiende a acentuar el giro helicoidal o en zig-zag durante el proceso de domesticación. Se verificó la ocurrencia de apiñamientos dentales, ya que en perros domésticos tienden a reducirse o eliminarse los espacios interdentales, sobre todo en los premolares superiores. También se verificó la ausencia de alvéolos o dientes supernumerarios. Con la domesticación los molares carniceros se acortan y se redondean las cúspides, por lo que se midió el largo anteroposterior y el transverso del cuarto premolar (PM4).
Para estimar la altura a la cruz se utilizaron factores multiplicadores para los huesos largos propuestos por Harcourt (Reference Harcourt1974) a partir de la longitud total de los huesos largos de los miembros. La edad se estimó combinando tres métodos: dentición, desgaste dental y fusión epifisaria (Valadez Azúa et al. Reference Valadez Azúa, Paredes Gudiño and Rodríguez Galicia1999).
Ejemplares en Posición Primaria
De los cinco ejemplares identificados, tres se recuperaron enterrados en posición primaria. Los mismos se describen a continuación junto con los contextos de recuperación.
Ch2D01. El sitio Ch2D01 se localiza en el Bañado San Miguel y se compone de dos montículos y varias zonas levemente sobreelevadas (microrrelieves; Figura 1). En ambos montículos se recuperaron entierros humanos, además de abundantes restos faunísticos, vegetales, cerámica y materiales líticos (Curbelo et al. Reference Curbelo, Cabrera, Fusco, Martínez, Bracco, Femenías and López Mazz1990; López Mazz Reference López Mazz2001). Las dataciones radiocarbónicas ubican la ocupación entre el Holoceno tardío y la época histórica (Bracco Reference Bracco2006). Aquí fueron recuperados dos ejemplares de perro, ambos enterrados en posición anatómica.
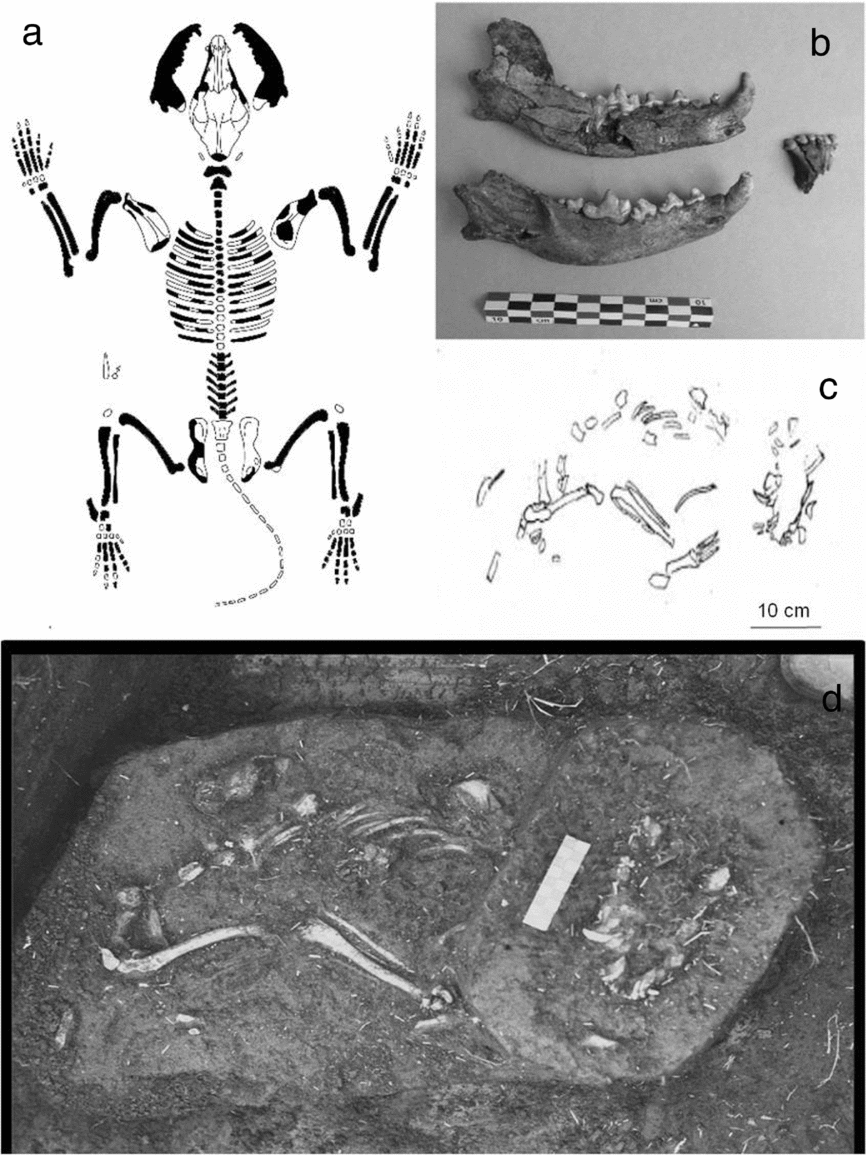
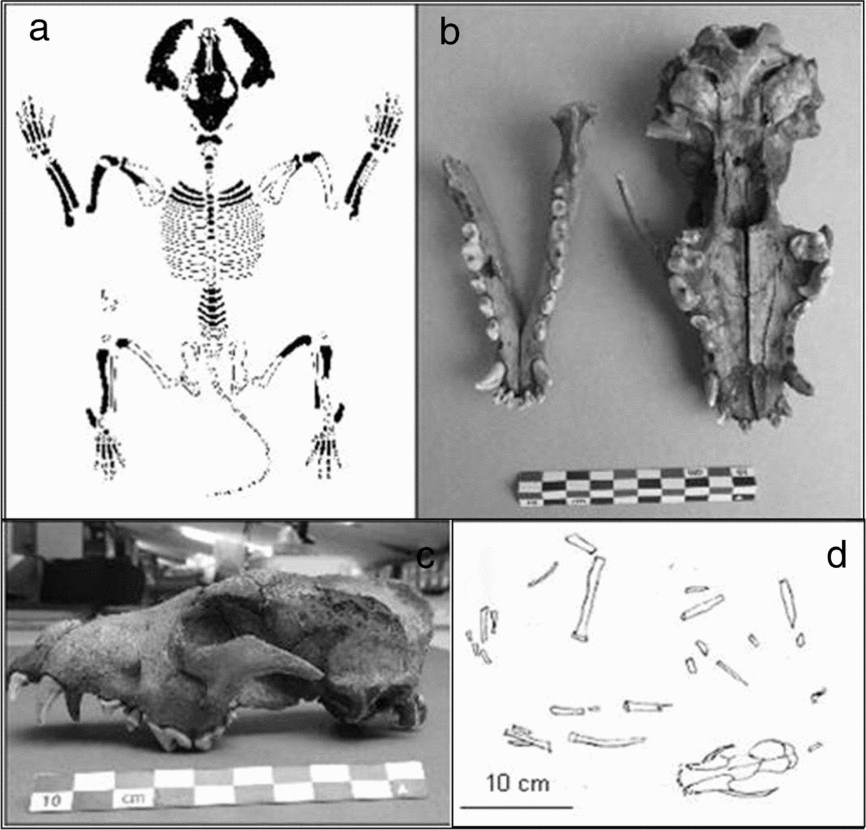
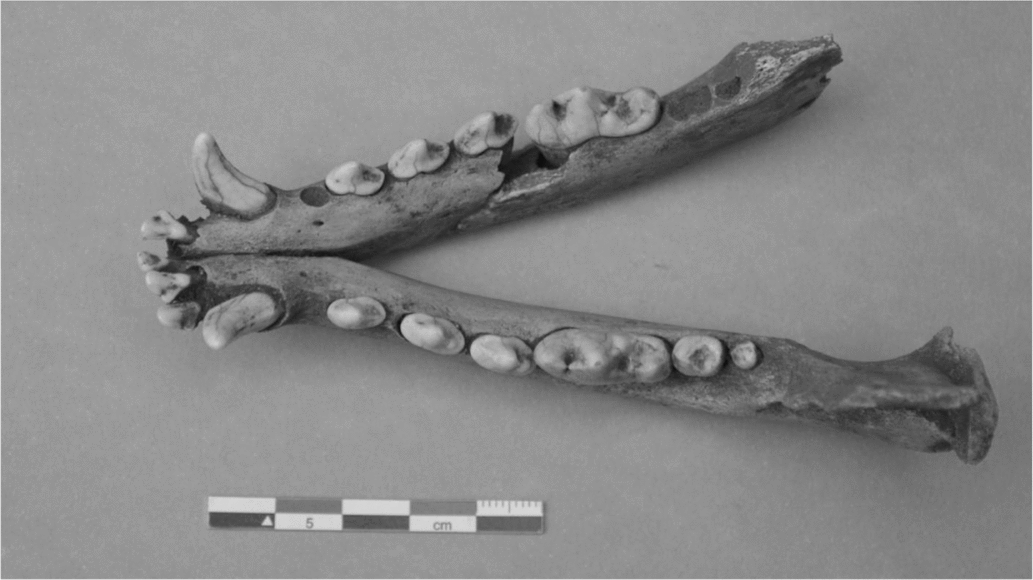
Perro recuperado en el sitio Ch2D01, Excavación II: (a) elementos anatómicos recuperados (diseño vectorial de Michael Coutureau, ©2013 ArcheoZoo.org); (b) mandíbulas derecha e izquierda; (c) representación de la posición del esqueleto en el momento del hallazgo; (d) vista del perro aún sin extraer de la excavación donde se nota la ausencia del neurocráneo.

En 1988 se localizó el primer ejemplar en un microrrelieve interpretado como zona doméstica (Excavación II; Figura 2a–d). Además del entierro del perro, en esta estructura se recuperaron piezas líticas, tiestos cerámicos, carbón vegetal y escaso material óseo. Una muestra de carbón vegetal dató el nivel inmediatamente inferior a la ocupación en 1610 ± 50 años aP (Tabla 1; Bracco Reference Bracco2006:527). El ejemplar se encontraba en posición de decúbito ventral, manteniendo la posición anatómica. El inventario óseo incluye a nivel de cráneo fragmentos de maxilar, occipital, auditivo y zigomático y mandíbulas completas (Figura 2b). No se recuperó el neurocráneo. El postcráneo se presenta prácticamente completo.
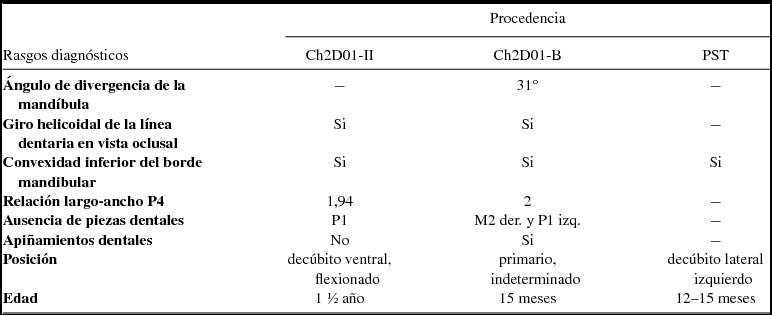
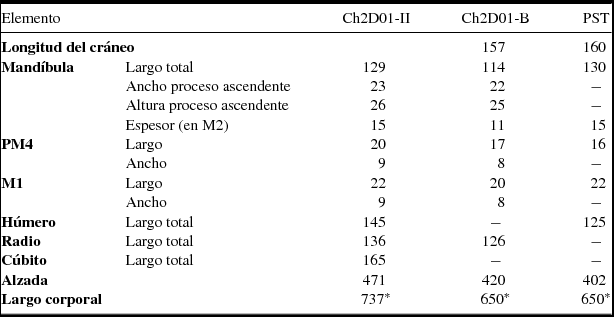
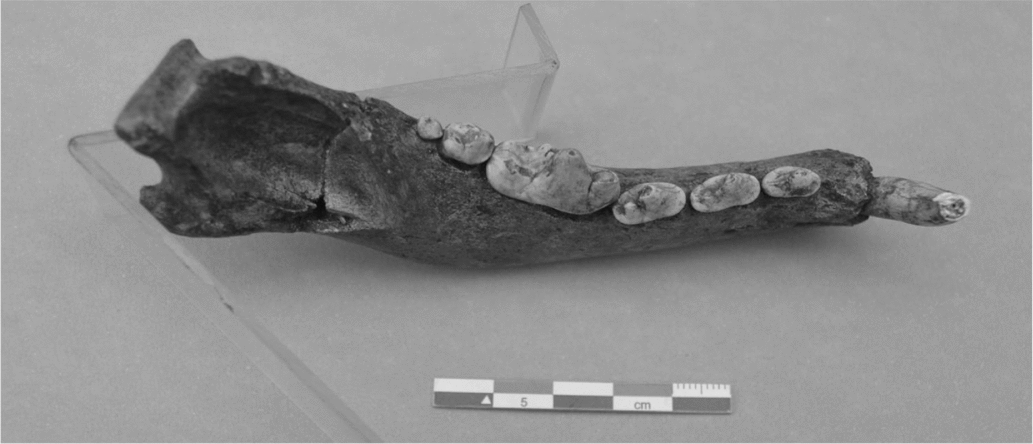
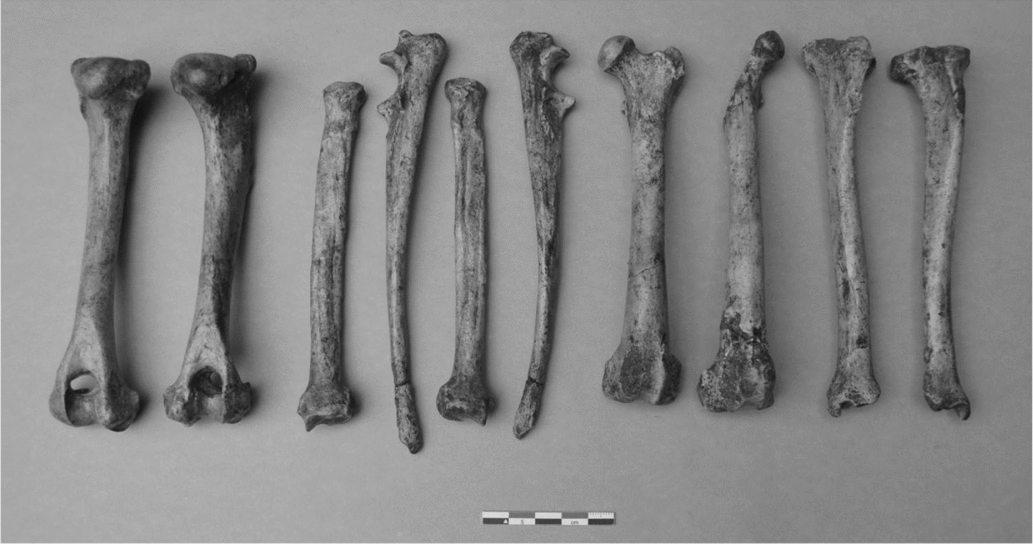
Debido a la ausencia del neurocráneo y de la región facial no pudieron establecerse los índices cefálicos y craneofacial. El ángulo de divergencia de la mandíbula no se estableció debido a que las hemimandíbulas se recuperaron separadas (Tabla 2). Las medidas de la mandíbula, tomadas sobre la hemimandíbula izquierda, y del PM4 se presentan en la Tabla 3. Se observa un claro giro helicoidal de la línea dentaria en vista oclusal (Figura 3). El tipo de oclusión no pudo determinarse debido a la fragmentación del maxilar. El alvéolo del PM1 derecho está ausente (Figura 3). La relación largo/ancho del PM4 se calculó en 1,94, que es un valor comprendido en el rango de variación de C. familiaris (Tonni y Politis Reference Tonni and Politis1981). Los huesos largos se recuperaron completos (Figura 4) y las medidas del húmero, radio y cúbito se presentan en la Tabla 3. El M2 y el M3 están completamente erupcionados, indicando una edad mayor a 7 meses. Los incisivos inferiores muestran lóbulos centrales barridos (I1) y muy erosionados (I3). Los caninos inferiores muestran las cúspides redondeadas sin alteración del esmalte. Los molares y premolares superiores muestran desgaste incipiente y en los inferiores el mayor desgaste ocurre a nivel de las cúspides del M1. Por último, todos los huesos largos están fusionados, pero aún se nota levemente la línea de fusión en el fémur. Combinando estos rasgos se estimó la edad en poco más de 18 meses (Tabla 2). No se recuperó hueso peneano.
Sumario de los rasgos diagnósticos de Canis lupus familiaris relevados, posición del enterramiento y estimación de edad al morir.

Datos biométricos de cráneo y esqueleto apendicular y estimaciones de alzada a la cruz y largo corporal en mm (* = valores mínimos). La altura a la cruz se estimó a partir del largo del húmero en los ejemplares de Ch2D01-II y PST, y a partir del radio en el ejemplar de Ch2D01-B.

Hemimandíbula derecha del individuo recuperado en el sitio Ch2D01, Excavación II. Se aprecia el giro helicoidal, la ausencia de alvéolo del PM1 y el escaso desgaste del esmalte.

Huesos largos fusionados pertenecientes al ejemplar del sitio Ch2D01, Excavación II.

El segundo ejemplar fue recuperado en el Montículo B, en niveles datados en 1090 ± 70 años aP (Tabla 1; Bracco Reference Bracco2006:527). Se encontraba en posición anatómica, parcialmente removilizado. En el mismo montículo se recuperaron varios enterramientos humanos (González Reference González1999).
Tanto el cráneo (con ausencia del zigomático derecho) como el postcráneo están casi completos y presentan buena conservación (Figura 5a–d). El ángulo de divergencia de los bordes mandibulares a nivel de los M3 se estimó en 31° (Tabla 2). Las medidas de la mandíbula, tomadas sobre la hemimandíbula izquierda, se presentan en la Tabla 3. Se observa un claro giro helicoidal de la línea dentaria en vista oclusal (Figura 6). Están ausentes los alvéolos correspondientes al M2 derecho y al PM1 izquierdo (Figura 6) y hay apiñamiento dental a nivel de los premolares superiores. La relación largo-ancho del PM4 es de 2, distinguiendo a este ejemplar de los zorros locales (Tabla 2; Tonni y Politis Reference Tonni and Politis1981). La oclusión es normal, con los incisivos inferiores situados un poco por detrás de los superiores.
Ejemplar recuperado en el sitio Ch2D01, Excavación B: (a) elementos anatómicos recuperados (diseño vectorial de Michael Coutureau, ©2013 ArcheoZoo.org); (b) mandíbula en vista oclusal y cráneo en vista ventral; (c) vista lateral del cráneo; (d) diagrama de la posición del esqueleto al momento del hallazgo.

Mandíbula completa del individuo recuperado en el sitio Ch2D01, Excavación B. Se observa el giro helicoidal de la mandíbula, la ausencia de alvéolo del PM1 izquierdo y la ausencia de desgaste.

En este ejemplar se calculó el índice cefálico en 62,4. Este resultado está comprendido entre los valores esperados para dolicocéfalos (50) y mesocéfalos (70-75) y dista mucho del valor esperado para braquicéfalos (90). El índice craneofacial no pudo determinarse debido al aplastamiento del cráneo a la altura del hueso nasal.
El M2 y el M3 están erupcionados, lo que da una edad mínima de 7 meses. No hay desgaste visible en incisivos, caninos, molares y premolares. Las epífisis de húmero, radio-ulna y tibia no están fusionadas, lo que indica una edad máxima de 15 meses (Tabla 2). Al igual que con el ejemplar anterior, no se recuperó hueso peneano (González Reference González1999). Si bien el postcráneo muestra una buena completitud anatómica, únicamente dos huesos largos se recuperaron íntegros: la tibia izquierda y el radio derecho (Figura 7). La medida de este último se presenta en la Tabla 3.
Huesos largos no fusionados y escápulas pertenecientes al ejemplar del sitio CH2D01, Excavación B.

Potrerillo de Santa Teresa (PST). Potrerillo de Santa Teresa es un sitio formado por dos montículos en la terraza alta sobre la Laguna Negra (Figura 1). En 1995 se recuperó en uno de los montículos un tercer perro enterrado en posición anatómica a 0,60 m de distancia horizontal de un entierro humano femenino. El nivel se fechó en 2320 ± 50 años aP (Tabla 1; López Mazz y Castiñeira Reference López Mazz and Castiñeira2001:151). De una muestra ósea de este ejemplar se obtuvo la única fecha taxón de perro doméstico prehistórico en Uruguay: 1590 ± 110 años aP (URU0582; hueso; δ13C = −19.5‰; Tabla 1).
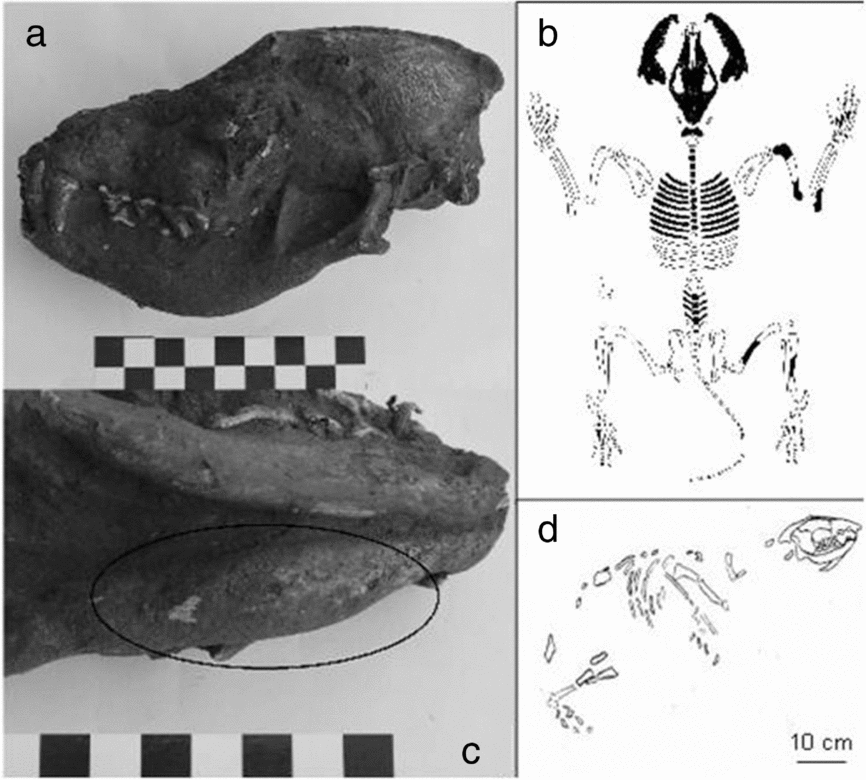
En este caso, el estado de conservación no es tan bueno como en los anteriores y el tejido óseo muestra un mayor grado de desagregación. El cráneo está relativamente completo y el postcráneo presenta mayor fragmentación que los otros casos (Figura 8a–d).
Ejemplar recuperado en el sitio de Potrerillo de Santa Teresa: (a) vista lateral del cráneo; (b) elementos anatómicos recuperados (diseño vectorial de Michael Coutureau, ©2013 ArcheoZoo.org); (c) detalle del borde inferior de la mandíbula donde se observa el engrosamiento de la hemimandíbula izquierda; (d) diagrama de la posición del esqueleto en el momento del hallazgo.

Debido a la fragilidad de este ejemplar, el cráneo fue excavado parcialmente, por lo que algunos parámetros como el giro helicoidal de la mandíbula y el ancho del molar carnicero no pudieron evaluarse. Se observa marcada convexidad del borde mandibular inferior (Tabla 2). El cráneo está aplastado por lo que no se pudo determinar el ángulo de divergencia de las mandíbulas ni los índices craneales. El M2 está erupcionado y no se observa desgaste a nivel de incisivos, molares y premolares. La epífisis proximal del cúbito está fusionada pero la línea de fusión está aún abierta (González Reference González1999). La combinación de estos rasgos arroja una edad mayor a 7 meses y menor a 15 (Tabla 2). Las medidas mandibulares se tomaron sobre la hemimandíbula derecha y se presentan en la Tabla 3.
Este ejemplar muestra un engrosamiento del borde inferior de la mandíbula izquierda que podría deberse a un proceso infeccioso (Figura 8c). Se trata de la primera evidencia paleopatológica en restos zooarqueológicos en Uruguay. El postcráneo muestra una importante fragmentación, y no pudo establecerse la longitud de los huesos largos, por lo que no pudo estimarse la altura.
Piezas Aisladas
Los restantes dos individuos fueron identificados a partir de piezas aisladas. Estas piezas no pudieron consultarse para el presente trabajo y la información proviene de publicaciones previas.
Puntas del San Luis (PSL). El sitio arqueológico de Puntas del San Luis es un conjunto de 15 montículos ubicado en la margen izquierda del río San Luis (Figura 1; Pintos y Bracco Reference Pintos, Bracco, López and Sans1999). En 1996, en la Elevación I, se recuperó una estructura formada por un enterramiento secundario que incluye restos humanos y de un cánido (fragmentos de cráneo y algunos dientes) posteriormente identificado como Canis lupus familiaris (Pintos y Bracco Reference Pintos, Bracco, López and Sans1999). Estos restos estaban enterrados en una fosa, cuyo nivel inferior fue datado en 3430 ± 100 años aP (Tabla 1; Pintos y Bracco Reference Pintos, Bracco, López and Sans1999:88). Este ejemplar no fue excavado y permanece dentro del montículo.
Cráneo Marcado. En 1998 fue recuperado en un montículo del sitio de Cráneo Marcado (litoral oeste de la Laguna de Castillos; Figura 1) un fragmento de hemimandíbula izquierda de un cánido que aún conservaba el segundo molar y el molar carnicero. Este fragmento fue identificado como Canis lupus familiaris y estaba asociado a un enterramiento humano femenino (Pintos y Capdepont Reference Pintos and Capdepont2001).
Discusión y Conclusiones
A partir de los ejemplares recuperados en posición primaria, puede determinarse que se trata de perros medianos y, al menos en un caso, dolicocéfalos. La fórmula dental de los ejemplares completos indica que se trata de perros con pelo, ya que una de las características de los perros pelones es su dentición incompleta (ausencia de premolares y en ocasiones de caninos; Valadez Azúa et al. Reference Valadez Azúa, Blanco, Rodríguez and Götz2009).
Los tres ejemplares corresponden a individuos jóvenes; al menos dos se encontraban próximos a enterramientos humanos. En un caso los restos óseos humanos y de perro están claramente asociados en una estructura correspondiente a un enterramiento secundario. Las fechas provenientes de niveles arqueológicos que se pueden asociar a los hallazgos de enterramientos se ubican entre 1090 ± 70 y 3430 ± 100 años aP. El fechado obtenido del ejemplar de PST (1590 ± 10) es cronológicamente más tardío que el recuperado en el sur de Brasil y contemporáneo al individuo recuperado en Cerro Mayor en la cuenca del bajo río Paraná en Argentina (Guedes Milheira et al. Reference Guedes Milheira, Loponte, García Esponda, Acosta and Ulguim2017; Loponte y Acosta Reference Loponte and Acosta2016). Como sugieren Guedes Milheira y colaboradores (Reference Guedes Milheira, Loponte, García Esponda, Acosta and Ulguim2017) este comportamiento en los fechados puede estar asociado a la expansión del perro en esta región. Los fechados taxón sugieren que para el 1500 aP el perro doméstico ya estaba implantado en las tierras bajas del Cono Sur, desde el sur de Brasil hasta el bajo río Paraná.
En los sitios arqueológicos de las tierras bajas del este de Uruguay los ejemplares de perro doméstico son tan abundantes como en Pampa. La importancia relativa de estos hallazgos debe ponderarse en relación a la magnitud del registro arqueológico correspondiente al Holoceno tardío y al estado actual de las investigaciones (sitios excavados, sitios con registro faunístico y conjuntos zooarqueológicos analizados). Aunque cinco ejemplares parecen un registro escaso, representan el 20% aproximadamente de los sitios excavados. Aún restan por determinar las piezas aisladas identificadas como cánidos indeterminados que podrían aumentar el tamaño de la muestra. Por otro lado, como señala Lupo (Reference Lupo, Albarella and Trentacoste2011), en contextos de cazadores la muerte de los perros se da mayoritariamente durante las partidas de caza, y los animales son enterrados donde murieron. Una alta mortalidad resultante de los accidentes de caza puede ser una de las razones de la escasez de perros en contextos arqueológicos. De acuerdo con esto, es esperable que en los sitios residenciales ocurra un pequeño número de entierros de animales jóvenes (Lupo Reference Lupo, Albarella and Trentacoste2011).
Como ocurre en Paraná y en el sur de Brasil (Acosta et al. Reference Acosta, Loponte and García Esponda2011; Guedes Milheira et al. Reference Guedes Milheira, Loponte, García Esponda, Acosta and Ulguim2017; Loponte y Acosta Reference Loponte and Acosta2016), la presencia de perros prehistóricos en la región de las tierras bajas del este de Uruguay es un elemento novedoso que impacta nuestro entendimiento a varias escalas. A nivel local, el rol del perro en estas sociedades fue primariamente asumido como asistente de caza (Pintos Reference Pintos, Durán and Bracco2000). En contextos económicos de caza, los perros colaboran emboscando y cobrando la presa (Galibert et al. Reference Galibert, Quignon, Hitte and Andre2011; Koster Reference Koster2009). Este tipo de colaboración puede haber sido particularmente significativa en ambientes inundables, de difícil acceso y tránsito, como los humedales del este de Uruguay. Los nuevos modelos sociales plantean que para el Holoceno tardío estas sociedades poseían una fuerte implantación territorial, sedentarismo, lugares formales de inhumación, horticultura y un probable control de animales salvajes, lo que introduce la posibilidad de que el perro hubiera cumplido también con otras funciones. El impacto económico del perro entre grupos cazadores y pastores (de diferente latitud) es también reconocido en la literatura (Shanks y Tilley Reference Shanks, Tilley and Hodder1982). Algunas hipótesis sobre construcción de nichos en la prehistoria escandinava han dado a los perros domésticos un rol estratégico en la emergencia del pastoreo de renos (Riede Reference Riede2011). Debe tenerse en cuenta también el valor del perro como defensa, fuente de alimentación y, fuera de la esfera económica, como animal de compañía o mascota (Koster Reference Koster2009). En Sudamérica, los perros domésticos prehistóricos se asocian tanto a sociedades sedentarias y agricultoras como en el caso de los Andes, como a sociedades cazadoras-recolectoras como en las regiones de la Patagonia y Pampa argentina, sudeste uruguayo y sur de Brasil.
En al menos tres casos, los restos de perro se depositaron en zonas formales de inhumación. Esta asociación entre enterramientos humanos y de perros se ha observado también en Argentina y Brasil. En Chenque 1 el esqueleto de C. l. familiaris fue enterrado junto a un humano subadulto masculino (Prates et al. Reference Prates, Prevosti and Berón2010). En Cerro Lutz existe evidencia de un entierro humano posterior al entierro intencional de un perro (Acosta et al. Reference Acosta, Loponte and García Esponda2011). En el sur de Brasil los restos de C. l. familiaris aparecen aproximadamente 40–60 cm por encima de fragmentos humanos (cráneo y diente M1; Guedes Milheira et al. Reference Guedes Milheira, Loponte, García Esponda, Acosta and Ulguim2017).
Además de perro doméstico, en la región de las tierras bajas del sudeste uruguayo se identificaron especies de cánidos silvestres: Chrysocyon brachyurus, Lycalopex gymnocercus y Cerdocyon thous. En la mayoría de los casos, las causas de la presencia de estos restos en los conjuntos zooarqueológicos no están claras. Un caso excepcional se da en el sitio de Isla Larga, localizado en la Sierra de San Miguel (Figura 1), donde mandíbulas de zorro acompañan un enterramiento múltiple de edad precolonial final (Cabrera Reference Cabrera, López and Sans1999). Esta variabilidad de cánidos presente en el registro arqueológico del sudeste uruguayo podría responder a una taxonomía indígena que reagrupa al conjunto de cánidos, más allá del perro doméstico.
En una escala más amplia, el análisis genético de estos ejemplares puede aportar información novedosa al estudio de la dispersión humana americana y las rutas de poblamiento e intercambio. Asimismo, puede permitir reconocer episodios de hibridación y mixtura con cánidos locales (Stahl Reference Stahl2013) y determinar cuáles son las especies representadas por las piezas de cánido aisladas que permanecen indeterminadas (Byrd et al. Reference Byrd, Cornellas, Eerkens, Rosen- thal, Carpenter, Leventhal and Leonard2013). En el otro extremo cronológico, sería interesante conocer el ascendente genético de los perros cimarrones—los perros silvestres que habitaban los campos de Uruguay durante el período histórico (siglos XVII a XIX; Assuncao Reference Assuncao2008)—para establecer la existencia de continuidades con las poblaciones prehistóricas.
Agradecimientos
Al Ministerio de Educación y Cultura de Uruguay (Comisión Nacional de Arqueología, DINACYT y Museo Nacional de Antropología), Comisión Sectorial de Investigación Científica/UdelaR, por el apoyo y la financiación de las investigaciones. A los estudiantes de arqueología de la Facultad de Humanidades de la Universidad de la República por su compromiso y trabajo. A los revisores que con sus comentarios y sugerencias enriquecieron notablemente este trabajo.
Declaración de Disponibilidad de Datos
Los restos óseos reportados aquí de los sitios Ch2D01/II, Ch2D01/B y Cráneo Marcado se encuentran en los depósitos del Museo Nacional de Antropología de Montevideo. Los recuperados en el Potrerillo de Santa Teresa se encuentran en el Laboratorio de Arqueología de la Facultad de Humanidades y Ciencias de la Educación de Montevideo.