En las últimas décadas en las regiones pampeana y patagónica se utilizaron múltiples líneas de análisis para conocer la alimentación de las poblaciones prehistóricas. En este marco, el estudio de los isótopos estables ha cobrado relevancia para evaluar paleodietas, ampliar el conocimiento sobre la explotación de recursos de diversos ambientes (marinos o terrestres, vegetales de tipo C3 o C4) y complementar los estudios arqueofaunísticos. Esto permitió proponer modelos de subsistencia más sólidos y discutir aspectos relacionados con la movilidad y uso del espacio por parte de los grupos cazadores-recolectores (e.g., Berón et al. Reference Berón, Luna and Barberena2009; Bonomo et al. Reference Bonomo, Scabuzzo and León2013; Borrero y Barberena Reference Borrero and Barberena2006; Borrero et al. Reference Borrero, Barberena, Franco, Charlin and Tykot2009; Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009; Gómez Otero Reference Gómez Otero, Morello, Martinic, Prieto and Bahamonde2007; Scabuzzo et al. Reference Scabuzzo, Frontini, Vecchi and Bayón2016; Zilio et al. Reference Zilio, Tessone and Hammond2018).
En sitios localizados en inmediaciones de la costa atlántica patagónica (e.g., costa norte del Golfo San Matías y Golfo San Jorge-desembocadura del Río Deseado) se han realizado estudios detallados de isótopos estables en grupos cazadores-recolectores para el lapso que abarca el Holoceno medio y tardío (Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009; Zilio et al. Reference Zilio, Tessone and Hammond2018). En estos casos, se observaron variaciones en las paleodietas a través del tiempo (e.g., de marinas a terrestres y viceversa), las cuales fueron atribuidas a cambios en el ambiente, en la accesibilidad a los recursos, en las estrategias de subsistencia y en los patrones de asentamiento y movilidad. Para algunas microrregiones de Patagonia centro-meridional (e.g., Península Valdés-curso inferior del Río Chubut; curso inferior del Río Gallegos) se evaluaron las dietas en función del uso de los espacios costeros y los del interior, identificándose señales isotópicas con algún componente marino hasta aproximadamente 90 km desde la actual costa atlántica. Las dietas se caracterizaron como heterogéneas y variables a través del tiempo, en algunos casos debido a rangos de acción limitados al litoral marítimo, mientras que en otras situaciones habría estado involucrado el uso de los espacios tanto costeros como interiores (Borrero y Barberena Reference Borrero and Barberena2006; Borrero et al. Reference Borrero, Barberena, Franco, Charlin and Tykot2009; Gómez Otero Reference Gómez Otero, Morello, Martinic, Prieto and Bahamonde2007). En el caso del sudeste de la Región Pampeana, se observaron variaciones en las paleodietas humanas desde el Holoceno temprano-medio (e.g., marinas, mixtas y terrestres) hacia el Holoceno tardío (terrestres), indicando una continentalización de la subsistencia en este último período (Bonomo et al. Reference Bonomo, Scabuzzo and León2013). Además, se registró un patrón espacial de las paleodietas durante el Holoceno temprano-medio que indica componentes marinos y mixtos en individuos inhumados en cercanía de la costa y preferentemente terrestres y mixtos hasta una distancia aproximada de 60 km hacia el interior (Bonomo et al. Reference Bonomo, Scabuzzo and León2013; Politis et al. Reference Politis, Scabuzzo and Tykot2009). Como se puede observar, estos casos muestran una variabilidad de situaciones relacionadas a diversidad de dietas, rangos de acción y particularidades en las conexiones entre la costa y el interior, así como en la intensidad de uso de diferentes sectores costeros pampeano-patagónicos. El trabajo que se presenta aquí pretende aportar a esta problemática.
En la transición pampeano-patagónica oriental, en el área que corresponde al curso inferior del Río Colorado (en adelante CIRC), se han llevado a cabo investigaciones arqueológicas referidas al estudio de las estrategias de subsistencia y paleodietas humanas en grupos cazadores-recolectores. Para el Holoceno medio (ca. 6300–4100 aP), los análisis arqueofaunísticos indicaron la explotación de guanaco, peces fluviales, coipo, aves medianas y, posiblemente, dasipódidos (Alcaráz Reference Alcaráz2017; Stoessel Reference Stoessel2015). Los resultados de isótopos estables (δ13Cap, δ13Ccol y δ15N) en esqueletos humanos indicaron la ingesta de variados recursos de origen marino y terrestre. Asimismo, las variaciones en las dietas presentaron una estrecha relación con la localización de los sitios en el espacio (costa e interior; Flensborg et al. Reference Flensborg, Martínez and Tessone2018). Para el Holoceno tardío (ca. 3000–250 aP) el estudio de las arqueofaunas mostró diferencias en dos bloques temporales: mientras que entre 3000 y 1000 aP los grupos basaron su subsistencia en el consumo de guanaco, venado y ñandú, entre 1000 y 250 aP ocurrieron transformaciones en la subsistencia relacionadas con un proceso de intensificación que implicó una explotación intensiva de algunos recursos, como el guanaco y los peces. Además, se produjo una diversificación de la dieta con la incorporación de diferentes presas de tamaños medianos y pequeños (e.g., peces fluviales y marinos, armadillos, etc.; Stoessel y Martínez Reference Stoessel and Martínez2014; Stoessel y Alcaráz Reference Stoessel, Alcaráz and Martínez2017). Los análisis de isótopos estables (δ13Ccol y δ15N) informados hasta el momento para el Holoceno tardío (Martínez et al. Reference Martínez, Zangrando and Prates2009) indicaron una dieta orientada al consumo de proteínas de herbívoros terrestres, complementados por peces. Asimismo, se observó una mayor importancia económica en el uso de recursos como armadillos y peces marinos y de agua dulce (Martínez et al. Reference Martínez, Zangrando and Prates2009).
Investigaciones recientes en contextos mortuorios recuperados del CIRC (Flensborg et al. Reference Flensborg, Bayala, Martínez and Martínez2017; Martínez y Flensborg Reference Martínez and Flensborg2018) ofrecieron un marco apropiado para realizar nuevos análisis de isótopos estables sobre restos humanos que permitieran poner a prueba la información paleodietaria previamente señalada. De esta manera, en este trabajo se dan a conocer resultados isotópicos novedosos para 35 individuos correspondientes al Holoceno tardío, a los que se integran los valores ya reportados para 9 individuos del Holoceno medio (Flensborg et al. Reference Flensborg, Martínez and Tessone2018). Asimismo, se presentan nuevos valores isotópicos correspondientes a recursos faunísticos que permiten reforzar la ecología isotópica del área. El objetivo principal es evaluar paleodietas y patrones de subsistencia en grupos cazadores-recolectores de la transición pampeano-patagónica oriental y sus variaciones durante el Holoceno medio-tardío (ca. 6300–250 aP). Se propone caracterizar y profundizar el conocimiento de los patrones dietarios relacionados con el consumo de recursos terrestres (e.g., vegetales y animales), ribereños (e.g., peces) y marinos (e.g., peces, pinnípedos). Se exploran variaciones espaciales y temporales en la dieta de los grupos humanos, así como cuestiones relacionadas con estrategias de uso del espacio y cobertura del paisaje (costa-interior). Finalmente, los resultados son discutidos con la información arqueológica y de isótopos estables disponible para el noreste de Patagonia, la subregión Pampa Seca y el sudeste de la Región Pampeana, a los efectos de evaluar los cambios en la subsistencia desde una perspectiva regional.
Características Ambientales y Ecológicas
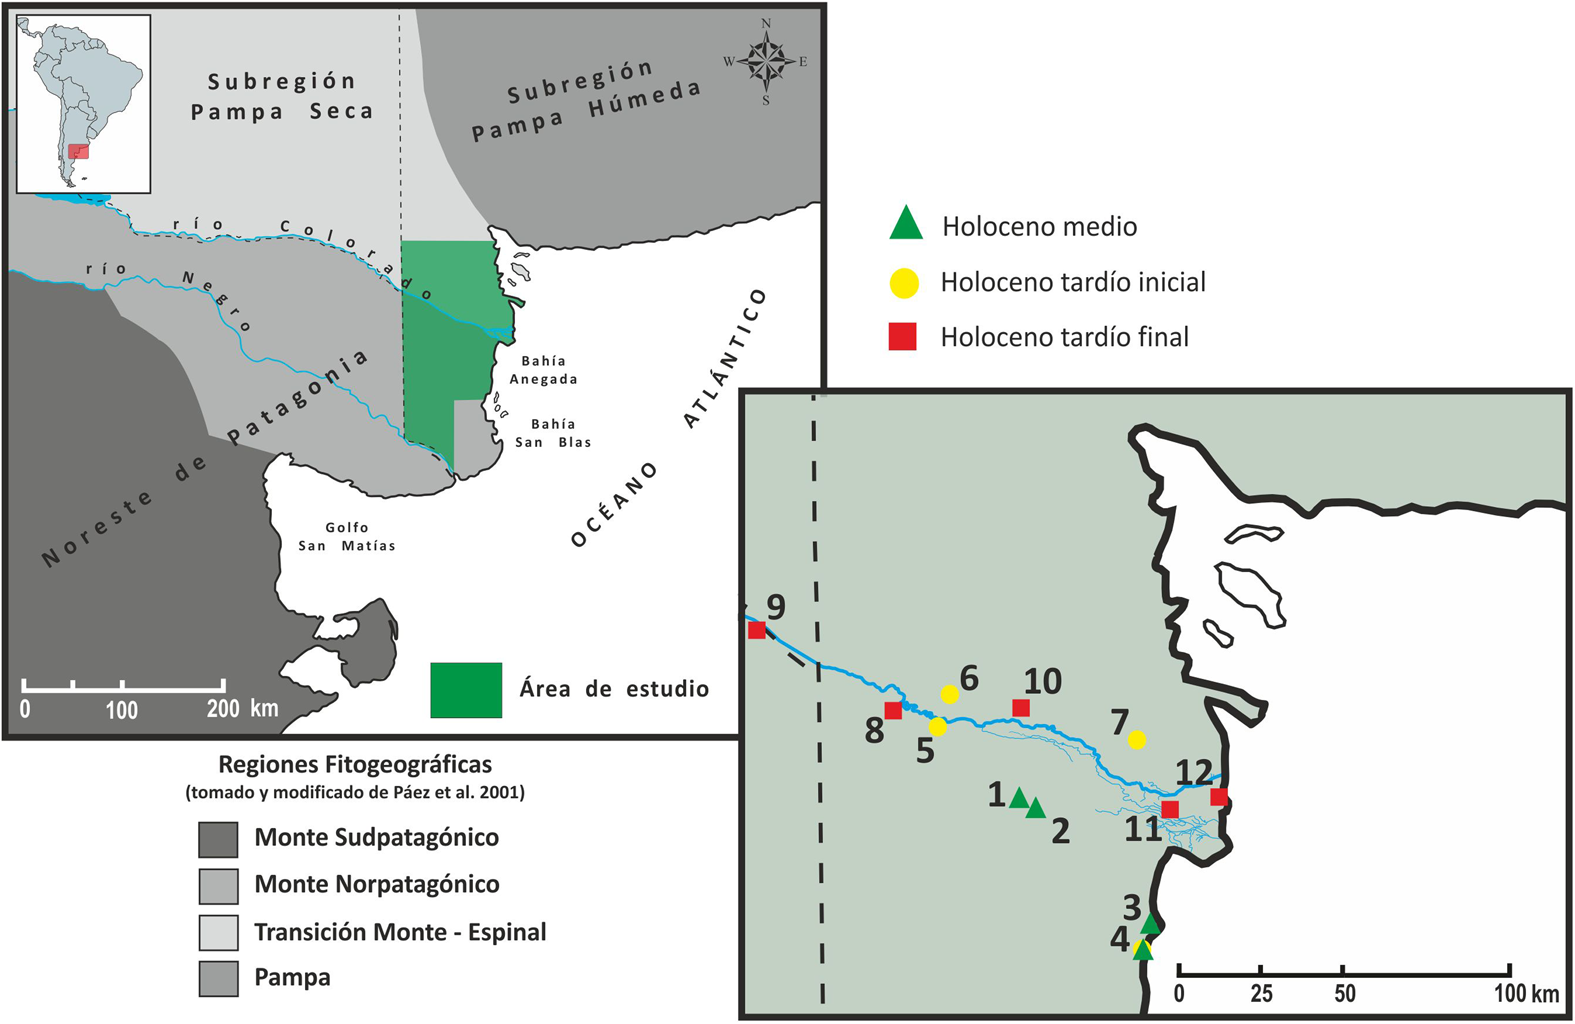
El CIRC forma parte de la Diagonal Árida, en el extremo sur de Sudamérica (Abraham de Vázquez et al. Reference Abraham de Vázquez, Garleff, Liebricht, Reigaráz, Schäbitz, Squeo, Stingl, Veit and Villagrán2000). Se caracteriza por un clima árido, cálido y seco, con temperaturas medias anuales que van entre los 22,2 °C en enero y 7,5 °C en julio; las precipitaciones poseen una media anual de 466 mm (Sánchez et al. Reference Sánchez, Pezzola and Cepeda1998). El área es atravesada por el Río Colorado, que tiene sus nacientes en los Andes y desemboca en la costa atlántica en forma de estuario (Figura 1; Piccolo y Perillo Reference Piccolo and Perillo1997). Una de sus principales características es el antiguo delta, que está relacionado a un complejo sistema de paleocauces con una superficie de aproximadamente 900 km2 y que incluye alrededor de 40 km de longitud a lo largo de la línea de costa y se extiende aproximadamente 90 km hacia el interior. La geomorfología del área costera en este sector del paisaje se caracteriza por playas bajas y extendidas (Piccolo y Perillo Reference Piccolo and Perillo1997). En cambio, más al sur, en la Bahía Anegada (Figura 1) la costa se compone de playas de corta extensión con presencia de acantilados (Weiler Reference Weiler2000).
Localización de los sitios arqueológicos en el curso inferior del Río Colorado con información de isótopos estables en restos humanos: (1) La Modesta; (2) Loma de los Morteros; (3) Cantera de Rodados Villalonga; (4) Tres Bonetes 1; (5) Zoko Andi 1; (6) El Puma 2; (7) La Primavera; (8) Paso Alsina 1; (9) Don Aldo 1; (10) La Petrona; (11) El Remo; (12) San Antonio 2. (Color en la versión electrónica)

En la zona del CIRC se produce una intersección de dominios fito, zoo e ictiogeográficos cuyo resultado es un ambiente ecotonal, de transición pampeano-patagónico (ver discusión en Páez et al. Reference Páez, Schäbitz and Stutz2001; Ringuelet Reference Ringuelet1961). El área se localiza entre las estepas de la Provincia Pampeana al norte y la Provincia del Monte al sur. La vegetación dominante pertenece al Distrito del Caldén, Provincia del Espinal, aunque también están representadas comunidades vegetales de la Provincia del Monte (Cabrera Reference Cabrera1976). Se trata de una estepa arbustiva desarrollada en un ambiente arenoso, árido-semiárido, compuesta por arbustos ralos, xerófilos y hierbas resistentes y duras (Morello Reference Morello1958; Páez et al. Reference Páez, Schäbitz and Stutz2001). Predominan especies de tipo C3 (e.g., Geoffroea decorticants, Prosopis sp. y Condalia microphylla), aunque también están presentes, en menor proporción, vegetales de tipo C4 (e.g., Portulaca sp.) y CAM (Martínez et al. Reference Martínez, Zangrando and Prates2009; Villamil y Scoffield Reference Villamil and Scoffield2003; Tabla Suplementaria 1).
Desde el punto de vista zoogeográfico, el área se ubica en la Subregión Patagónica, Distrito Patagónico, donde se registran una variedad de especies tales como Lama guanicoe, Chaetophractus villosus, Zaedyus pichiy, Dolichotis patagonum, Lagostomus maximus y Rhea americana (Cabrera y Yepes Reference Cabrera and Yepes1960). Ictiogeográficamente el área está situada en la provincia Andino Cuyana y está representada por Hatcheria macraei, Olivaichthys cuyanus y Percichthys trucha (López et al. Reference López, Menni, Donato and Miquelarena2008). Entre las desembocaduras de los ríos Colorado y Negro existe una superposición en la distribución de especies de peces de agua dulce de las subregiones Austral y Brasílica (Almirón et al. Reference Almirón, Azpelicueta, Casciotta and Cazorla1997). Las especies marinas corresponden al Distrito Rionegrino de la Provincia Argentina (Balech y Ehrlich Reference Balech and Ehrlich2008). La mayor riqueza del sector costero está relacionada al Río Colorado, su delta y desembocadura en estuario. Estos ecosistemas se caracterizan por una alta productividad primaria y por ofrecer importantes escenarios reproductivos y alimenticios de variadas especies eurihalinas como Micropogonias furnieri, Pogonias cromis, Cynoscion guatucupa y Genidens barbus (Acha et al. Reference Acha, Mianzan, Guerrero, Favero and Bava2004; Pasquaud et al. Reference Pasquaud, Elie, Jeantet, Billy, Martinez and Girardin2008; Piccolo y Perillo Reference Piccolo and Perillo1997).
Materiales y Métodos
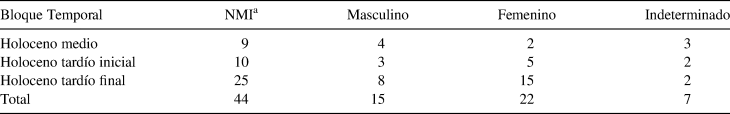
Martínez y colaboradores (Reference Martínez, Zangrando and Prates2009) presentaron los primeros resultados de δ13C y δ15N de 23 individuos inhumados de forma primaria y secundaria provenientes de diferentes sitios del Holoceno tardío (e.g., La Primavera, Paso Alsina 1, La Petrona; Flensborg et al. Reference Flensborg, Bayala, Martínez and Martínez2017; Martínez et al. Reference Martínez, Zangrando and Prates2009:Tabla 5; Figura 1). Dado que los valores de isótopos estables reportados para los individuos que conforman los fardos funerarios (i.e., entierros secundarios; n = 17; 73,9%) fueron obtenidos a partir de costillas y que esto no garantiza que en todos los casos se trate de individuos diferentes, se decidió realizar nuevamente los análisis de isótopos estables de la fracción orgánica. En este caso se consideraron fragmentos óseos de los mismos elementos y lateralidades (e.g., coxales derechos, cúbitos izquierdos), lo que posibilitó discriminar individuos y tener en la mayoría de los casos información acerca del sexo y la edad de muerte. Por su parte, los resultados de la fracción inorgánica (δ13Cap) son presentados por primera vez en este trabajo. En suma, aquí se dan a conocer nuevos resultados de isótopos estables para 35 individuos correspondientes al Holoceno tardío y se integran los valores ya reportados para 9 individuos del Holoceno medio (Flensborg et al. Reference Flensborg, Martínez and Tessone2018). De esta manera, se analizó tejido óseo correspondiente a 44 individuos adultos de ambos sexos (Tabla 1) provenientes de 12 sitios arqueológicos del CIRC (Figura 1). En la Figura 1 se observa que la ubicación de los sitios a lo largo del valle inferior del Río Colorado es uniforme espacialmente, ya que no se detectan importantes sectores del paisaje con ausencia de sitios. Estos se localizan tanto en el interior, relacionados al curso actual o a paleocauces del Río Colorado, como asociados a su desembocadura y costa atlántica adyacente. La mayoría son definidos como campamentos base de actividades múltiples con diferentes intensidades en su ocupación a través del tiempo y donde se realizaron entierros humanos. Otros contextos mortuorios se relacionan con antiguas geoformas marinas que fueron usadas a lo largo de diferentes lapsos solo para el entierro de individuos (e.g., Tres Bonetes 1; Martínez y Flensborg Reference Martínez and Flensborg2018). Finalmente, se registran áreas formales de entierros o cementerios (e.g., Paso Alsina 1; Martínez et al. Reference Martínez, Flensborg and Bayala2012). Las modalidades de inhumación presentan variaciones a través del tiempo. En el Holoceno medio los entierros son primarios. En el Holoceno tardío inicial se observa principalmente esta misma modalidad, pero hacia el final del periodo se comienzan a practicar inhumaciones secundarias. Finalmente, en el Holoceno tardío final predominan los entierros secundarios múltiples (Flensborg et al. Reference Flensborg, Bayala, Martínez and Martínez2017; Martínez y Flensborg Reference Martínez and Flensborg2018; Martínez et al. Reference Martínez, Flensborg and Bayala2012).
Cantidad de Individuos Adultos por Bloque Temporal y con Relación al Sexo.

aNMI = número mínimo de individuos.
Para abordar el objetivo del trabajo, la muestra se organizó según la cronología que poseen los individuos. La serie esqueletal tiene la particularidad de contar con fechados radiocarbónicos en 38 individuos (86,4%), lo que permite asignarlos con seguridad a los bloques temporales aquí analizados. Sobre la base de la información arqueológica disponible y los modelos generados para el área de estudio (Martínez Reference Martínez and Martínez2017), se consideraron tres bloques temporales: Holoceno medio (HM; 6000–3000 aP); Holoceno tardío inicial (HTI; 3000–1000 aP) y Holoceno tardío final (HTF; 1000–250 aP; Tabla 1).
Los análisis sobre el colágeno (δ13C y δ15N) de restos humanos se realizaron en el Instituto de Geocronología y Geología Isotópica (INGEIS) y en el Laboratorio AMS de la Universidad de Arizona, mientras que la fracción inorgánica (δ13Cap) fue analizada en el Departamento de Geociencia de la Universidad de Arizona. Se estimaron las relaciones C/N para evaluar la conservación del colágeno de las muestras (DeNiro Reference DeNiro1985). Para analizar el nivel trófico, se utilizó un enriquecimiento de 4‰ para el δ15N, mientras que se estimó un enriquecimiento isotópico de 1‰ en δ13C entre la señal de colágeno óseo de presas y depredadores (Bocherens y Drucker Reference Bocherens and Drucker2003).
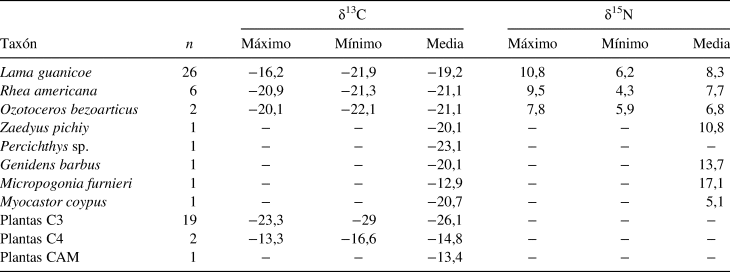
Como marco de referencia para interpretar la dieta humana se utilizó la ecología isotópica disponible para el área (Flensborg et al. Reference Flensborg, Martínez and Tessone2018; Martínez et al. Reference Martínez, Zangrando and Prates2009). Esta fue construida principalmente a partir de los valores de δ13Ccol y, en menor medida, de δ15N, incluyendo diferentes géneros de plantas actuales y de fauna procedentes de sitios arqueológicos (Tabla Suplementaria 1; Flensborg et al. Reference Flensborg, Martínez and Tessone2018; Martínez et al. Reference Martínez, Zangrando and Prates2009). Algunos valores de δ13C (n = 17) fueron informados conjuntamente con los fechados radiocarbónicos (Tabla Suplementaria 1), mientras que los restantes (n = 37) fueron obtenidos a partir del análisis específico de isótopos estables (Flensborg et al. Reference Flensborg, Martínez and Tessone2018; Martínez et al. Reference Martínez, Zangrando and Prates2009). Asimismo, a los fines de robustecer la calidad y cantidad de información de la ecología isotópica, en el Departamento de Geociencia de la Universidad de Arizona se realizaron análisis de isótopos estables (δ13C y δ15N) en 10 nuevas muestras de restos faunísticos provenientes de distintos sitios arqueológicos (Tabla Suplementaria 1). La tendencia de la ecología isotópica para el área indica la presencia de plantas C3 y herbívoros terrestres que consumen estos recursos primarios (Tabla 2). Por su parte, los peces de agua dulce (perca) presentan valores bajos para el δ13C y los peces marinos valores altos para el δ13C y δ15N. Finalmente, para fortalecer la ecología isotópica se utilizaron también los datos disponibles para zonas adyacentes al área de estudio, caracterizados por una fuente primaria correspondiente al bioma monte-espinal (Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009; Gómez Otero Reference Gómez Otero, Morello, Martinic, Prieto and Bahamonde2007; ver Flensborg et al. Reference Flensborg, Martínez and Tessone2018:Tabla 2).
Estadística Descriptiva de Isótopos Estables (δ13Ccol y δ15N) Proveniente de Diferentes Especies Faunísticas y Tipos de Plantas en el Área de Estudio.

Nota: Los datos pueden ser consultados en la Tabla Suplementaria 1.
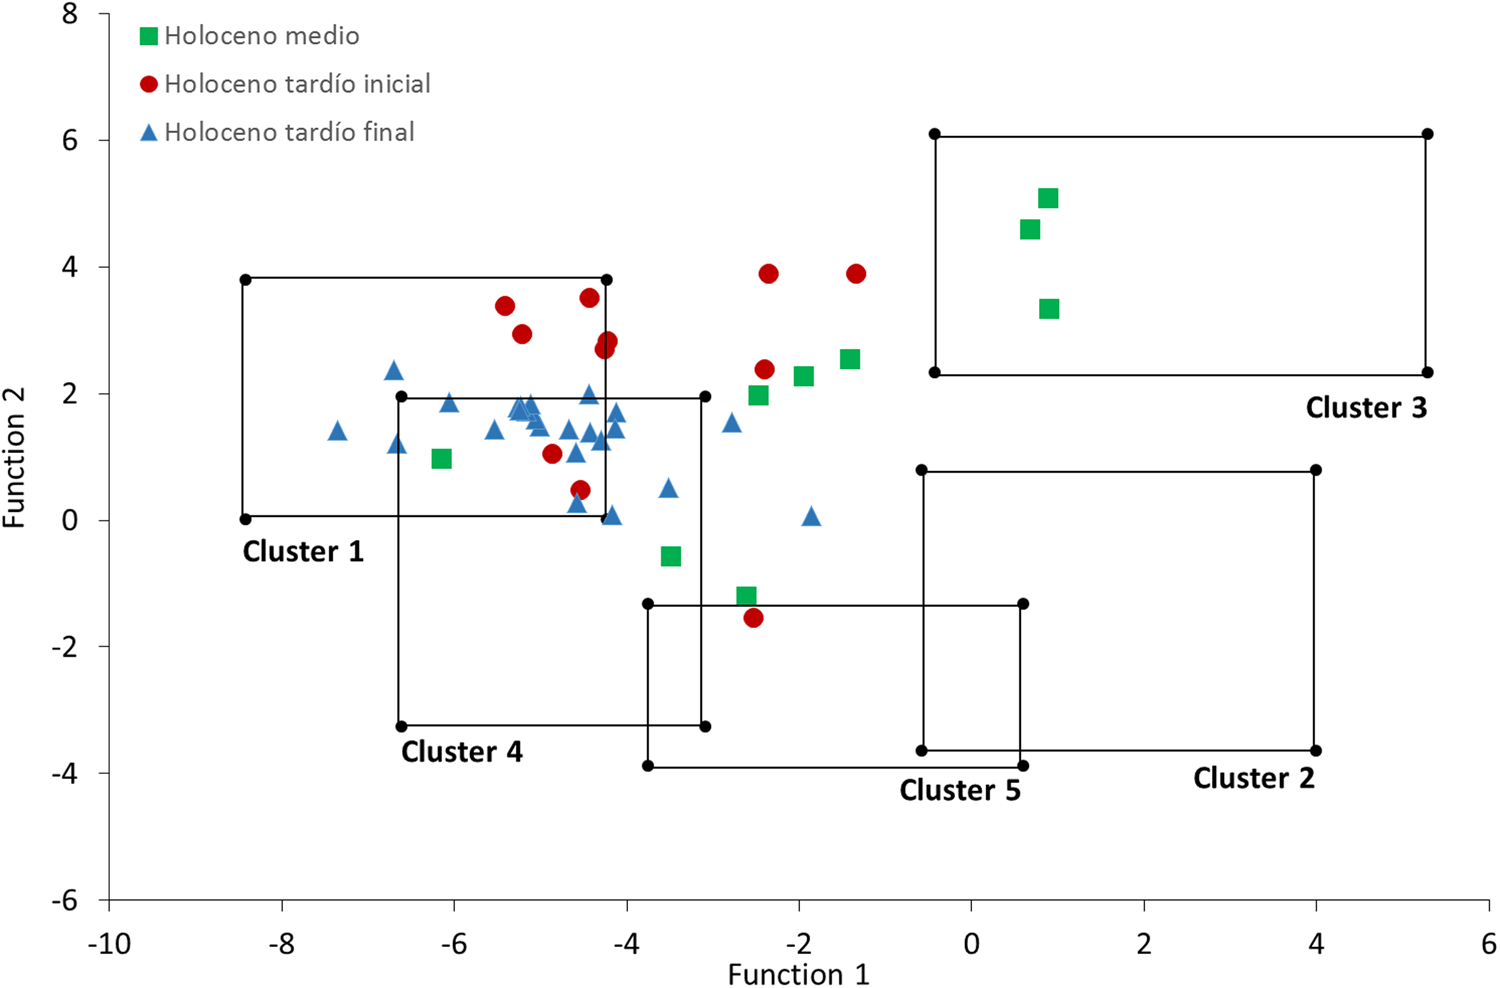
Para la interpretación paleodietaria se utilizó el modelo de Froehle y colaboradores (Reference Froehle, Kellner and Schoeninger2012) que discrimina cinco grupos de dietas diferentes con base en el componente proteico y la dieta total. Este modelo utiliza de manera integrada los tres marcadores de isótopos estables y permite diferenciar dietas basadas en proteínas marinas de aquellas cuya ruta fotosintética es C4 (Froehle et al. Reference Froehle, Kellner and Schoeninger2012; Somerville et al. Reference Somerville, Fauvelle and Froehle2013). Los valores son obtenidos a partir de la aplicación de funciones discriminantes generadas para el carbono y el nitrógeno (Froehle et al. Reference Froehle, Kellner and Schoeninger2012:357).
Las diferencias observadas en los valores de isótopos estables entre bloques temporales fueron evaluadas mediante la prueba no paramétrica de Mann-Whitney (las diferencias por debajo de p = 0,05 se consideraron significativas). Para este propósito se utilizó el programa estadístico PAST versión 2.08 (Hammer et al. Reference Hammer, Harper and Ryan2001).
Resultados
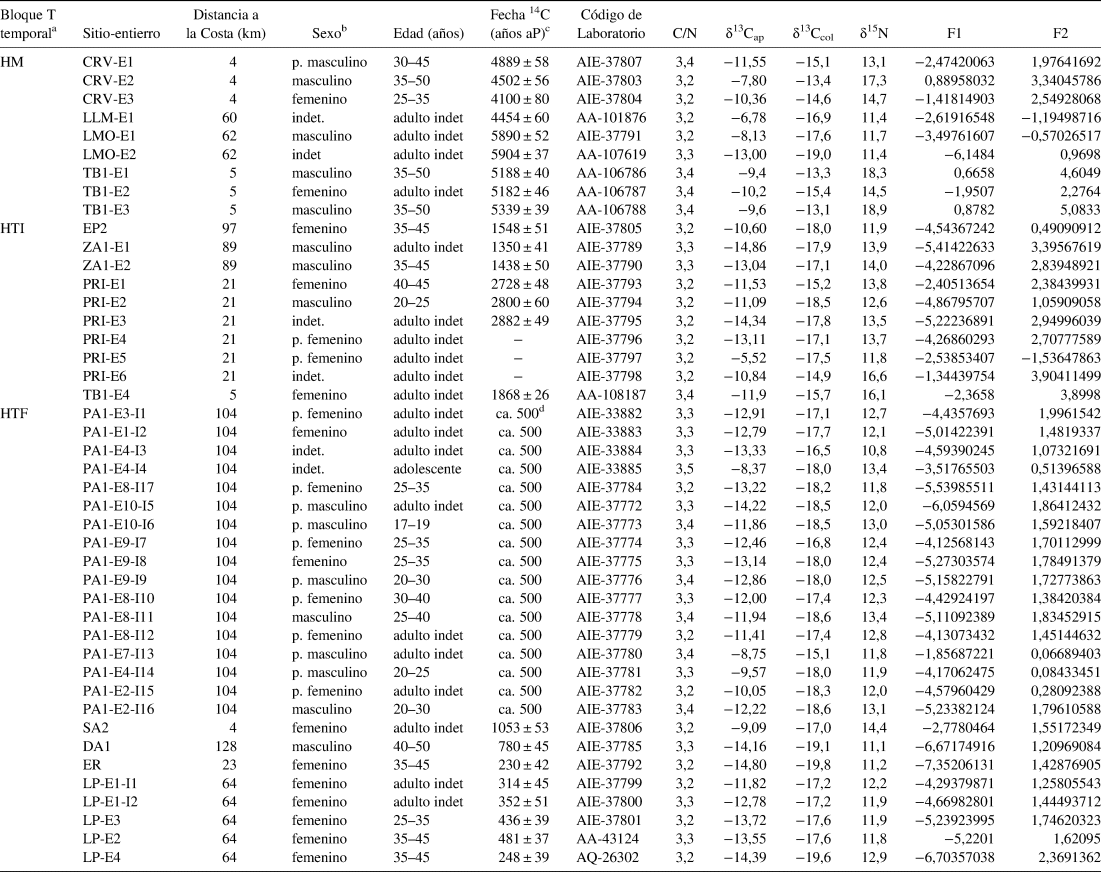
Se obtuvo información isotópica en los 44 individuos analizados y en todas las muestras la relación C/N sobre el colágeno es de entre 3,2 y 3,5 (Tabla 3). Estos valores se ubican dentro del rango aceptado para muestras sin alteración diagenética (DeNiro Reference DeNiro1985).
Valores de Isótopos Estables y Funciones Discriminantes (F1 y F2) Definidas por Froehle y colaboradores (Reference Froehle, Kellner and Schoeninger2012) para Cada Bloque Temporal.

aHM = Holoceno medio; HTI = Holoceno tardío inicial; HTF = Holoceno tardío final.
bp. = probablemente; indet. = indeterminado.
cEl código de laboratorio de los fechados 14C pueden ser consultados en Martínez (Reference Martínez and Martínez2017).
dEl sitio Paso Alsina 1 cuenta con 13 fechados radiocarbónicos cuyos valores son estadísticamente indistinguibles entre sí (media ponderada 483 ± 20 aP; Martínez et al. [Reference Martínez, Flensborg, Bayala, López, Bayón, Puppio, González, Flegenheimer and Freire2007]) y se expresan en una cronología de aproximadamente 500 aP.
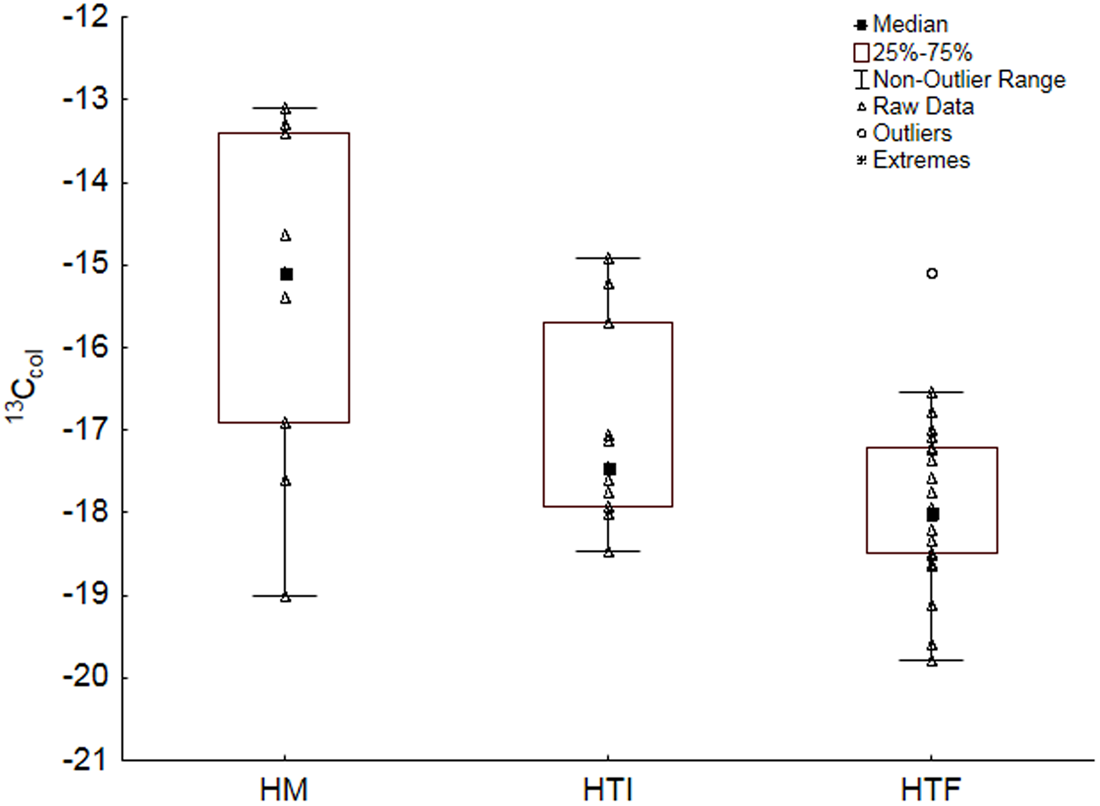
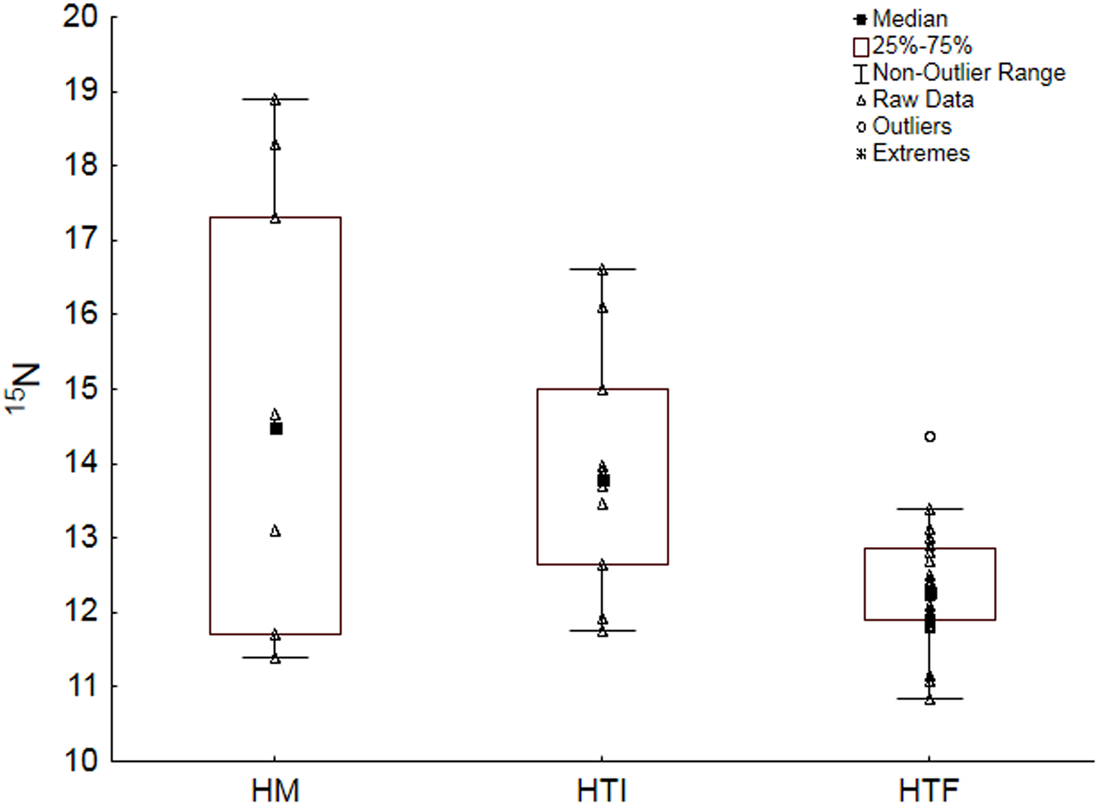
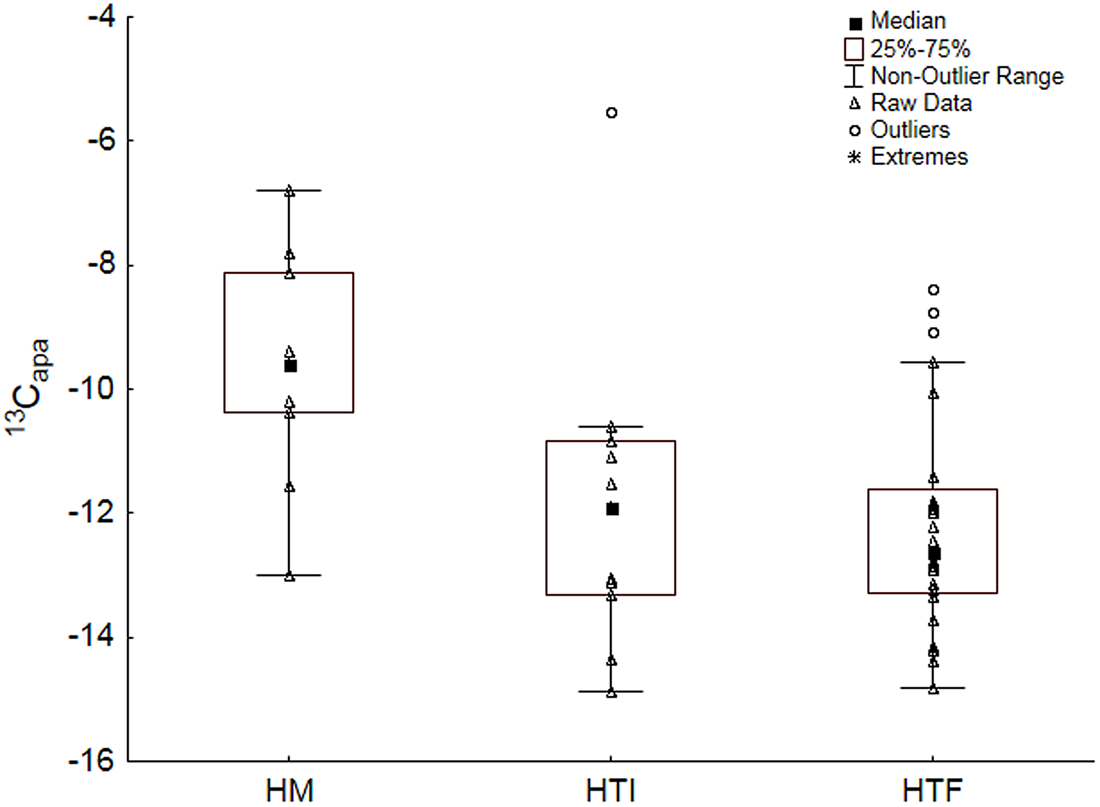
Los valores de isótopos estables en restos humanos indican variaciones en el δ13Ccol a lo largo del tiempo (Figura 2; Tabla Suplementaria 2). Durante el HM se registra la mayor amplitud de variación en relación con los dos bloques temporales del Holoceno tardío. Además, se observaron valores más negativos durante el Holoceno tardío (entre 2,5‰ y 3‰ en la media) con respecto al HM (Figura 2). Un patrón similar en la dispersión de los datos se registra en el δ15N, ya que en el HM el rango de distribución es mayor respecto del Holoceno tardío. Pero en este isótopo estable se observa una tendencia gradual hacia valores más negativos durante el HTI (1‰), que se acentúa hacia el HTF (2‰; Figura 3; Tabla Suplementaria 2). Por su parte, los datos de δ13Capa indican que hay un cambio hacia valores más negativos (2‰) al comparar el bloque temporal del HM respecto del Holoceno tardío (Figura 4; Tabla Suplementaria 2). En los tres marcadores isotópicos no se registraron variaciones en relación con la determinación sexual de los individuos por bloque temporal (Tabla Suplementaria 3).
Diagrama de caja con los valores de δ13Ccol por bloques temporales.

Diagrama de caja con los valores de δ15N por bloques temporales.

Diagrama de caja con los valores de δ13Cap por bloques temporales.

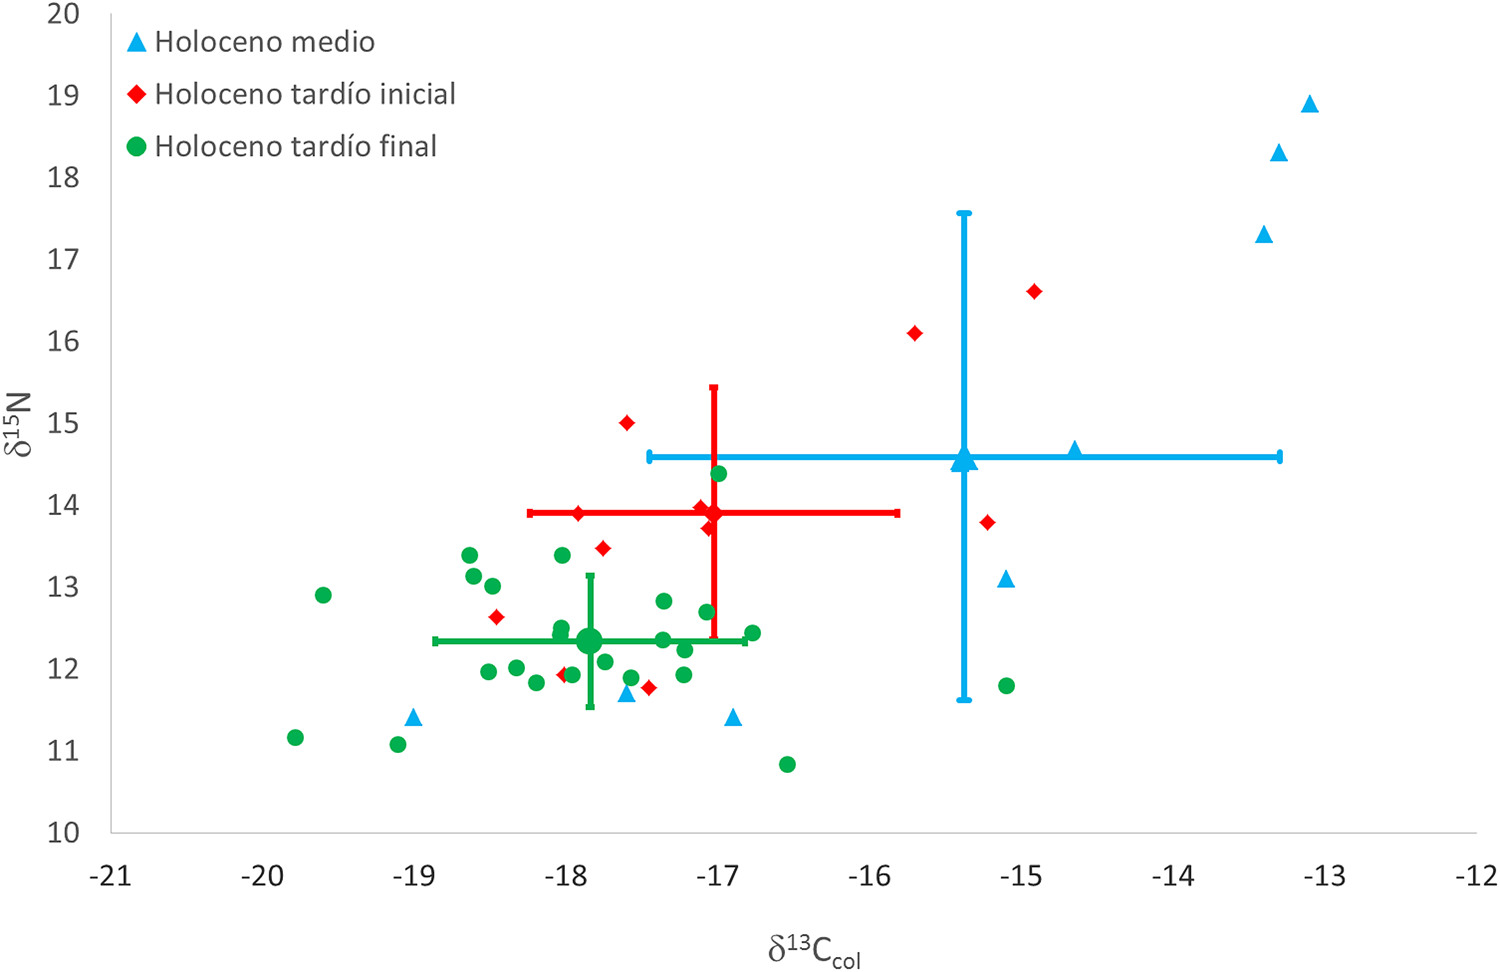
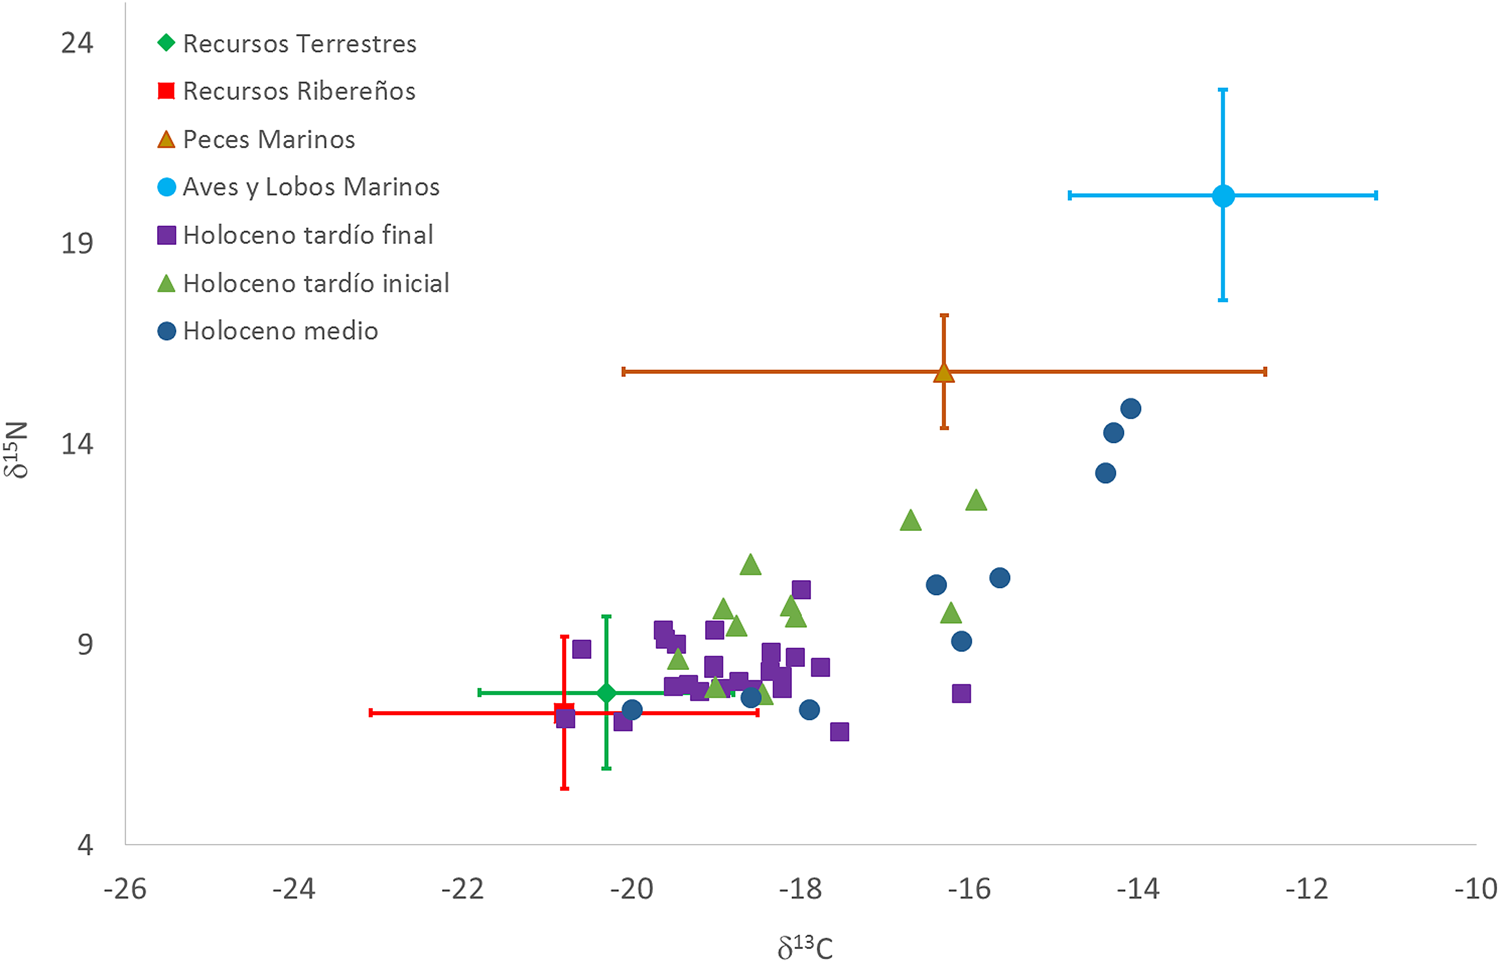
La correlación entre δ13Ccol y δ15N (Figura 5) indica que durante el HM la dieta proteica fue variable. Se observan individuos con valores isotópicos que sugieren dietas marinas (δ13Ccol = −13‰ y δ15N = 17–19‰), dietas mixtas (δ13Ccol = −15‰ y δ15N = 13–15‰) y dietas terrestres (δ13Ccol = −17/−19‰ y δ15N = 11–12‰). Independientemente de esta tendencia, cuando se considera la variable espacial para este bloque temporal se observa que aquellos individuos inhumados en proximidades de la costa atlántica (e.g., Cantera de Rodados Villalonga y Tres Bonetes 1) se caracterizan por dietas predominantemente marinas a mixtas. Por el contrario, aquellos individuos enterrados en el interior, a aproximadamente 60 km de la costa (e.g., La Modesta y Loma de los Morteros) se caracterizan por dietas terrestres (Tabla 3).
Distribución de isótopos estables de carbono y nitrógeno para proteínas en restos humanos. (Color en la versión electrónica)

Por su parte, durante el Holoceno tardío la variabilidad disminuye. En el HTI se observan pocos individuos con valores correspondientes a dietas mixtas (δ13Ccol = −15/−16‰ y δ15N = 14–17‰). La mayoría se ajusta a dietas predominantemente terrestres (δ13Ccol = −17/−18,5‰ y δ15N = 12,5–14‰). En este bloque temporal, excepto por un caso (Tres Bonetes 1), todos los sitios provienen del interior. Resulta interesante apuntar que el único individuo inhumado en la costa (Tres Bonetes 1-E4; Figura 1) muestra señales de dietas mixtas y que un sitio localizado a aproximadamente 20 km del mar (La Primavera) contiene individuos con dietas mixtas (n = 2) y terrestres (n = 4), simultáneamente. En contraste, en los sitios localizados a una distancia entre 60 y 90 km de la costa (e.g., El Puma 2, Zoko Andi 1, Loma de los Morteros), se recuperaron individuos con dietas terrestres (Tabla 3).
Durante el HTF se observa una menor dispersión de los valores isotópicos. La mayoría de los individuos presenta valores asignables a dietas terrestres (δ13Ccol = −17/−18,7‰ y δ15N = 12–13,5‰). En este bloque temporal, excepto por un individuo del sitio de San Antonio 2, emplazado a una distancia de aproximadamente 4 km de la actual costa atlántica, los restos provienen de sitios localizados en el interior, entre 60 y 130 km de la costa. El mencionado individuo de San Antonio 2 presenta el mayor enriquecimiento del δ15N en la muestra y corresponde al rango de dietas mixtas. Para el resto de los individuos la dieta se caracterizó exclusivamente por componentes terrestres (Tabla 3).
La integración holística de los valores de δ13Cap, δ13Ccol y δ15N en el marco del modelo multivariado de Froehle y colaboradores (Reference Froehle, Kellner and Schoeninger2012) indica diferencias entre los tres bloques temporales (Figura 6). Para el HM se observan individuos dentro de grupos correspondientes a proteínas marinas (cluster 3) y también de origen terrestre con dietas 100% C3 (cluster 1), aunque en algunos casos con aportes de dietas C4 en porcentajes variables (clusters 4 y 5). Durante el HTI predominan los individuos con proteínas y dietas 100% C3 (cluster 1); sin embargo, nuevamente en un caso se observa el aporte de dietas C4 (cluster 5). Para ambos bloques temporales un número reducido de individuos está por fuera de los grupos definidos; estos son interpretados como parte de una dieta mixta. El conjunto de datos que representa el HTF se caracteriza principalmente por la ingesta de proteínas y energía 100% C3 (cluster 1), con algunas leves variaciones según el aporte de dieta C4 (cluster 4).
Valores de individuos en relación a los grupos dietarios generados por el modelo de Froehle y colaboradores (Reference Froehle, Kellner and Schoeninger2012), con base en funciones discriminantes (F1 y F2). (Color en la versión electrónica)

Discusión
Interpretación Paleodietaria
La comparación de los datos de isótopos estables de los restos humanos con los de la ecología isotópica (Figura 7) indica que los individuos correspondientes al HM consumieron diferentes tipos de peces marinos (e.g., Genidens barbus, Micropogonias furnieri), así como aves y pinnípedos (e.g., Otaria flavescens). También algunos individuos se habrían alimentado de peces marinos y de herbívoros terrestres (e.g., Rhea americana, Lama guanicoe, Myocastor coypus). Por último, un grupo de individuos muestra preferencia por los herbívoros terrestres y peces de agua dulce (e.g., Percichthys sp.). En el caso de los individuos fechados para el HTI, se infiere también el consumo tanto de peces marinos (e.g., Genidens barbus, Micropogonias furnieri) como de fauna terrestre (e.g., Rhea americana, Lama guanicoe; Dolichotis patagonum). Por último, para el grupo de individuos del HTF se infiere la ingesta preferencial de herbívoros terrestres como guanaco y ñandú y peces de agua dulce (e.g., Percichthys sp.). Esta tendencia hacia un mayor consumo de proteínas de herbívoros terrestres y peces de agua dulce a través del tiempo, de manera simultánea con la disminución en la ingesta de recursos marinos, podría deberse a una dieta más continental durante el Holoceno tardío.
Valores de isótopos estables de δ13Ccol y δ15N para diferentes recursos del noreste de Patagonia asociados con valores de restos humanos del área de estudio. (Color en la versión electrónica)

La información geomorfológica (Martínez y Martínez Reference Martínez and Martínez2011, Reference Martínez, Martínez and Martínez2017; Weiler Reference Weiler1983), paleoambiental (Fayo et al. Reference Fayo, Espinosa, Vélez-Agudelo, Pan and Isla2018; Fernández Reference Fernández2012; Martínez Reference Martínez and Martínez2017; Stoessel et al. Reference Stoessel, Bogan, Martínez and Agnolin2008; Weiler Reference Weiler2000) y de temperaturas oceánicas (Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009) obtenida para la transición pampeano-patagónica oriental y el noreste de Patagonia no ofrece evidencias sobre cambios climáticos y ambientales de magnitud durante el Holoceno que pudieran generar modificaciones en la distribución natural de los recursos, principalmente en relación con las comunidades vegetales del monte-espinal, las especies faunísticas características del Distrito Patagónico y la representación de peces marinos. Además, según las investigaciones zooarqueológicas en la transición pampeano-patagónica oriental, no se observaron diferencias en la representación de especies de artiodáctilos, roedores, peces fluviales y aves en los sitios arqueológicos durante todo el Holoceno medio y tardío (Alcaráz Reference Alcaráz2017; Stoessel y Alcaráz Reference Stoessel, Alcaráz and Martínez2017), dando cuenta de una continuidad temporal de la fauna local.
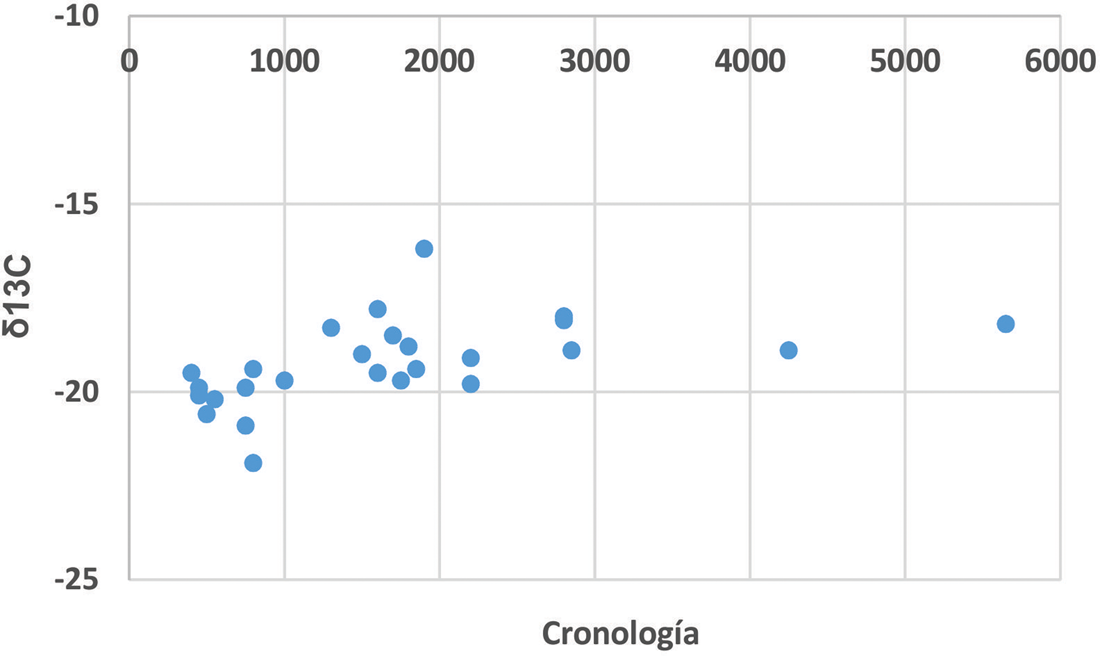
La distribución de los valores de δ13Ccol obtenidos para el guanaco (n = 26) provenientes de contextos arqueológicos del CIRC y asignables al Holoceno medio y tardío presenta un rango de entre −21,9‰ y −16,2‰ (Tabla 2; Figura 8; Tabla Suplementaria 4). Excepto por un caso, los valores son esperables para herbívoros consumidores de plantas C3. El análisis de los valores de esta especie por bloques temporales dio cuenta de diferencias estadísticamente significativas entre el HM y HTF, pero principalmente entre el HTI y HTF (Tabla Suplementaria 4). Esto indica que los guanacos consumieron vegetales con valores de δ13C más negativos (ca. 1,5‰) durante los últimos 1.000 años, en relación con los bloques temporales previos. De todos modos se puede inferir que los guanacos habrían consumido preferentemente vegetales de tipo C3, manteniendo de este modo la misma línea de base a través del tiempo. Esto también muestra que no habrían ocurrido cambios ambientales que modificaran la distribución y representación de vegetales en el área de estudio. En consecuencia, los resultados indican que las variaciones observadas en los valores de isótopos estables en restos humanos a través del tiempo no responderían a un cambio en la ecología terrestre del área, ni probablemente en el ambiente marino. Las dietas habrían estado sujetas a diferentes estrategias de explotación y consumo de los recursos y a cambios en la movilidad, en los rangos de acción y en los patrones de asentamiento.
Distribución de valores de δ13Ccol en especímenes de Lama guanicoe provenientes de sitios arqueológicos del área de estudio. (Color en la versión electrónica)

En este trabajo se destaca una tendencia en la distribución de los valores de isótopos estables en función del lugar en que fueron inhumados los individuos, principalmente durante el HM y, posiblemente, en el HTI. Esta indica que aquellos esqueletos enterrados en una distancia de hasta 20 km de la costa atlántica presentan señales principalmente de origen marino y, en menor medida, mixto, mientras que aquellos localizados a una distancia mayor muestran dietas preferentemente terrestres. Al tener en cuenta que se trata de formaciones sociales relativamente abiertas, con importantes rangos en su movilidad y con amplio conocimiento del territorio, de las diferentes geoformas, ambientes y distribución de los recursos (Martínez Reference Martínez and Martínez2017), sería esperable la existencia de una dieta relativamente homogénea a nivel espacial y temporal. Sin embargo, esta expectativa no se cumple ya que se observa una coincidencia entre lo que indican las dietas inferidas y la ecología de aquellos lugares donde los individuos fueron inhumados.
Isótopos Estables Integrados a Otras Líneas de Análisis en la Transición Pampeano-Patagónica Oriental
La comparación entre los resultados de isótopos estables y la información obtenida desde otras líneas de investigación como la zooarqueología es necesaria para complementar la discusión. Aunque ambos campos de estudio comprenden diferentes escalas de análisis, ya que los isótopos estables ofrecen información a nivel del individuo y el conjunto arqueofaunístico implica un promedio de los recursos explotados a escala grupal (Borrero y Barberena Reference Borrero and Barberena2006; Katzenberg Reference Katzenberg, Katzenberg and Saunders2008), algunas tendencias pueden ser delineadas.
Los estudios arqueofaunísticos realizados en un sitio del interior (La Modesta), que corresponde al HM, indican la explotación de ungulados (Lama guanicoe), peces de agua dulce (Percichthys sp.), roedores grandes (Myocastor coypus), aves medianas y, posiblemente, armadillos (Alcaráz Reference Alcaráz2017; Martínez Reference Martínez and Martínez2017; Stoessel Reference Stoessel2015). Esto coincide con la señal isotópica de los individuos que fueron inhumados en el interior. Sin embargo, desde los isótopos estables se observa una mayor amplitud en la dieta durante este bloque temporal debido a la incorporación de recursos marinos por parte de los individuos que fueron enterrados cerca de la costa atlántica. Además, se destaca la ingesta de recursos marinos de niveles tróficos altos como corvina rubia y pinnípedos. Aunque no se han registrado evidencias de explotación humana de pinnípedos ni presencia de colonias de lobos marinos en el área del CIRC (Carrara Reference Carrara1952; Martínez et al. Reference Martínez, Zangrando and Prates2009), los valores isotópicos podrían indicar la ingesta de este tipo de fauna durante el HM (Flensborg et al. Reference Flensborg, Martínez and Tessone2018). Este recurso pudo ser obtenido en sectores cercanos al área de estudio, como Península San Blas (Figura 1; Borella et al. Reference Borella, Frontini and Bayón2017).
Para el caso del Holoceno tardío, a partir del análisis de los conjuntos faunísticos de varios sitios se observaron diferencias respecto a las especies representadas y explotadas entre los bloques del HTI y HTF (Alcaráz Reference Alcaráz2017; Stoessel Reference Stoessel2014; Stoessel y Alcaráz Reference Stoessel, Alcaráz and Martínez2017). Durante el HTI la dieta estuvo basada en el consumo del guanaco, complementado con el venado y ñandú. Por el contrario, hacia el HTF, la dieta se habría diversificado, con la incorporación de especies de tamaño menor (e.g., aves, armadillos, peces fluviales y marinos) y algunos recursos que ya venían siendo consumidos habrían sido explotados intensivamente. Este es el caso del guanaco, para el cual se propuso una maximización del aporte nutricional de las carcasas a través del consumo de médula y grasa ósea (Stoessel Reference Stoessel2014; Stoessel y Alcaráz Reference Stoessel, Alcaráz and Martínez2017; Stoessel y Martínez Reference Stoessel2014). En el caso de los peces, las especies fluviales son las más abundantes en los sitios localizados en el delta, principalmente la perca. En cambio, en los sitios de la costa (localidad arqueológica San Antonio; Figura 1) el bagre de mar fue la especie más explotada y consumida, seguida por la corvina rubia, la perca y, en menor medida, condrictios (e.g., chuchos; Stoessel y Alcaráz Reference Stoessel, Alcaráz and Martínez2017). Además, en varios sitios se observaron claras evidencias de consumo de roedores grandes (e.g., vizcacha y coipo) y de porte menor (e.g., rata nutria, caviomorfos como tuco-tuco o cuises). Dentro del grupo de las aves medianas se identificó la explotación de bandurria, gaviota, garza bruja, pato y, entre las aves pequeñas, de benteveo (Stoessel y Alcaráz Reference Stoessel, Alcaráz and Martínez2017).
Los resultados isotópicos indican que durante el HTI los grupos consumieron herbívoros terrestres y también peces marinos. Por el contrario, durante el HTF en el marco de la diversificación e intensificación de la subsistencia se destaca una homogeneización en la dieta de los individuos, ya que recursos terrestres y peces fluviales habrían constituido la principal fuente de proteínas como lo indica el registro arqueofaunístico. La propuesta realizada desde la evidencia zooarqueológica acerca del uso estacional de la costa para abastecerse de recursos marinos (e.g., peces) durante los últimos 1.000 años (Martínez et al. Reference Martínez, Armentano, Stoessel, Martínez, Alcaráz, González, Valero, Berón, Luna, Bonomo, Montalvo, Aranda and Aizpitarte2010) debe ser reevaluada. Aunque no se desestima el consumo de peces marinos en alguna escala, los resultados presentados en este trabajo indican que su ingesta no habría sido de la magnitud que originalmente se había propuesto (Martínez et al. Reference Martínez, Zangrando and Prates2009).
Respecto del rol de las plantas en la subsistencia, a través del análisis tecno-morfológico de los materiales de molienda y la presencia de diseños más formales durante el HTF, se propuso que se habría producido una intensificación en la explotación y consumo de este tipo de recursos (Armentano Reference Armentano, Berón, Luna, Bonomo, Montalvo, Aranda and Aizpitarte2010). Esta misma idea fue apoyada a través de los análisis de patologías dentales, ya que en relación con el HTI se observó un incremento en la frecuencia de algunas variables (e.g., caries y cálculos dentales) como producto de una mayor ingesta de carbohidratos provenientes de vegetales (Flensborg Reference Flensborg2013, Reference Flensborg2015). Los valores isotópicos obtenidos de la fracción inorgánica indican que el rol de los vegetales de tipo C3 fue importante durante todos los bloques temporales estudiados, pero principalmente durante el HTF, lo que coincide con lo reportado por las líneas de análisis anteriores. No obstante, este trabajo indica que la ingesta de recursos con energía C4 estuvo presente a través del tiempo, posiblemente debido al consumo de vegetales de tipo CAM. Además, se observó que los individuos que fueron inhumados en el interior muestran una mayor dependencia de los recursos vegetales que aquellos que fueron inhumados cerca de la costa, estableciendo otra diferencia a nivel espacial.
Cambios en las Paleodietas desde una Perspectiva Regional
Varios estudios de isótopos estables fueron llevados a cabo en el sudeste de la Región Pampeana con el propósito de evaluar paleodietas humanasFootnote 1. Politis y colaboradores (Reference Politis, Scabuzzo and Tykot2009) realizaron análisis en 31 individuos provenientes de dos sitios arqueológicos (Arroyo Seco 2 y Monte Hermoso 1) con cronologías entre 7800 y 4500 aP, que indican una dieta variada (Politis et al. Reference Politis, Scabuzzo and Tykot2009:Tabla 3). Los individuos inhumados en lugares distantes de la costa (Arroyo Seco 2) presentan una dieta basada en plantas C3 y herbívoros consumidores de vegetales C3 y, en menor grado, plantas de tipo C4, de acuerdo con los valores de δ13Ccol (media = −18,8‰), δ13Cap (media = −9,8‰) y δ15N (media = 11,9‰). También se infirieron dietas mixtas (δ13Ccol = −17,25‰; δ13Cap = −9,94‰; δ15N = 11,79‰) y, en un caso, una ingesta significativa de recursos marinos (δ13Ccol = −12,4‰; Politis et al. Reference Politis, Scabuzzo and Tykot2009). En contraste, los valores isotópicos para aquellos individuos recuperados en un sitio costero (Monte Hermoso 1) indican una dieta basada en recursos marinos (δ13Ccol = −13,4‰). Bonomo y colaboradores (Reference Bonomo, Scabuzzo and León2013) analizaron cuatro individuos de tres sitios diferentes (Necochea, Meseta del Chocorí y Arroyo del Moro), localizados cerca de la costa atlántica, con cronologías entre 7600 y 6900 aP. Los valores de δ13Ccol (media = –17,2‰), δ13Cap (media = −9,4‰) y δ15N (media = 14,9‰) indican dietas mixtas caracterizadas por la ingesta de herbívoros consumidores de vegetales C3 y la incorporación de cantidades variables de proteínas marinas (Bonomo et al. Reference Bonomo, Scabuzzo and León2013:Tabla 4). Barrientos y colaboradores (Reference Barrientos, Catella and Oliva2015) realizaron análisis de isótopos estables en 18 individuos procedentes de siete sitios arqueológicos del interior (e.g., Laguna Los Chilenos 1, Laguna Chasicó), con cronologías que corresponden a 4000–500 aP (Barrientos et al. Reference Barrientos, Catella and Oliva2015:Tabla 1). Los valores de δ13Ccol (media = –17,1‰) y δ15N (media = 11,2‰) indicaron dietas fundamentalmente terrestres o continentales, basadas en el consumo de vegetales C3 y, mayoritariamente, de animales consumidores de dichos vegetales, tales como guanaco, venado, dasipódidos y rheidos. Si bien no se descartó el consumo de vegetales C4 y CAM o de recursos marinos, el aporte de los mismos habría sido marginal (Barrientos et al. Reference Barrientos, Catella and Oliva2015). Por su parte, en el sudoeste de la provincia de Buenos Aires, se realizaron análisis isotópicos en cinco individuos procedentes de diferentes sitios localizados en el interior (e.g., Laguna del Sauce, Villa Sapito, Laguna Toro; Scabuzzo et al. 2016:Tabla 1), que corresponden al Holoceno tardío (ca. 2400–700 aP). Los valores de δ13Ccol (media = −17,4‰), δ15N (media = 12‰) y δ13Cap (media = −13,5‰) permitieron inferir una dieta caracterizada por un importante componente cárnico, basada en la ingesta de animales terrestres consumidores de vegetales C3 (e.g., guanaco, venado, coipo y ñandú), aunque no se descartó el consumo en pequeña escala de alimentos marinos (Scabuzzo et al. Reference Scabuzzo, Frontini, Vecchi and Bayón2016). Bonomo y colaboradores (Reference Bonomo, Scabuzzo and León2013), sobre la base de la integración de los resultados de los isótopos estables y de la evidencia arqueofaunística, observaron que a fines del Holoceno temprano y durante el HM, la evidencia indica una explotación más intensiva de recursos marinos en los sitios costeros y de tipo más continental en los sitios del interior. En cambio, para el Holoceno tardío la dieta se habría basado principalmente en los recursos terrestres, tanto en los sitios localizados en el interior como en la costa, por lo que se propuso una continentalización de la dieta hacia el Holoceno tardío (Bonomo et al. Reference Bonomo, Scabuzzo and León2013).
En el noreste de Patagonia, en la costa norte del Golfo San Matías (Figura 1), los valores de isótopos estables correspondientes al bloque temporal del HM provienen de un individuo (δ13C = −11,5‰), e indican dieta marina (Favier Dubois y Scartascini Reference Favier Dubois and Scartascini2012). En el caso del Holoceno tardío los resultados mostraron un cambio en la intensidad de uso de los recursos marinos por parte de los grupos cazadores-recolectores (Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009; Scartascini Reference Scartascini2017). Los valores de δ13C y δ15N obtenidos sobre 21 individuos de 10 sitios (e.g., Cima de los Huesos, Saco Viejo, El Buque Sur; Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009:Tabla 1) permitieron diferenciar claramente dos períodos en cuanto a la señal paleodietaria (Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009:Figuras 3 y 4, Tabla 4). El primero (ca. 3100–2200 aP) se caracterizó por valores que sugieren dietas predominantemente marinas de elevado nivel trófico (media δ13C = −13,8‰; δ15N = 15,6‰), que incluyen peces (principalmente corvina rubia), crustáceos y lobos marinos. El segundo período (ca. 1500–420 aP) mostró valores que indican dietas mixtas a predominantemente terrestres, de menor nivel trófico en promedio (media δ13C = −17,9‰; δ15N = 12,1‰; Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009). En este caso se observó un mayor consumo de recursos terrestres como herbívoros que se alimentan principalmente de plantas C3 (e.g., guanaco, rheidos y pequeños vertebrados), aunque sin abandono de la fauna marina. Favier Dubois y colaboradores (Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009) indicaron que la señal paleodietaria más temprana mostró una fuerte focalización en los recursos marinos en un momento coincidente con un aumento de la temperatura marina. Luego, posibles cambios en la temperatura, en conjunto con modificaciones en la morfología costera, habrían impactado en la disponibilidad y distribución de los recursos, generando cambios en las estrategias de explotación de los mismos (Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009). Sobre la base de los elevados valores de nitrógeno obtenidos para algunas plantas comestibles de la zona (entre 5‰ y 6‰), así como por la presencia de abundantes morteros en los sitios tardíos, se propuso un mayor aprovechamiento de los vegetales entre aproximadamente 1500 y 420 aP.
Finalmente, para la subregión Pampa Seca (Figura 1) los datos fueron obtenidos de 25 individuos procedentes de cinco sitios arqueológicos (e.g., Chenque I, Tapera Moreira 3, La Lomita; Berón et al. Reference Berón, Luna and Barberena2009:Tabla 1) que corresponden al Holoceno tardío (ca. 3000–300 aP; Barberena et al. Reference Barberena, Berón, Luna and Berón2018; Berón et al. Reference Berón, Luna and Barberena2009). Los valores de δ13Ccol (media = −17,6‰), δ13Cap (media = −12,3‰) y δ15N (media = 13,4‰) señalan dietas continentales basadas en plantas C3 y de herbívoros terrestres consumidores de plantas C3. Sin embargo, en algunos individuos con cronologías posteriores a 700 aP, se observó la probable ingesta de recursos marinos (Berón et al. Reference Berón, Luna and Barberena2009).
Los resultados generados en este trabajo indican la existencia de algunas tendencias similares con aquellos reportados en regiones vecinas. Para el sudeste de la Región Pampeana se observó un decrecimiento en el consumo de recursos marinos a través del Holoceno, caracterizado por una dieta preferentemente de tipo continental durante el Holoceno tardío. Los resultados de este trabajo permiten proponer que el modelo de continentalización planteado para esta región (Bonomo et al. Reference Bonomo, Scabuzzo and León2013) podría extenderse hasta la transición pampeano-patagónica oriental. En cambio, en la zona del Golfo San Matías, si bien hay una disminución en la ingesta de recursos marinos y una incorporación a la dieta de productos de origen terrestre en mayor frecuencia durante los últimos 1.500 años, continúa el consumo de lobos y peces marinos (Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009), aspecto que no es detectado a través de los isótopos estables en el CIRC. Respecto del consumo de vegetales, tanto en la transición pampeano-patagónica oriental como en la costa norte del Golfo San Matías se registra una mayor ingesta de plantas C3 hacia los últimos 1.500–1.000 años.
Conclusiones
Este trabajo constituye la primera síntesis que aborda las variaciones temporales y espaciales en las dietas de los grupos humanos que ocuparon espacios costeros e interiores en la transición pampeano-patagónica oriental durante el Holoceno medio y tardío. Desde una perspectiva temporal, los resultados obtenidos indican la existencia de dietas más variadas (marinas, mixtas y terrestres) en el Holoceno medio que se tornan exclusivamente terrestres hacia el tardío. Esta característica coincide con la tendencia propuesta para el sudeste de la Región Pampeana y presenta algunas diferencias, principalmente relacionadas al rol en el consumo de recursos marinos, con otras microrregiones vecinas como la costa norte del Golfo San Matías.
Este caso de estudio introduce un nuevo escenario a la diversidad paleodietaria inferida a nivel macroregional para el sudeste de la Región Pampeana y Patagonia. Así, desde una perspectiva espacial, como ha sido mencionado en la introducción, señales de dietas que incorporaron algún componente marino fueron registradas con un límite máximo de aproximadamente 90 km desde la línea de costa actual. Sin embargo, el caso de estudio aquí presentado muestra que este límite se estableció a solo 20 km de la misma. Específicamente para el Holoceno medio y, posiblemente, el Holoceno tardío inicial, se detectaron dietas preferentemente marinas-mixtas en ambientes próximos a la costa (ca. 0–20 km) y exclusivamente terrestres hacia el interior (ca. 20–130 km). Estas diferencias espaciales en las señales isotópicas estarían relacionadas a rangos de acción acotados por parte de los grupos que ocuparon la costa atlántica (Borrero y Barberena Reference Borrero and Barberena2006; Borrero et al. Reference Borrero, Barberena, Franco, Charlin and Tykot2009) o a sistemas de cobertura y ocupación del espacio relacionados a una demarcación social del mismo (Dewar Reference Dewar2010; Sealy Reference Sealy2006). En este último caso se trataría de comportamientos territoriales que indicarían, a través de pautas alimenticias diferenciales, una dimensión social de la movilidad y del uso del paisaje.
Agradecimientos
Esta investigación fue financiada por la Agencia Nacional de Promoción Científica y Tecnológica (PICT-242-12, PICT-616-15 y PICT-840-17) y National Geographic Society (NGS 9756-15). Gracias a INCUAPA-CONICET, Facultad de Ciencias Sociales, Universidad Nacional del Centro de la Provincia de Buenos Aires y al Instituto de Geocronología y Geología Isotópica. Los aportes de tres evaluadores anónimos fueron de suma importancia para mejorar este trabajo.
Declaración de Disponibilidad de Datos
Los datos utilizados en este artículo se encuentran disponibles en bases de datos de la UE INCUAPA-CONICET-UNICEN. En caso de que sean necesarios datos más detallados, estos pueden ser solicitados al primer autor.
Material Suplementario
Para acceder al material suplementario que acompaña este artículo visitar https://doi.org/10.1017/laq.2019.72.
Tabla Suplementaria 1. Valores de isótopos estables (δ13C y δ15N) de recursos procedentes del CIRC reportados por Martínez et alia (Reference Martínez, Zangrando and Prates2009) y Flensborg et alia (Reference Flensborg, Martínez and Tessone2018).
Tabla Suplementaria 2. Estadística descriptiva de los valores de isótopos estables por bloque temporal.
Tabla Suplementaria 3. Valores de isótopos estables y estadística descriptiva por sexo en cada bloque temporal.
Tabla Suplementaria 4. Valores de δ13Ccol correspondientes a Lama guanicoe por bloque temporal y análisis estadístico.