Introducción
Según Lucena (Reference Lucena Salmoral1987), fue Sebastián de Belalcázar, procedente de Panamá en 1534, quien arribó al Ecuador en la conquista del Reino de Quito, el que trajo los primeros bovinos Bos taurus, los cuales eran animales con una aptitud a más de la producción de carne y leche, de tracción de carretas, función tan importante para aquella época en las zonas alto andinas con un relieve tan irregular. Estos bovinos criollos han tenido un proceso de adaptación largo de cinco siglos a los diversos climas y ambientes, primero en un proceso de selección natural y luego con la intervención del hombre, en la búsqueda de animales funcionales para estos ecosistemas de montaña. Desde esa época el territorio ecuatoriano estuvo poblado exclusivamente por bovinos criollos (ibéricos naturalizados). Es a partir de los primeros años del 1900 (Pinzón, Reference Pinzón1984), en que se inició la introducción de bovinos extranjeros para la producción de carne y de leche por la creencia de que estas razas son la mejor alternativa para los ganaderos, pues los resultados relativamente favorables obtenidos al inicio, fueron atribuidos a las aptitudes de las razas introducidas y no al vigor híbrido que produce el mestizaje. Con el transcurso del tiempo y los cruzamientos desordenados, se han producido procesos de absorción de los animales criollos, y como consecuencia el número de estas poblaciones ha disminuido drásticamente.
Sin embargo, a pesar de ello aún se reporta la existencia de ganado bovino criollo en algunos lugares apartados del Ecuador, como es en la RSE limítrofe con el norte del Perú, donde aún se pueden encontrar poblaciones de bovinos criollos en núcleos pequeños y heterogéneos, los mismos que por sus particularidades fenotípicas y genotípicas han logrado sobrevivir y desarrollarse en condiciones complejas, adquiriendo características propias que les permitieron adaptarse y prosperar en este hábitat. Al respecto, De Alba (Reference De Alba and Papiro Omega2009) y Aguirre et al. (Reference Aguirre, Bermeo, Maza and Merino2011) manifiestan que estos animales poseen características de adaptación a estos ecosistemas, como: tolerancia al calor y sequedad, con temperaturas sobre los 26°C; estatura pequeña y gran fortaleza, lo que les permite caminar grandes distancias por pedregales y terrenos irregulares en busca de alimento y abrevaderos; resistencia a los parásitos y excelente fertilidad e instinto materno.
Los bovinos criollos cumplen un rol importante en la vida de las comunidades campesinas marginales de la RSE, pues constituyen una fuente de sustento y trabajo, su leche, su carne, la venta misma de animales y su utilización como medio de tracción animal benefician estas regiones geográficamente apartadas en donde la mecanización agrícola no es posible y la crianza de otros bovinos sería insostenible.
La presente investigación se orientó a realizar un estudio genético con el uso de marcadores moleculares para determinar la variabilidad intrapoblacional y el grado de influencia de las razas ibéricas y cebuinas en esta población de bovinos y promover de esta forma estrategias para el manejo y conservación de este importantísimo material genético de esta parte de los Andes del Ecuador.
Materiales y métodos
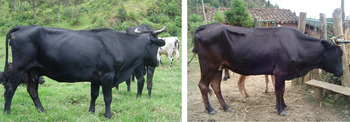
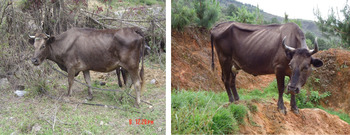
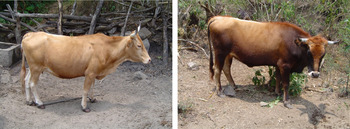
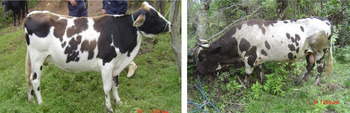
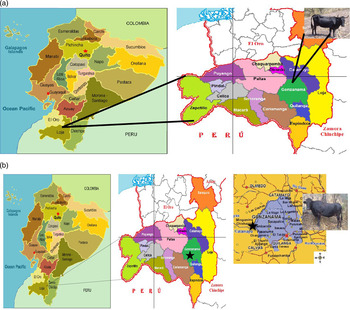
El análisis genético se realizó en 46 bovinos adultos de una población de 114 animales criollos, agrupados por sus características fanerópticas en cuatro grupos: 15 Negros Lojanos (Figura 1, véase las páginas 00–00), 15 Encerados (Figura 2), 9 Colorados (Figura 3) y 7 Pintados (Figura 4), provenientes de los sectores de Purunuma y Nambacola en el cantón Gonzanama, provincia de Loja, Ecuador (S 4°20′ / S 4°10′; W 79°30′ / W 79°0′5; Figura 5). Los animales seleccionados fueron de ambos sexos y se evitó considerar para el análisis más de un animal proveniente de la misma familia. Se tomaron muestras de pelo de la región terminal de la cola, que fueron identificadas y guardadas herméticamente hasta su procesamiento en el laboratorio del Departamento de Genética Molecular Aplicada de la Universidad de Córdoba, España, en donde se realizó el análisis del ADN por medio de marcadores moleculares amplificados mediante la técnica de reacción en cadena de la polimerasa (PCR). Para la separación por tamaños de los fragmentos obtenidos mediante la PCR se sometieron estos a una electroforesis en gel de poliacrilamida en un secuenciador automático ABI 377XL; el análisis de los fragmentos y la tipificación alélica se realizó mediante los programas informáticos Genescan Analysis 3.1.2 y Genotyper 2.5 respectivamente. El panel de 28 microsatélites empleados son: BM1314, BM8125, BM1818, CSSM66, ETH10, INRA32, MM12, TGLA122, BM2113, CRSM60, ETH185, HAUT27, HEL9, HEL13, ILSTS6, INRA23, INRA35, INRA37, INRA63, SPS115, TGLA227, BM1824, ETH225, ETH3, HAUT24, ILSTS011, TGLA53, TGLA126 (FAO, 2011).
Bovinos criollos ‘Negro Lojano’.

Bovinos criollos ‘Encerado’.

Bovinos criollos ‘Colorado’.

Bovinos criollos ‘Pintado’.

Cantón Gonzanama en la provincia de Loja, Ecuador, área de ubicación de los bovinos criollos.

La caracterización genética se realizó de la siguiente manera: Para el cálculo del PIC de cada microsatélite se aplicó la fórmula de Botstein et al. (Reference Botstein, White, Skolnich and Davis1980), empleándose para ello el complemento ‘The Excel Microsatellite Toolkit’ (Park, Reference Park2001), y utilizando el programa MS Excel® 2003. También se computarizaron los estadísticos F de Wright (Reference Wright1969) y Weir & Cockerham (Reference Weir and Cockerham1984), que corresponden: F = FIT, ɵ = FST y f = FIS, realizando un análisis factorial de correspondencias mediante el programa Genetix v. 4.05 (Belkhir et al., Reference Belkhir, Borsa, Chikhi, Raufaste and Bonhomme2003). Se calcularon las matrices de distancias genéticas Da (Nei & Chesser., Reference Nei and Chesser1983); para ello se emplearon los análisis genéticos de 789 individuos pertenecientes a 19 razas taurinas y cebuinas del Consorcio Biobovis de la Red CONBIAND – Criollos RSE, Retinta, Avileña, Rubia Gallega, Berrenda Colorada, Berrenda Negra, Mostrenca, Pajuna, Negra Andaluza, Canaria, Palmera, Frisona, Hereford, Pardo Suiza, Gyr, Brahman, Sindy, Guzera y Nelore – utilizando el programa Populations 1.2.28 (Olivier, Reference Olivier2002: see http://bioinformatics.org/tryphon/populations/). Con los valores obtenidos se trazaron árboles de distancias, graficando los mismos con el programa Treeview (Page, Reference Page1996) y con la matriz de distancias Da de Nei, se construyeron ‘splitsgraph’ mediante el algoritmo ‘Neighbor-Net’ con el programa SplitsTree v 4.10 (Bryant & Moulton, Reference Bryant and Moulton2004; Huson & Bryant, Reference Huson and Bryant2006).
Resultados y discusión
Variabilidad genética poblacional
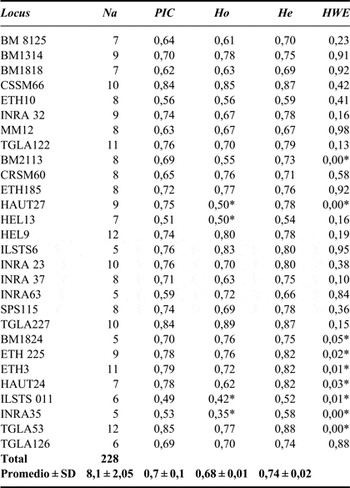
En la Tabla 1, se observa que la población bovina de la RSE presenta un total de 228 alelos, con una media de 8,14 ± 2,05 y un rango comprendido entre 5 (ILSTS6, INRA63, BM1824,INRA35) y 12 (HEL9, TGLA53) alelos por locus. Estos valores son superiores a los reportados por Villalobos (Reference Villalobos2010) para las criollas panameñas Guabala y Guaymi, y algunas razas ibéricas tales como Berrenda Colorada, Berrenda Negra, Pajuna, Mostrenca, Retinta, Negra Andaluza, siendo comparables los resultados de Na nuestros, con los obtenidos por Dalvit et al. (Reference Dalvit, De Marchi, Dal Zotto, Gervaso, Meuwissen and Cassandro2008) en cuatro razas italianas (Na = 8,2). También se determinaron los alelos únicos (Au) en los cuatro grupos poblacionales (datos no mostrados), destacando que 96 alelos son compartidos en los cuatro grupos, siendo el grupo de los Negro Lojanos el que presenta el mayor número de Au (17) y que se correlaciona con una mayor variabilidad alélica, en tanto que los Pintados poseen el menor número de Au (5) y también la menor variabilidad. En general, los marcadores que presentaron los valores más elevados son los más recomendables en caso de asignación de nuevos individuos a esta población.
Índices de variabilidad genética obtenida en los 28 loci analizados de la población criolla de la Región Sur del Ecuador.

Na: número de alelos por locus; PIC: contenido de información polimórfica; Ho: heterocigosidad observada; He: heterocigosidad esperada; HWE: equilíbrio Hardy-Weinberg.
Nota: Se destacan con * los marcadores con menor grado de heterocigosis y en desequilibrio Hardy-Weinberg
De los 28 microsatélites analizados ninguno mostró alelos con frecuencias superiores a 0,95, por lo cual todos pueden considerarse polimórficos y altamente informativos, exceptuando el HEL13 y ILSTS011, que presentan un PIC medianamente informativo; por tanto el 100 por ciento de estos marcadores son útiles para valorar la variabilidad genética del bovino criollo de la RSE, es de destacar que el PIC medio de esta población (0,7) es ligeramente superior al obtenido en la raza Guaymi panameña y la Limonero venezolana, con 0,69 y 0,65 respectivamente (Villalobos, Reference Villalobos2010; Villasmil et al., Reference Villasmil, Roman, Yañez, Contreras, Jordana and Aranguren2008).
Los valores medios de Ho y He en la población criolla de la RSE muestran valores altos de 0,676 y 0,74 respectivamente, existiendo únicamente cuatro marcadores genéticos que presentan un menor grado de heterocigosis: HAUT27, HEL13, ILSTS011 e INRA35, determinando que hay una buena variabilidad genética, si comparamos los mismos con los valores de He y Ho que se han obtenido en estudios de caracterización genética que oscilan entre 0,755 y 0,895 en razas mexicanas (Quiroz, Reference Quiroz2007); 0,461 y 0,694 en razas Argentinas (Martínez, Reference Martínez2008); 0,750 y 0,756 en el criollo Casanareño de Colombia (Sastre et al., Reference Sastre, Rodero, Rodero, Azor, Sepúlveda, Herrera and Molina2003). Por otra parte Villalobos (Reference Villalobos2010) cita los estudios hechos en seis razas autóctonas españolas que mostraron valores ligeramente inferiores de 0,564 y 0,570 (Menorquina), 0,590 y 0,512 (Lidia), 0,617 y 0,588 (Pirenaica), 0,681 y 0,666 (Asturiana); igualmente se tiene información reportada en razas autóctonas de Portugal como la Alentejana, valores de 0,677 y 0,638, Mertolenga 0,696 y 0,747, Arauquesa 0,717 y 0,730 (Mateus et al., Reference Mateus, Penedo, Alves, Ramos and Rangel-Figueiredo2004). En razas de Hungría y Austria como la Carinthian Blond y la Waldviertel Blond, se reportan valores de 0,674, 0,662 y 0,654, 0,634 respectivamente (Baumung et al., Reference Baumung, Cubric-Curik, Schwend, Achmann and Soelkner2006).
De los microsatélites analizados, nueve no se han mostrado en equilibrio Hardy-Weinberg (P < 0.1). Estos son: BM2113, HAUT27, BM1824, ETH225, ETH3, HAUT24, ILSTS011, INRA35 y TGLA53, lo que representa el 32 por ciento del total de alelos y revela que en estos animales se están operando fuerzas que están cambiando las frecuencias genotípicas ya sea por deriva genética, selección o migración, y que pone de manifiesto que hay una ligera inestabilidad genética en esta población. Estas desviaciones del equilibrio Hardy-Weinberg (HWE) pueden estar produciéndose aceleradamente debido a factores como los siguientes:
-
• en la selección y en el apareamiento de los animales hay intervención del propietario;
-
• existe migración de animales por la cercanía geográfica entre las poblaciones;
-
• no existe el criterio de tener núcleos de animales fenotípicamente homogéneos.
Vale destacar que los microsatélites ETH3, INRA35 y TGLA53 también se encontraron en desequilibrio en los bovinos criollos Patagónicos (Martínez, Reference Martínez2008) y los microsatélites BM1824, HAUT24 y HAUT27 en la población Guabala (Villalobos, Reference Villalobos2010).
Análisis intrapoblacional
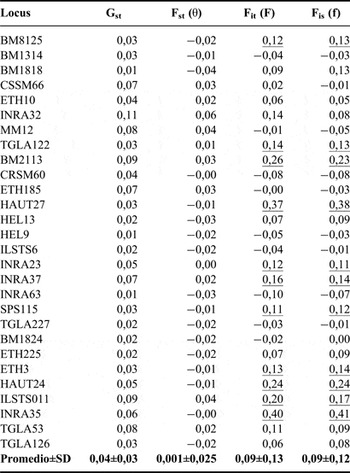
En la Tabla 2, se presentan los índices de variabilidad genética intrapoblacional considerando las cuatro subpoblaciones del bovino criollo de la RSE. El valor de Gst (coeficiente de diferenciación genética) es entre 0,0091 para el locus BM1818 y 0,115 para el INRA32, y el valor medio para todos los loci representa apenas el 4,5 ± 2,8 por ciento, lo que nos indica que la diferenciación genética entre los cuatro grupos poblacionales es muy pequeña. Esta escasa diferenciación se corrobora con los valores de Fst (grado de diferenciación genética entre las subpoblaciones) encontrados en los cuatro grupos fenotípicamente definidos, con un valor medio de Fst = 0,0008, valor muy inferior al encontrado en el ganado criollo mexicano con 0,033 (Quiroz, Reference Quiroz2007), en los bovinos criollos panameños con 0,068 (Villalobos, Reference Villalobos2010) y entre las razas bovinas europeas con 0,068 y 0,07 (Cañón et al., Reference Cañon, Alexandrino, Bessa, Carleos, Carretero, Dunner, Ferran, Garcia, Jordana, Laloe, Pereira and Moazami2001; Jordana et al., Reference Jordana, Alexandrino, Beja-Pereira, Bessa, Cañon, Carretero, Dunner, Laloe, Moazami, Sanchez and Ferrand2003). Vale indicar que si bien no hay diferencia genética entre estas cuatro subpoblaciones, si se los debe manejar como núcleos homogéneamente diferenciados por el color del pelaje, pues ello favorece el bienestar animal y la adaptación que tienen los mismos a los diferentes pisos altitudinales de la Región Andina, en donde el Negro Lojano (Figura 1) y el Encerado (Figura 2) han ido evolucionando para un clima moderado por la altura, absorbiendo y manteniendo más calor de los rayos solares para estas zonas frías y ventosas y no siendo por el color obscuro los más apropiados para las zonas andinas bajas por el stress del calor y la mayor predisposición al ataque de los ectoparásitos (De Alba, Reference De Alba and Papiro Omega2009). Para estas zonas es más conveniente mantener el grupo de los Colorados (Figura 3) y Pintados (Figura 4).
Coeficiente de variación genética (GST) y Estadísticos F de Wright: coeficiente de consanguinidad dentro de la población (Fis), coeficiente de consanguinidad total (Fit) y coeficiente de variación genética entre las subpoblaciones (Fst), por marcador en la población bovina criolla de la RSE.
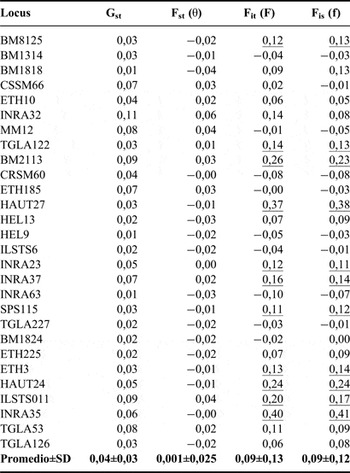
Nota: Se destacan con * los marcadores con mayor grado de consanguinidad.
El Fit (coeficiente consanguinidad total población) y el Fis (coeficiente consanguinidad subpoblaciones) indican que hay nueve marcadores que presentan valores negativos (exceso de heterocigosis); cabe destacar también que marcadores que estén con valores de Fit y Fis elevados (superiores a 0,1) indican una consanguinidad elevada, sea a nivel de población total o subpoblación. En este caso, son once los marcadores con un Fit y Fis superior a 0,10 (BM8125, TGLA122, BM2113, HAUT27, INRA23, INRA37, SPS115, ETH3, HAUT24, ILSTS011 e INRA35). De acuerdo a los resultados de estos estadísticos, la media del Fit y Fis de la población es de 8,89 y 8,92 por ciento respectivamente; valor ligeramente superior al encontrado por Martínez (Reference Martínez2008) en los bovinos Patagónicos (0,06579) y muy superior al descrito en los bovinos criollos del Noroeste de Argentina (–0,00913). Esto revela que los vacunos criollos de la RSE muestran un nivel mayor de homocigosis.
Relaciones genéticas
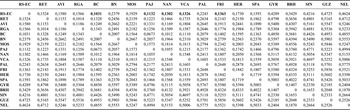
Para el cálculo de distancias se trabajó con 19 poblaciones (razas): 13 taurinas europeas, 5 índicas y la población criolla de la RSE. El tamaño de la muestra analizada fue de 789 individuos y 24 locus estudiados; se empleó el cálculo de distancia Da (Nei & Chesser, Reference Nei and Chesser1983), y la Tabla 3 muestra los valores de distancia genética de los criollos de la RSE con el resto de poblaciones. Es de destacar que los distanciamientos con las 18 poblaciones de bovinos, superan el 0,10. Las distancias menores están entre RSE:BC (0,1031), RSE:PAJ (0,1132), RSE:NAN (0,1302), RSE:VCA (0,1326) y RSE:FRI (0,1362); el mayor distanciamiento se observa entre RSE:GUZ (0,4725) y RSE:NEL (0,4624). Estos valores indican que los bovinos criollos de la RSE tienen un gran distanciamiento con las razas cebuinas y más bien sus troncos ancestrales están en las poblaciones ibéricas traídas en la conquista de América, destacándose en ello, en su orden: la Berrenda Colorada, Pajuna ó Serrana, la Negra Andaluza, la vaca Canaria y la Frisona (Holstein Friesian), población esta última importada recientemente a la región.
Matriz de distancias genéticas Da (Nei & Chesser, Reference Nei and Chesser1983), sobre 19 poblaciones de bovinos.

Abreviación de las razas: RS-EC: Región Sur del Ecuador; RET: Retinta; AVI: Avileña; RGA: Rubia Gallega; BC: Berrenda Colorada; BN: Berrenda Negra; MOS: Marismeña; PAJ: Pajuna o Serrana; NAN: Negra Andaluza; VCA: vaca Canaria; PAL: vaca Palmera; FRI: Frisona; HER: Hereford; SPA: Pardo Suizo; GYR: Gyr; BRH: Brahman; SIN: Sindi; GUZ: Guzera; NEL: Nelore.
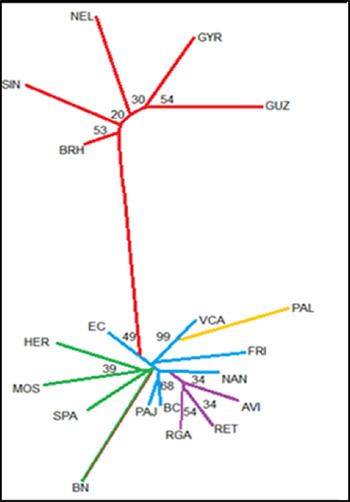
En la Figura 6, se puede observar el árbol de distancias genéticas construido mediante el algoritmo Neighbor-Net, de las 19 razas bovinas, analizadas mediante la matriz de distancias Da. Con un valor de replicación del 49 por ciento, se nota la rama distante que separa al grupo (clúster) de razas cebuinas de las taurinas, incluida la criolla de la RSE; así mismo, con un valor de replicación bajo de 39 por ciento, hay una relación genética cerrada entre la Hereford, la Marismeña y la Pardo Suiza formando un clúster; otra rama la conforman la Rubia Gallega, la Retinta y la Avileña. Hay una población separada del resto que es la Berrenda Negra; y con un nivel de remuestreo alto (99 y 68 por ciento), se forma una rama con nodos cortos que dan lugar a una relación genética entre la población criolla de la RS-EC, la Pajuna, la Berrenda Colorada, la Negra Andaluza, la vaca Canaria y la Frisona.
Árbol de distancias genéticas entre 19 poblaciones (razas) bovinas: Da, NJ. Abreviación de las razas: NEL: Nelore; GYR: Gyr; GUZ: Guzera; BRH: Brahman; SIN: Sindi; EC:Ecuador; VCA: vaca Canaria; PAL: vaca Palmera; FRI: Frisona; NAN: Negra Andaluza; AVI: Avileña; RET: Retinta; RGA: Rubia Gallega; BC: Berrenda Colorada; PAJ: Pajuna ó Serrana; BN: Berrenda Negra; SPA: Pardo Suizo; MOS: Marismeña; HER: Hereford.

En general se puede apreciar que los bovinos criollos de la RSE están muy distanciados genéticamente de las razas cebuínas y están más relacionadas con las razas de origen taurino, especialmente las razas autóctonas españolas; en este análisis también hay que destacar que a excepción de la rama de las razas índicas, prácticamente todos los nodos del árbol están próximos al origen del mismo, lo que indica que las poblaciones representadas son independientes entre sí. Estos resultados filogenéticos son similares a los encontrados por Villalobos (Reference Villalobos2010) y Martínez (Reference Martínez2008) en los bovinos criollos panameños y argentinos respectivamente, lo que demuestran el origen común que tienen los vacunos criollos de América.
Conclusiones
Los bovinos criollos de la RSE presentan una elevada variabilidad genética, demostrada en el número de alelos por locus, en el PIC y en la heterocigosidad, vale destacar el 32 por ciento de alelos que se encuentran en desequilibrio H-W, lo que demuestra una ligera inestabilidad genética que de no tomarse correctivos conllevaría a una disminución de esta valiosa diversidad. Esto se corrobora con los valores de Fit y Fis encontrados donde se evidencia que existe un exceso de homocigosis que puede deberse a una elevada consanguinidad que supera el 8 por ciento; si bien los valores de Gst y Fst, indican que no hay una diferenciación genética entre los cuatro grupos de bovinos criollos, faneróptica y fenotípicamente sí se diferencian por lo que convendría manejarlos como núcleos en forma separada por el color del pelaje, pues esto ayuda a un mejor bienestar y desenvolvimiento de los animales de acuerdo a los diferentes pisos altitudinales existentes en la región. En la determinación de las distancias genéticas se aprecia un mayor grado de acercamiento con razas ibéricas, como la Berrenda Colorada, Pajuna, Negra Andaluza, Canaria y Frisona, y un mayor alejamiento genético con las cebuinas; en todo caso los valores de distanciamiento superan el 0,10 en todos los pares en que se comparó a la criolla de la RSE con el resto de razas, lo que permite afirmar que la población bovina criolla de la RSE puede ser considerada genéticamente como una raza taurina ‘propia’ a la que hay que conservar, pues se corre el riesgo a un corto plazo de su desaparición.
Agradecimiento
Al proyecto Biobovis de la Red CONBIAND, que con su banco de material genético, contribuyó a cumplir con los objetivos propuestos en la presente investigación.