El grupo indígena que habitó el extremo septentrional de los archipiélagos patagónicos, entre el sur de Chiloé y la península de Taitao (entre 43° y 47° S; Figura 1), es conocido etnohistóricamente como Chono (Byron Reference Byron1901[1746]; Cooper Reference Cooper and Steward1946). No obstante, los registros escritos para el área mencionan una gran diversidad étnica (Álvarez Reference Álvarez2002). Los primeros avistamientos y contactos comienzan en 1553, en la península de Taitao (De Cortés Hojea Reference De Cortés Hojea1879[1557–1558]). Este grupo indígena, descrito con diferentes énfasis—cazadores, recolectores, pescadores y diestros navegantes—fue víctima del desmantelamiento cultural producto del sistema de encomiendas español, enfermedades, aculturación y traslados a misiones evangelizadoras, entre otros factores (Urbina Reference Urbina1988; Urbina Reference Urbina and Valenzuela2017). A fines del siglo dieciocho el archipiélago ya se encontraba despoblado de sus antiguos ocupantes (Fitz Roy Reference Fitz-Roy1839; García Reference García1889[1766]; Moraleda Reference Moraleda1888[1786]; Simpson Reference Simpson1875). Los Chonos fueron el primero de los grupos indígenas denominados genéricamente como canoeros en desaparecer, siendo además el que presenta la menor variabilidad y cantidad de materiales y descripciones escritas (Emperaire Reference Emperaire1963; Martinic Reference Martinic2005; Urbina Reference Urbina2014). El colapso del mundo Chono se concretó en casi doscientos años después del primer encuentro con el Occidente.
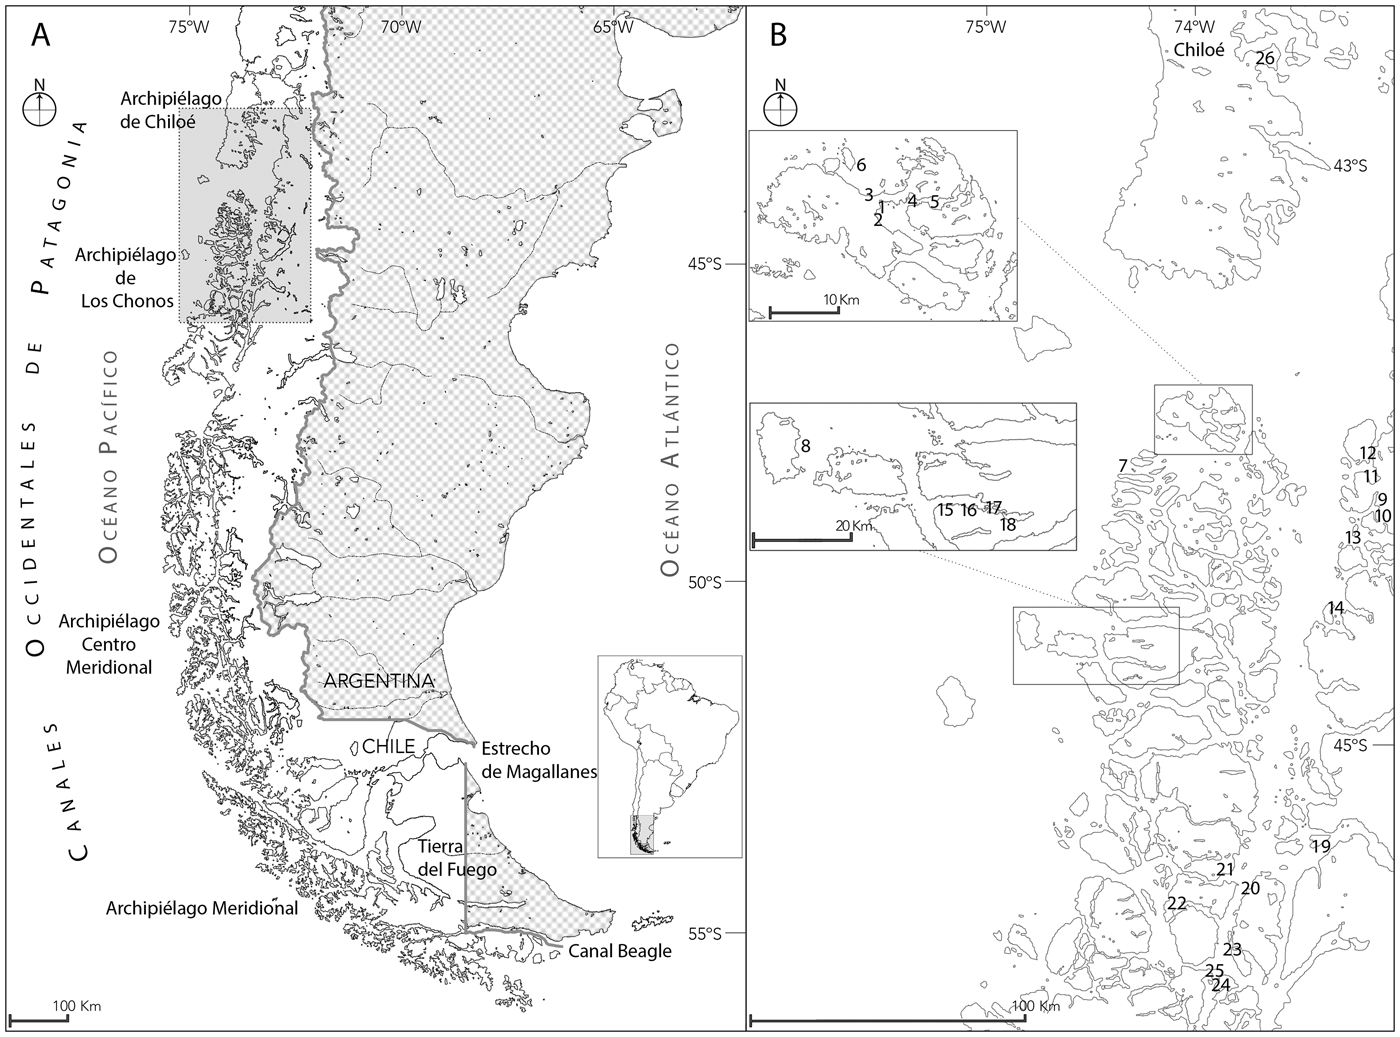
Ubicación geográfica del archipiélago de los Chonos, mostrando los sitios y lugares reseñados en el texto y tablas: (1) Gran Guaiteca 2 Conchal; (2) GUA-010 Conchal; (3) Alero Low; (4) Repollal Caverna; (5) Puquitin; (6) Isla Marta 1; (7) Isla Sin Nombre; (8) Isla Ipún 1; (9) Seno Gala 1; (10) Estero Sur; (11) Osario Melimoyu; (12) Isla Yalac 1; (13) Isla Harris; (14) Seno Canalad; (15) Isla Benjamín 1; (16) Isla Benjamín 4; (17) Isla Benjamín 2; (18) Isla Benjamín 5; (19) Isla Elena 1; (20) Nahuelquín 1; (21) Isla Victoria 2; (22) Canal Vicuña 3; (23) Isla Acuao 1; (24) Corrientes del Yates 5; (25) Corrientes del Yates 6; (26) Puqueldón.

En el contexto de las investigaciones realizadas en el archipiélago de los Chonos (entre 43°50′ S y 46°50′ S; Figura 1), en los canales occidentales de Patagonia, efectuamos una serie de registros arqueológicos y bioantropológicos que definen la ocupación de este sistema insular por parte de cazadores recolectores pescadores marinos que se extienden desde el Holoceno medio hasta el contacto europeo (6260–330 cal aP; Reyes Reference Reyes2017; Reyes et al. Reference Reyes, Moraga, Méndez and Cherkinsky2015, Reference Reyes, Román, Morello, Bjerck, Breivik, Fretheim, Piana, Skar, Tivoli and Zangrando2016). La fragmentación y distancias de este extenso sistema insular influyeron en el desarrollo de un sistema de movilidad solo posible a través de la utilización de canoas por parte de grupos especializados en la subsistencia basada en la explotación del medio litoral y marino. En vistas de las características de esta zona, densamente vegetada, de geografía escarpada, con poco acceso a terrenos planos interiores y pobre biomasa terrestre disponible, particularmente en lo que respecta a los mamíferos de tamaño mediano, la subsistencia orientada a los recursos marinos y litorales fue la única forma de ajustarse al medio. El registro arqueológico de los habitantes del archipiélago concuerda con lo esperado para grupos cazadores recolectores marinos de acuerdo a diversas consideraciones teóricas, especialmente respecto a la dieta y subsistencia (Orquera y Piana Reference Orquera and Piana2005; Perlman Reference Perlman1980; Waselkov Reference Waselkov1987; Yesner Reference Yesner1980). En este contexto, los isótopos estables de carbono y nitrógeno se presentan como una opción significativa para abordar los patrones de dieta promediados en la vida de los individuos y contrastarlos con el registro arqueológico (Barberena y Borrero Reference Barberena and Borrero2005).
Nuestro objetivo es evaluar las estrategias de subsistencia y adaptación de los grupos canoeros que habitaron la porción septentrional de los canales occidentales patagónicos a partir de la utilización de isótopos estables del carbono y nitrógeno obtenidos sobre colágeno de restos humanos y de fauna arqueológica y actual. Los isótopos estables son una herramienta de análisis indispensable en las interpretaciones en torno a la subsistencia y dieta de las poblaciones humanas en el pasado, brindando interesantes resultados para discutir la explotación de recursos litorales y marinos por parte de grupos cazadores recolectores (Barberena Reference Barberena2002; Coltrain et al. Reference Coltrain, Tackney and O'Rourke2016; Richards y Hedges Reference Richards and Hedges1999). Antecedentes del uso de isótopos estables para la reconstrucción de dietas se circunscriben a los sectores meridionales de los canales occidentales (Barberena Reference Barberena2002; Borrero et al. Reference Borrero, Guichón, Tykot, Kelly, Prieto and Cárdenas2001; Kochi Reference Kochi2017; Panarello et al. Reference Panarello, Zangrando, Tessone, Kozameh and Testa2006; Yesner et al. Reference Yesner, José Torres, Guichón and Borrero2003). Es así como, en este trabajo, se analizan valores δ13C y δ15N de 38 individuos que fueron recuperados en diferentes contextos arqueológicos a lo largo de todo el archipiélago (Reyes Reference Reyes2017; Reyes et al. Reference Reyes, Moraga, Méndez and Cherkinsky2015) con miras a los siguientes objetivos específicos: (1) evaluar diferencias en los valores isotópicos en función de las características contextuales de las prácticas mortuorias, sexo y edad de los individuos; (2) evaluar en la escala espacial diferencias en el consumo de recursos faunísticos en relación con la oferta diferencial de los mismos; y (3) evaluar diferencias alimenticias en la escala temporal. Los individuos discutidos presentan edades radiocarbónicas directas entre aproximadamente 2300 y 200 cal aP; la dispersión de la muestra permite determinar cuáles fueron las consecuencias en la dieta luego de los profundos cambios culturales ocurridos a partir del contacto europeo (Reyes et al. Reference Reyes, Román and Moraga2011, Reference Reyes, Moraga, Aspillaga, Zangrando, Barberena, Gil, Neme, Giardina, Luna, Otaola, Paulides, Salgán and Tívoli2013; Urbina Reference Urbina1988; Urbina Reference Urbina and Valenzuela2017). Por último, buscamos evaluar las trayectorias culturales comparando los valores isotópicos obtenidos con los registrados en otros grupos canoeros del área central y meridional del archipiélago patagónico (Alfonso et al. Reference Alfonso, Giles, Misarti, Román and Morello2015; Barberena Reference Barberena2002; Borrero et al. Reference Borrero, Guichón, Tykot, Kelly, Prieto and Cárdenas2001; Kochi Reference Kochi2017; Panarello et al. Reference Panarello, Zangrando, Tessone, Kozameh and Testa2006; Tafuri et al. Reference Tafuri, Zangrando, Tessone, Kochi, Cecchi, Di Vincenzo, Profico and Manzi2017; Tessone et al. Reference Tessone, Zangrando, Valencio and Panarello2003; Yesner et al. Reference Yesner, José Torres, Guichón and Borrero2003).
Área de Estudio: Clima y Ecología
La geomorfología de los canales occidentales de Patagonia presenta características propias de un complejo sistema geográfico en el que agentes morfogenéticos terrestres y climáticos conformaron una geografía desmembrada que rompe la continuidad de la costa de Chile (Glasser y Ghiglione Reference Glasser and Ghiglione2009; Heusser Reference Heusser2002). Este extenso archipiélago, con 1.600 km de longitud, abarca desde el seno de Reloncaví hasta el Cabo de Hornos (entre 41°30′ S y 55°60′ S). El archipiélago de los Chonos se ubica en la porción septentrional y está compuesto por más de 150 islas que forman una densa red de canales y fiordos de costas abruptas y estrechas. Se extiende entre el sur del archipiélago de Chiloé (43°50′ S) hasta la península de Taitao (46°50′ S), cubriendo un área de aproximadamente 54.000 km2 (Figura 1).
Diversos registros paleoambientales sugieren un inicio de la retirada de los hielos entre 18.000 y 16.300 años atrás entre el archipiélago de los Chonos y la península de Taitao (Haberle y Bennet Reference Haberle and Bennett2004; Siani et al. Reference Siani, Colin, Michel, Carel, Richter, Kissel and Dewilde2010). Desde esa fecha hasta aproximadamente 14.000–13.000 años atrás se desarrolló un bosque cerrado de Nothofagus-Pilgerodendron-Podocarpus en el archipiélago (Lumley y Switsur Reference Lumley and Switsur1993). El Holoceno temprano fue un periodo cálido y seco, como lo sugieren archivos ambientales terrestres y marinos donde ocurren reemplazos de polen con presencia de Tepualia, corroborados por archivos de quironómidas (Haberle y Bennet Reference Haberle and Bennett2004; Massaferro y Brooks Reference Massaferro and Brooks2002; Montande et al. Reference Montande, Nebout, Kissel, Haberle, Siani and Michel2013). Condiciones más húmedas y frías han sido interpretadas, desde distintos archivos ambientales, a partir de esa fecha en adelante (Massaferro y Brooks Reference Massaferro and Brooks2002; Montande et al. Reference Montande, Nebout, Kissel, Haberle, Siani and Michel2013).
El clima de la región es templado con tendencia oceánica. Está fuertemente dictado por las variaciones en posición y fuerza del “Cinturón de Vientos del Oeste”, que causa importantes regímenes de precipitación al oeste de los Andes. Éstas son mayores y más persistentes al sur de los 45° S, con cerca de 4.000 mm de agua caída al año. Las temperaturas medias anuales en el archipiélago son cercanas a los 10°C (Garreaud et al. Reference Garreaud, Vuille, Compagnucci and Marengo2009).
La vegetación actual, típica de regímenes fríos y lluviosos, está controlada latitudinal y altitudinalmente por fuertes gradientes de temperatura y precipitación. Las mayores formaciones vegetacionales presentes pueden clasificarse en bosque siempreverde laurifolio o valdiviano (entre 37°45′ S y 43°20′ S) y bosque siempreverde con coníferas o nordpatagónico (entre 43°20′ S y 47°30′ S), el cual se desarrolla desde la porción sur de Chiloé hasta el archipiélago de los Chonos (Luebert y Pliscoff Reference Luebert and Pliscoff2006).
La riqueza faunística presente en este archipiélago es contrastante si consideramos los recursos terrestres y marinos. El mar y el ambiente litoral cobijan una gran biodiversidad de mamíferos marinos, entre ellos 18 especies de cetáceos, tres especies de cachalotes y 10 especies de delfines, marsopas y zifios. Se registran además dos especies de pinnípedos (Otaria flavescens y Arctocephalus australis; Aguayo et al. Reference Aguayo, Acevedo and Vargas2006; Zamorano et al. Reference Zamorano, Gibbons and Capella2010).
La avifauna se encuentra extensamente representada, con alrededor de 46 especies de aves (Vuilleumier Reference Vuilleumier1985). El grupo de las anátidas es el mejor representado, con 24 especies distintas. También destacan diversas especies de la familia Procellariidae y Phalacrocoracidae. Entre los animales bentónicos de mayor interés económico se encuentran 48 especies de crustáceos, moluscos (entre poliplacóforos, gasterópodos, bivalvos y escafópodos), anélidos y equinodermos con una dispersión biogeográfica amplia y desarrollo en distintos ambientes como fondos marinos y sustratos rocosos y arenosos (Osorio y Reid Reference Osorio and Reid2004). Por último, cabe destacar, que se registran 29 especies de peces (Navarro y Pequeño Reference Navarro and Pequeño1979; Pequeño y Riedemann Reference Pequeño and Riedemann2002).
En contraste, los recursos terrestres, todos de hábitos acuáticos ribereños, son casi inexistentes en las islas; se registran roedores como el coipo (Myocastor coypus) y mustélidos como la nutria o huillín (Lontra provocax) y chungungo (Lontra felina; Aguayo et al. Reference Aguayo, Acevedo and Vargas2006; Iriarte Reference Iriarte2008). En el caso de la costa continental, se registran dos especies de ciervos de pequeño y mediano tamaño, respectivamente, el pudú (Pudu puda) y huemul (Hippocamelus bisulcus). También ocasionalmente se ha registrado la presencia de puma (Puma concolor; González et al. Reference González, Torres-Mura, Muñoz-Pedreros, Galaz, Muñoz-Pedreros and Yañez2009).
Contextos y Conjuntos Arqueológicos del Archipiélago de los Chonos
Para los sitios del Holoceno medio (6260–4240 cal aP) se desconocen conjuntos de fauna vertebrada y malacológica (Porter Reference Porter1993; Reyes Reference Reyes2017; Reyes et al. Reference Reyes, Román, Morello, Bjerck, Breivik, Fretheim, Piana, Skar, Tivoli and Zangrando2016). Los contextos de este momento se encuentran degradados de acuerdo con la presencia de un sustrato de podzol altamente ácido (pH medido entre 2,9 y 4,5) característico del archipiélago patagónico (Holdgate Reference Holdgate1961). Las matrices corresponden a lentes orgánicos ennegrecidos donde se recupera exclusivamente material lítico, cuyas superficies se observan afectadas químicamente. Actividades como la pesca, trabajo en madera y caza se infieren a partir del conjunto artefactual registrado (principalmente pesas de red, hachas líticas y cabezales líticos lanceolados de sección espesa). Los conchales donde se preservan conjuntos faunísticos de vertebrados y malacofauna (con pH medido entre 5 y 6,5) presentan secuencias cronológicas entre 3360 y 330 cal aP, periodo que enmarca la totalidad del registro bioantropológico recuperado (Reyes et al. Reference Reyes, Moraga, Méndez and Cherkinsky2015).
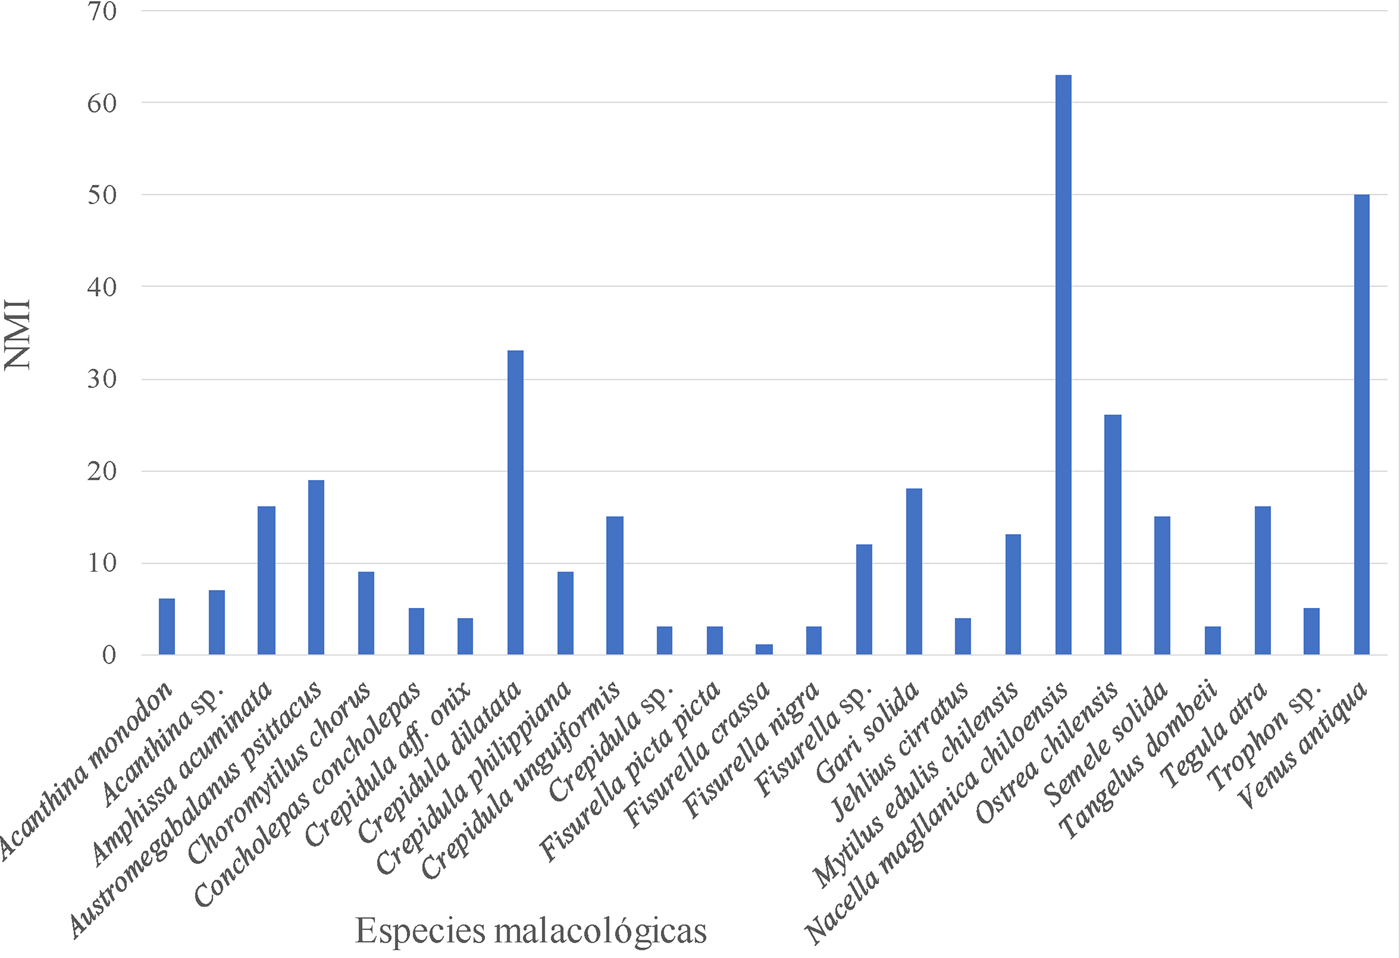
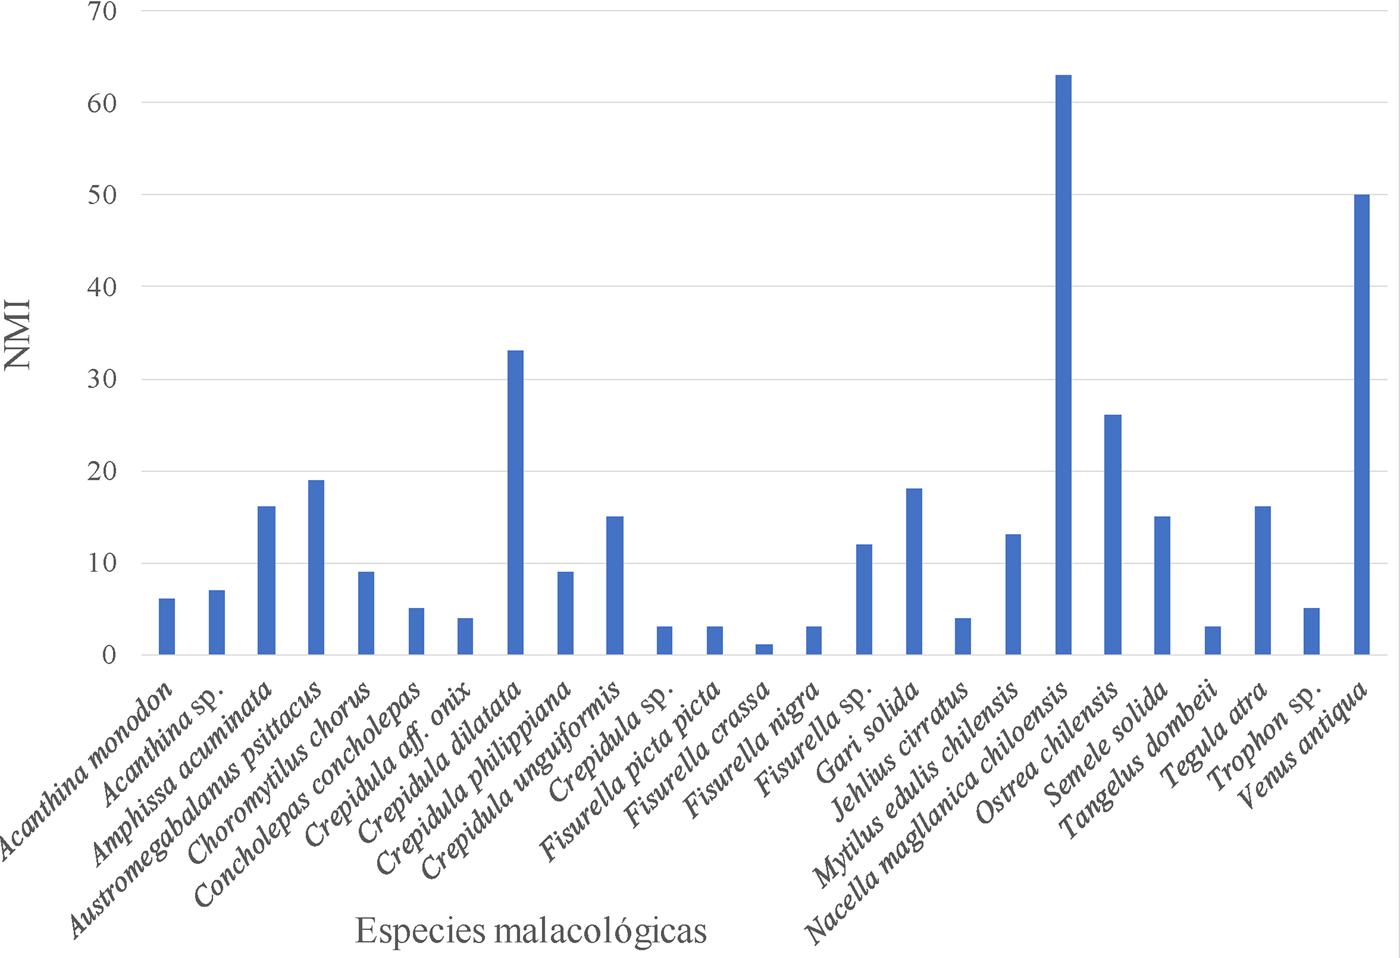
El conjunto arqueofaunístico analizado en este trabajo fue obtenido por medio de columnas de control de fauna en 10 conchales de carácter residencial distribuidos en el extremo norte del archipiélago: GUA-010 Conchal, Gran Guaiteca 2 Conchal, Alero Low e Isla Marta 1 en las islas Gran Guaiteca y Marta respectivamente Isla Benjamín 1, 2 y 4, ubicados en el área centro del archipiélago; Canal Vicuña 3 y Corrientes del Yates 6 en el área centro-sur; y Seno Gala 1, situado en el borde continental de éste (Figura 1). Los conjuntos faunísticos (Tabla Suplementaria 1; Figura 2) permiten caracterizar algunas de las estrategias de subsistencia desplegadas por las poblaciones de cazadores recolectores marinos del archipiélago durante el Holoceno tardío (Cárcamo y Reyes Reference Cárcamo and Reyes2017; Reyes Reference Reyes2017; Reyes et al. Reference Reyes, Méndez, Roman, Cardenas, Velásquez, Trejo, Morello and Stern2007; San Román et al. Reference San Román, Reyes, Méndez, Cárcamo and Torres2016). Primero, la diversidad de restos malacológicos evidencia que las estrategias de procuramiento fueron de carácter mixto, es decir, estuvieron orientados a la recolección del intermareal y submareal. Segundo, la explotación de mamíferos (24,6% de la muestra total) no indica un énfasis en un taxón particular. No obstante, la contribución de los pequeños mamíferos terrestres ribereños como el coipo y, en menor medida, nutria se observa como indicativo de un amplio espectro en la fauna explotada. Tercero, el recurso ictiológico tiende a ser preponderante, con un valor de 52,6% de la muestra de vertebrados recuperados. La variedad de especies de peces (N = 11) permite plantear diversas estrategias de obtención en relación con sus requisitos de hábitat, especialmente las neritopelágicas (más representadas). Por ejemplo, se interpreta la pesca costera para el caso del róbalo (Eleginops maclovinus) y jurel (Thrachurus murphyi) y el uso de canoas para la pesca de la sierra (Thyrsites atun). Cuarto, la explotación de las aves (22,8% de la muestra total) está concentrada mayoritariamente en taxones que anidan en colonias como cormoranes (Phalacrocorax sp.), fardelas (Procellaria sp.) y yuncos (Pelecanoides sp.). Quinto, al igual que en la representación de la fauna malacológica, la variación en la riqueza taxonómica de cada sitio arqueológico analizado se entiende como un reflejo de las riquezas taxonómicas disponibles en el intermareal inmediato. Por último, el registro de mamíferos terrestres en los sitios es mínimo. La presencia de cánido en la isla Gran Guaiteca (GUA-010 Conchal y Alero Low), de pudú en Isla Marta 1 y de huemul en isla Benjamín 1 sólo se explica por el transporte de presas, o parte de ellas, en el marco de la movilidad habitual o intercambio con el borde continental. Estos desplazamientos se ven refrendados por los rangos amplios de circulación de la obsidiana de la fuente del volcán Chaitén (Méndez et al. Reference Méndez, Stern, Nuevo-Delaunay, Reyes, Gutiérrez and Mena2018; Reyes et al. Reference Reyes, Moraga, Méndez and Cherkinsky2015). En suma, el conjunto de información tecnológica y arqueofaunística recuperada en los sitios señala una especialización exclusiva en la obtención de recursos del medio litoral y marino (Reyes Reference Reyes2017; Reyes et al. Reference Reyes, Méndez, Roman, Cardenas, Velásquez, Trejo, Morello and Stern2007, Reference Reyes, Moraga, Méndez and Cherkinsky2015; San Román et al. Reference San Román, Reyes, Méndez, Cárcamo and Torres2016).
Número mínimo de individuos (NMI) de la fauna malacológica de columnas de muestreo del sitio GUA-010 Conchal.
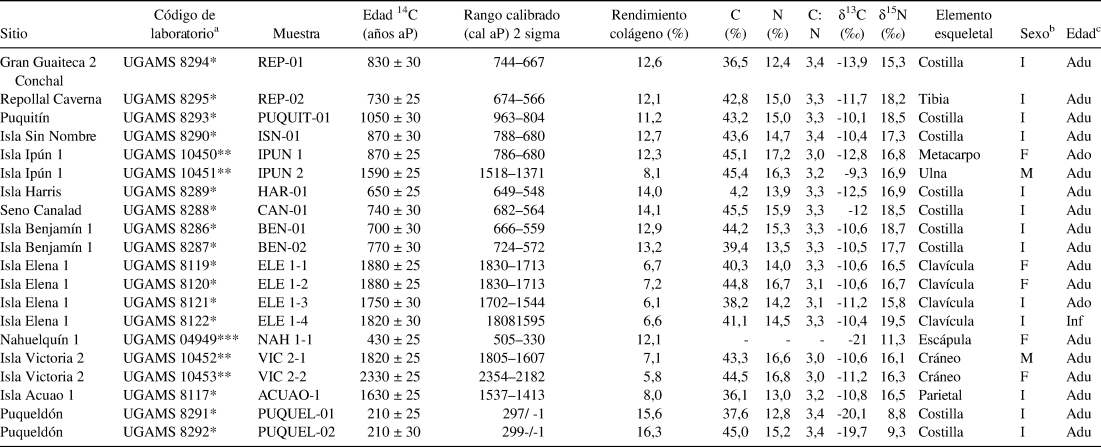
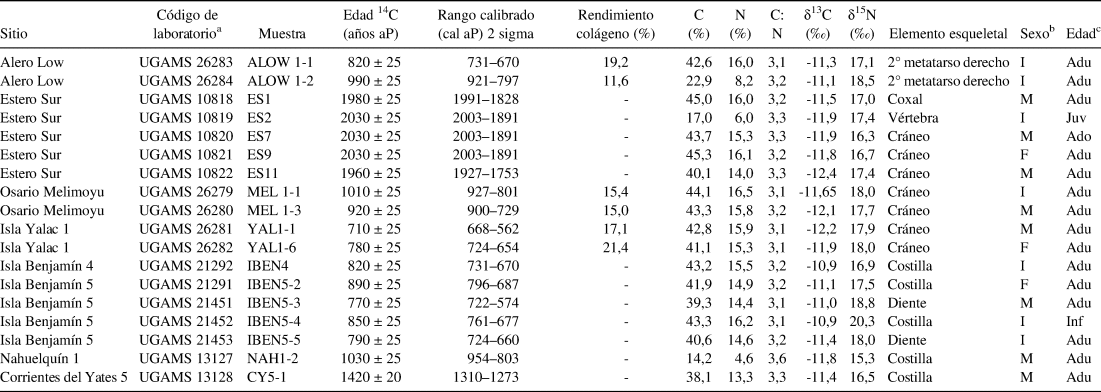
El material bioantropológico, por su parte, proviene de contextos arqueológicos estratigráficos y de superficie como conchales a cielo abierto, cuevas y reparos rocosos, todos adyacentes a la costa, entre 0 y 50 m de la línea actual de alta marea (Reyes Reference Reyes2017). Las cuevas y aleros contienen restos humanos en superficie o bajo ésta y se presentan desde unos pocos hasta más de 20 individuos, conformando osarios donde los restos se encuentran dispersos y sin posición anatómica. La mayoría de los restos presentan disturbación antrópica histórica/subactual (Simpson Reference Simpson1875). Esta situación, sumada a la ausencia de materiales asociados, hace imposible establecer patrones mortuorios (e.g., ajuar, ofrendas, disposición de cuerpos). La cronología directa obtenida muestra que la depositación de cuerpos en reparos rocosos se extiende entre aproximadamente 2300 y 600 cal aP. Algunos sitios revelan que todos los individuos fueron depositados contemporáneamente o en un corto lapso, mientras que en otros hubo reutilización de estos lugares con fines fúnebres con siglos de distancia, donde depositaciones individuales generaron conjuntos colectivos diacrónicos (Tablas 1 y 2; Reyes et al. Reference Reyes, Moraga, Aspillaga, Zangrando, Barberena, Gil, Neme, Giardina, Luna, Otaola, Paulides, Salgán and Tívoli2013, Reference Reyes, Moraga, Méndez and Cherkinsky2015). Respecto a los entierros en depósitos conchales, estos se registran entre aproximadamente 1600 y 210 cal aP y son de tipo múltiple o individual. Los individuos precontacto se registran sin ajuar ni ofrendas, depositados en la matriz conchal en posición de decúbito lateral flectado. Muchos de los restos recuperados fueron obtenidos desde el intermareal o de perfiles degradados por acción de las mareas (Reyes et al. Reference Reyes, Moraga, Méndez and Cherkinsky2015).
Valores de Isótopos Estables, Fechados 14C e Información Asociada a las Muestras de Restos Humanos Publicadas Anteriormente.

aUGAMS = Center for Applied Isotope Studies, University of Georgia; *Reyes et al. Reference Reyes, Moraga, Aspillaga, Zangrando, Barberena, Gil, Neme, Giardina, Luna, Otaola, Paulides, Salgán and Tívoli2013; **Reyes et al. Reference Reyes, Moraga, Méndez and Cherkinsky2015; ***Reyes et al. Reference Reyes, Román and Moraga2011. bI = indeterminado; F = femenino; M = masculino;
cAdu = adulto (> 20 años); Ado = adolescente (< 20 y ≥ 13 años); Inf = infante (< 3 años).
Valores de Isótopos Estables, Fechados 14C e Información Asociada a las Muestras de Restos Humanos Inéditas.

aUGAMS: Center for Applied Isotope Studies, University of Georgia.
bI = indeterminado; F = femenino; M = masculino.
cAdu = adulto (> 20 años); Ado = adolescente (< 20 y ≥ 13 años); Juv: juvenil (< 13 y ≥ 7 años); Inf = infante (< 3 años).
Material
Se realizó el análisis de δ13C y δ15N a 38 individuos de diferente sexo y edad, obtenidos de contextos arqueológicos distribuidos en todo el archipiélago: islas hacia el Pacífico, borde continental, área norte, centro y centro-sur (Tablas 1 y 2; Reyes et al. Reference Reyes, Moraga, Aspillaga, Zangrando, Barberena, Gil, Neme, Giardina, Luna, Otaola, Paulides, Salgán and Tívoli2013, Reference Reyes, Moraga, Méndez and Cherkinsky2015). El análisis de restos bioantropológicos buscó la segregación de individuos. Se realizó un inventario óseo, determinación de sexo (índice de robustez, diferencias morfológicas en cintura pélvica, cráneo y mandíbula), edad (grados de fusión de suturas craneales y epífisis, erupción y desgaste dental y cambios morfológicos en huesos diagnósticos), estatura y descripción paleopatológica (e.g., Buikstra y Ubelaker Reference Buikstra and Ubelaker1994; Trotter y Gleser Reference Trotter and Gleser1958). En subadultos el rango etario se fundamentó en el desarrollo dental, la fusión de epífisis y las dimensiones máximas óseas (Schaefer et al. Reference Schaefer, Black and Scheuer2009). Los restos óseos no asignables a un individuo fueron analizados separando por categoría de hueso representada. Para la cuantificación del número mínimo de individuos (NMI) se consideró el hueso más frecuentemente repetido, la lateralidad y sus tamaños. La selección de muestras para fechado priorizó la representación de individuos con la mayor cantidad de información, al mismo tiempo eliminando la posibilidad de replicación. En restos óseos asignables a un individuo (inhumaciones en conchal o depósitos en osarios con pocos individuos bien discernibles) se utilizaron fragmentos óseos menos diagnósticos (fragmentos de costillas, vértebras, falanges). Todos los individuos fueron fechados directamente.
La muestra se divide en un grupo precontacto europeo con edades entre aproximadamente 2300 y 600 cal aP (N = 35) y tres individuos con cronología poscontacto, entre aproximadamente 300 y 200 cal aP. De este último grupo, la información de ADN mitocondrial indica que el individuo de isla Traiguén (NAH1-1), en el archipiélago de los Chonos, pertenece a población indígena (Reyes et al. Reference Reyes, Román and Moraga2011), mientras que los otros dos individuos provenientes de isla Lemuy (PUQUEL-01 y 02), en el archipiélago de Chiloé, fueron recuperados de un contexto formado por una población indígena poshispánica (Sáez Reference Sáez2008), lo que permite descartar que se tratara de individuos europeos que pudiesen distorsionar una interpretación paleodietaria.
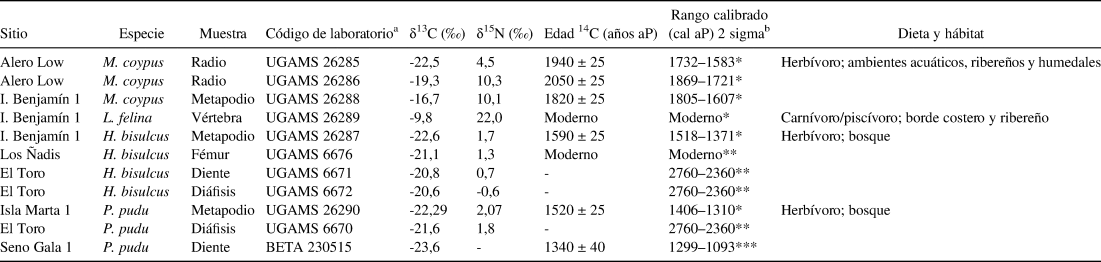
Para la construcción de la ecología isotópica se incluyeron valores de isótopos estables de diversas especies a partir de muestras de arqueofaunas (N = 11), cinco previamente publicadas (Barberena et al. Reference Barberena, Méndez, Mena and Reyes2011; Reyes et al. Reference Reyes, Méndez, Roman, Cardenas, Velásquez, Trejo, Morello and Stern2007). Seis nuevas muestras corresponden a cuatro taxones diferentes de mamíferos: herbívoros terrestres (pudú, huemul), herbívoros de ambiente ribereño (coipo) y carnívoros de ambiente ribereño (nutria). Todas cuentan con edades radiocarbónicas directas asignables al Holoceno tardío (Tabla 3).
Isótopos Estables en Muestras de Fauna, Archipiélago de los Chonos y Borde Continental Adyacente.

aUGAMS = Center for Applied Isotope Studies, University of Georgia; BETA = Beta Analytic, Inc., DirectAMS Lab.
bFuente: *este estudio; **Barberena et al. Reference Barberena, Méndez, Mena and Reyes2011 (rango cronológico de la unidad estratigráfica); ***Reyes et al. Reference Reyes, Méndez, Roman, Cardenas, Velásquez, Trejo, Morello and Stern2007.
Para completar el panorama isotópico, se realizó una recopilación bibliográfica para especies sobre las cuales no se contaba con análisis de este tipo. Se priorizó la cercanía espacial de las muestras (Mayr et al. Reference Mayrs, Försterra, Häussermann, Wunderlich, Grau, Zieringer and Altenbach2011; Muñoz et al. Reference Muñoz, Pavez, Quiñones, Oliva, Santos and Sepúlveda2013; Sepúlveda et al. Reference Sepúlveda, Newsome, Pavez, Oliva, Costa and Hückstädt2015). De esta forma se conformó una ecología isotópica compuesta en el ambiente marino por mamíferos marinos (Sepúlveda et al. Reference Sepúlveda, Newsome, Pavez, Oliva, Costa and Hückstädt2015), crustáceos (Muñoz et al. Reference Muñoz, Pavez, Quiñones, Oliva, Santos and Sepúlveda2013), moluscos (Mayr et al. Reference Mayrs, Försterra, Häussermann, Wunderlich, Grau, Zieringer and Altenbach2011) y peces (Mayr et al. Reference Mayrs, Försterra, Häussermann, Wunderlich, Grau, Zieringer and Altenbach2011; Muñoz et al. Reference Muñoz, Pavez, Quiñones, Oliva, Santos and Sepúlveda2013). Por último, para la representación de las aves marinas se consideraron los valores disponibles para la región del canal Beagle (Kochi et al. Reference Kochi, Pérez, Tessone, Ugan, Tafuri, Nye, Tivoli and Francisco Zangrando2018).
La discusión de los resultados se estructuró en dos escalas espaciales: la escala regional del archipiélago de los Chonos y la escala suprarregional, incluyendo poblaciones de cazadores recolectores pescadores marinos más meridionales. Para ello se utilizó información publicada de diferentes muestras arqueológicas de los periodos pre y poscontacto recuperadas del archipiélago patagónico en el área centro-meridional (47°−52° S), desde la península de Taitao al Estrecho de Magallanes y meridional (52°−56° S), desde la costa sur del Estrecho hasta Cabo de Hornos, coincidiendo con la distribución etnográfica definida para los grupos canoeros (i.e., Chonos, Kawésqar y Yámana; Emperaire Reference Emperaire1963; Orquera y Piana Reference Orquera and Piana1999).
Métodos
Las edades de radiocarbono se calibraron con un rango de 2σ en años antes del presente (cal aP) con el programa Calib 7.0.2 (Stuiver et al. Reference Stuiver, Reimer and Reimer2013). Para las muestras de fauna terrestre y las de humanos se aplicó la curva ShCal13 (Hogg et al. Reference Hogg, Hua, Blackwell, Niu, Buck, Guilderson, Heaton, Palmer, Reimer, Reimer, Turney and Zimmerman2013); en conchas y fauna marina se utilizó la curva Mixed Marine SoHem (Reimer et al. Reference Reimer, Bard, Bayliss, Beck, Blackwell, Ramsey, Buck, Cheng, Edwards, Friedrich, Grootes, Guilderson, Haflidason, Hajdas, Hatté, Heaton, Hoffmann, Hogg, Hughen, Kaiser, Kromer, Manning, Niu, Reimer, Richards, Scott, Southon, Staff, Turney and van der Plicht2013). Los análisis fueron realizados en Beta Analytic, Inc., DirectAMS Lab y en el Center for Applied Isotope Studies (CAIS), University of Georgia. Al no existir valores de efecto reservorio local las edades no fueron corregidas, por lo que se espera que las muestras humanas con consumo elevado de recursos marinos sean un poco más recientes.
Los análisis de isótopos estables se realizaron en el CAIS. La metodología de extracción de colágeno consistió en limpiar el hueso mecánicamente con cepillo y lavarlo en un baño de ultrasonido. Se secó en estufa y se molió en pequeños fragmentos. El material óseo se hizo reaccionar al vacío con HCl 1N para disolver la fracción mineral ósea. El residuo se filtró, se enjuagó con agua desionizada y en condiciones ligeramente ácidas (pH = 3) se calentó a 80 °C durante 6 horas para disolver el colágeno y dejar las sustancias húmicas en el precipitado. La solución de colágeno se filtró para aislar el colágeno puro y se secó. Las relaciones 13C/12C y 15N/14N de las muestras se midieron por separado usando un espectrómetro de masas de relación isotópica y se expresaron como δ13C y δ15N con respecto al patrón internacional VPDB y AIR, respectivamente, en ambos casos con un error de menos de 0,1‰.
Para hacer comparables las distintas muestras se utilizaron diversos factores de corrección. Primero, se consideró 2‰ para corregir el Efecto Suess, lo cual permite comparar muestras previas y posteriores a la revolución industrial (Coltrain et al. Reference Coltrain, Tackney and O'Rourke2016). Segundo, los valores de colágeno y pelo se transformaron a músculo a partir de los factores brindados por Fernandes (Reference Fernandes2015) y Hobson y colaboradores (Reference Hobson, Schell, Renouf and Noseworthy1996), respectivamente. Tercero, para la interpretación de los recursos consumidos se estimaron paleodietas de los restos humanos a partir de considerar 5‰ y 4‰ como valor medio de la discriminación isotópica del δ13C y δ15N, respectivamente (Newsome et al. Reference Newsome, Phillips, Culleton, Guilderson and Koch2004). Utilizamos el test Mann-Whitney para evaluar las diferencias estadísticamente significativas entre conjuntos (p ≤ 0,05).
Resultados
El valor medio de rendimiento de colágeno óseo humano (N = 26) es de 12%±4%, con un rango entre 6% y 21%. Todas las muestras registran relaciones C/N entre 2,9 y 3,6 (De Niro Reference De Niro1985), con una media (N = 38) de 3,3 ± 0,2. Por su parte, las muestras de fauna registran una relación C/N con una media (N = 5) de 3,1 ± 0,08. Ambos parámetros permiten sostener que los valores isotópicos obtenidos en restos humanos y fauna son primarios.
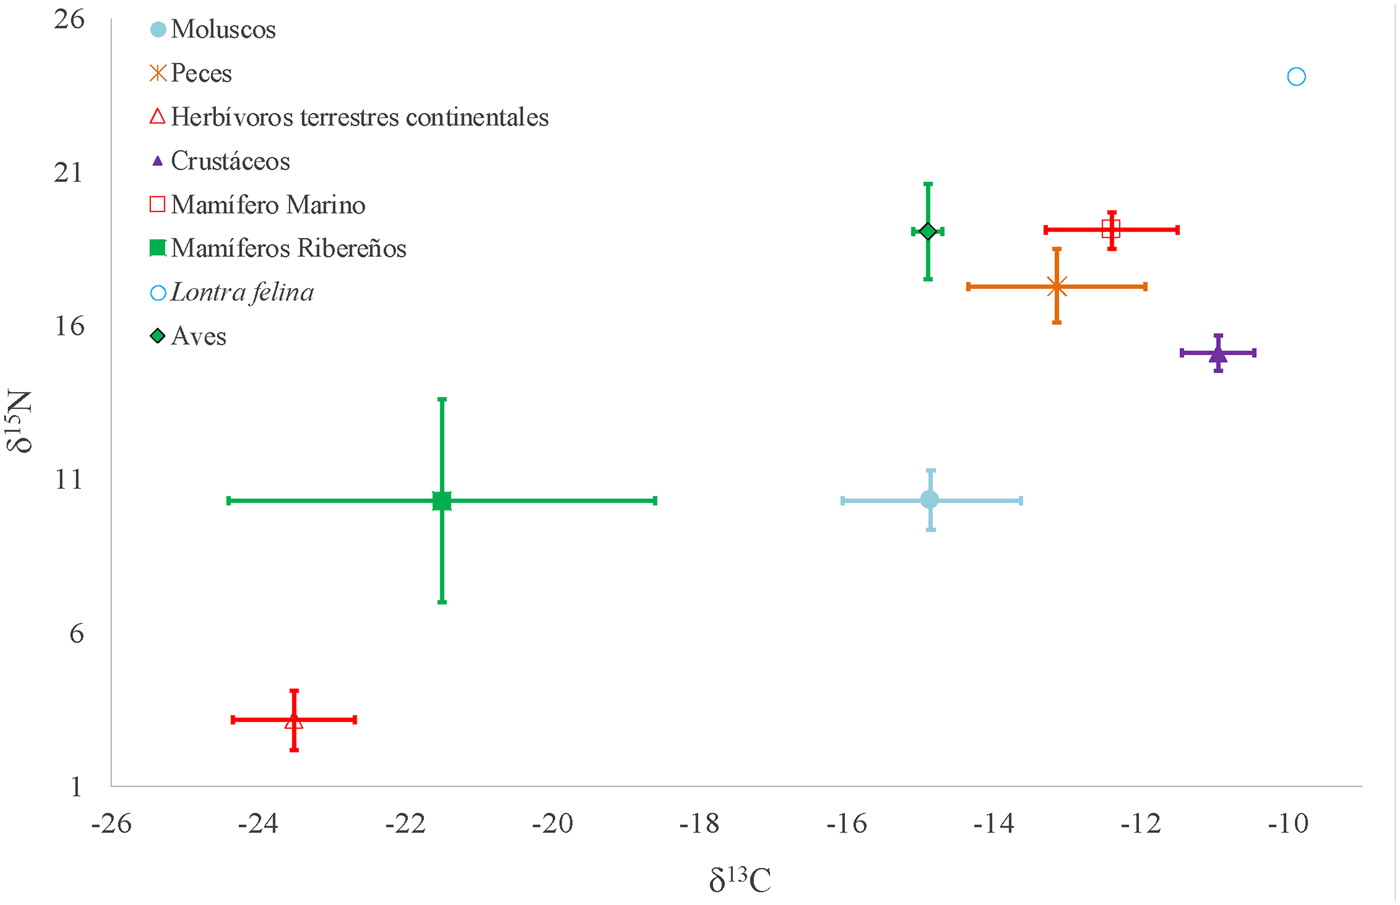
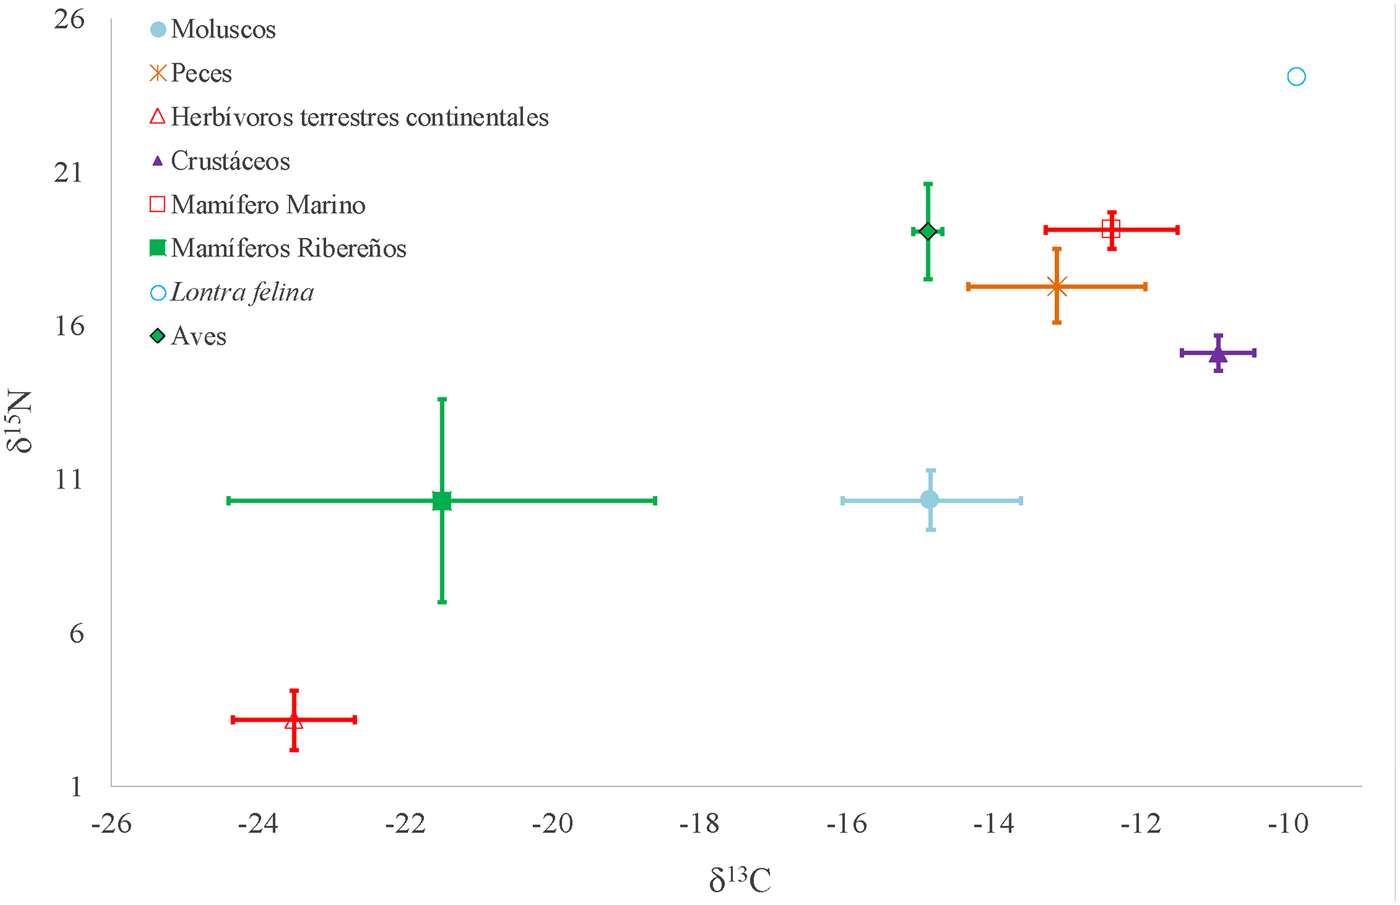
Si bien la ecología isotópica está construida con muestras arqueológicas y modernas, ésta permite una visualización de la distribución natural del δ13C y δ15N en el ambiente. La ecología isotópica del área señala mucha variación, tanto en el ambiente marino como en su comparación con los recursos terrestres (Figura 3). En cuanto a estos últimos, huemules y pudú presentan valores medios bajos en ambos isótopos. Los mismos registran una diferencia de 7‰ en el δ15N respecto a los moluscos, los valores más bajos del ambiente marino. A su vez, Lontra felina presenta valores extremos del ambiente marino, con -9,9‰ y 24,1‰ para el δ13C y δ15N, respectivamente. Esto genera una dispersión de 14‰ en el δ15N para el ambiente marino. Finalmente, los mamíferos ribereños presentan valores similares en el δ15N a los moluscos, pero con valores δ13C más negativos (Figura 3).
Reconstrucción de la ecología isotópica en los canales occidentales septentrionales. Peces: Eleginops maclovinus, Pinguipes chilensis, Eleginops maclovinus, Paralabrax humeralis, Mugiloides chilensis, Sebastes capensis, Helicolenus lengerichi, Trachurus murphyi, Genypterus sp., Merluccius australis, Thyrsites atun, Callorhinchus callorhynchus, Seriolella caerulea y Merluccius gayi (Mayr et al. Reference Mayrs, Försterra, Häussermann, Wunderlich, Grau, Zieringer and Altenbach2011; Muñoz et al. Reference Muñoz, Pavez, Quiñones, Oliva, Santos and Sepúlveda2013); Aves: Thalassarche sp., Spheniscus magellanicus y Phalacrocorax sp. (Kochi et al. Reference Kochi, Pérez, Tessone, Ugan, Tafuri, Nye, Tivoli and Francisco Zangrando2018); Crustáceos: Homalaspis plana y Cancer setosus (Muñoz et al. Reference Muñoz, Pavez, Quiñones, Oliva, Santos and Sepúlveda2013); Moluscos: Aulacomya ater, Crepidula sp., Mytilus chilensis y Tegula sp. (Mayr et al. Reference Mayrs, Försterra, Häussermann, Wunderlich, Grau, Zieringer and Altenbach2011); Mamíferos marinos: Otaria byronia (Sepúlveda et al. Reference Sepúlveda, Newsome, Pavez, Oliva, Costa and Hückstädt2015); Mamíferos terrestres: Hippocamelus bisulcus y Pudu pudu (Barberena et al. Reference Barberena, Méndez, Mena and Reyes2011); Mamíferos ribereños: Myocastor coypus y Lontra felina (este trabajo).
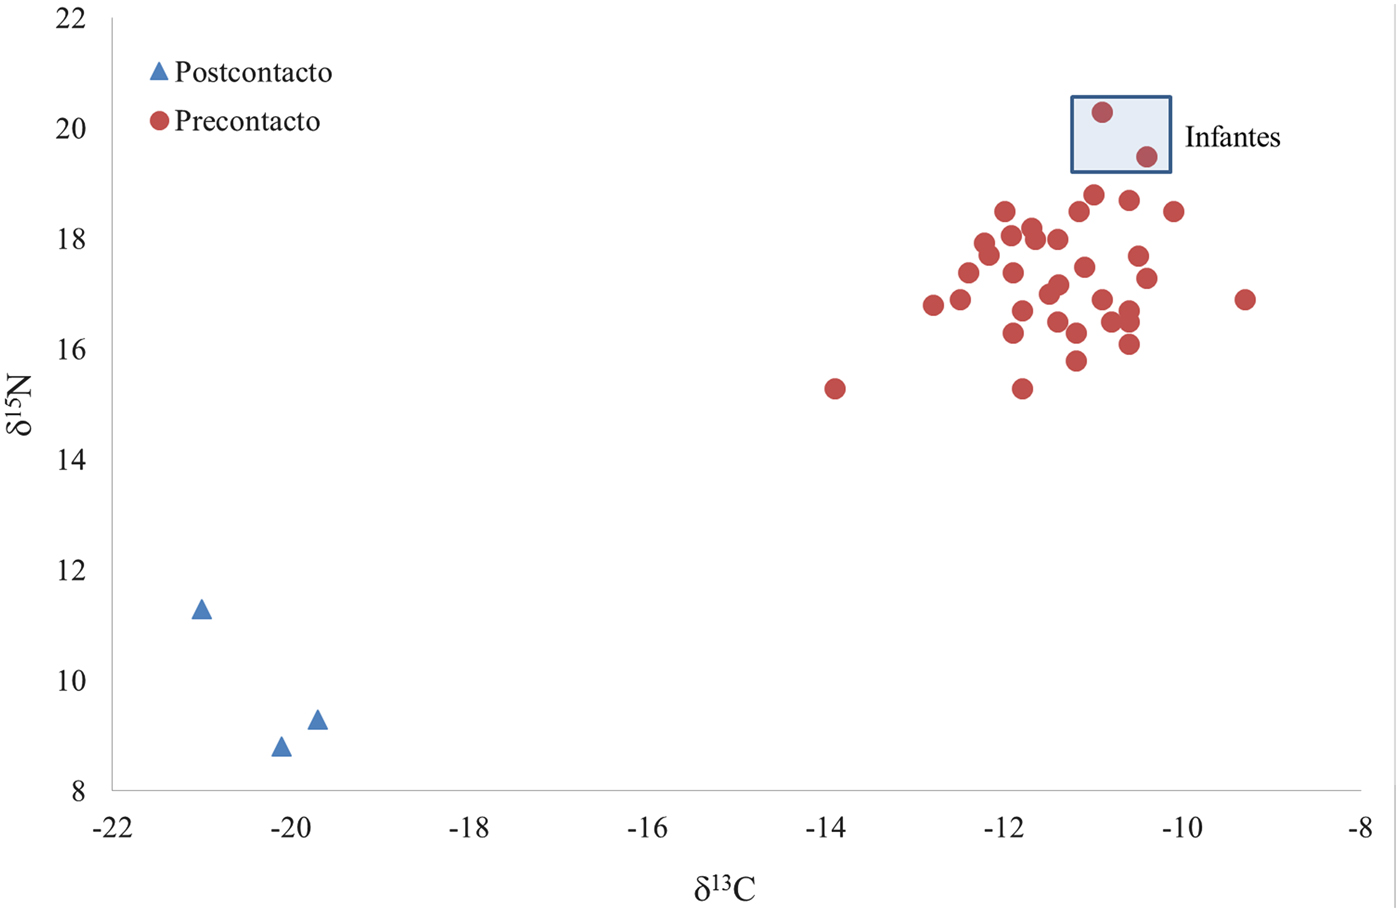
Respecto a las muestras humanas se observa que los 35 individuos de momentos precontacto presentan valores elevados de δ15N entre 15,3‰ y 20,3‰, con una media de 17,3‰ ± 1,1‰, mientras que los valores de δ13C registran una media de -11,3‰ ± 0,8‰ en un rango entre -9,3‰ y -13,9‰. Los únicos dos infantes de la muestra presentan los valores δ15N más altos del conjunto (Figura 4), probablemente debido al efecto de la lactancia (Fogel et al. Reference Fogel, Tuross and Owsley1989). Estos fueron eliminados del análisis paleodietario posterior.
Valores de δ13C y δ15N en restos humanos del archipiélago de los Chonos.
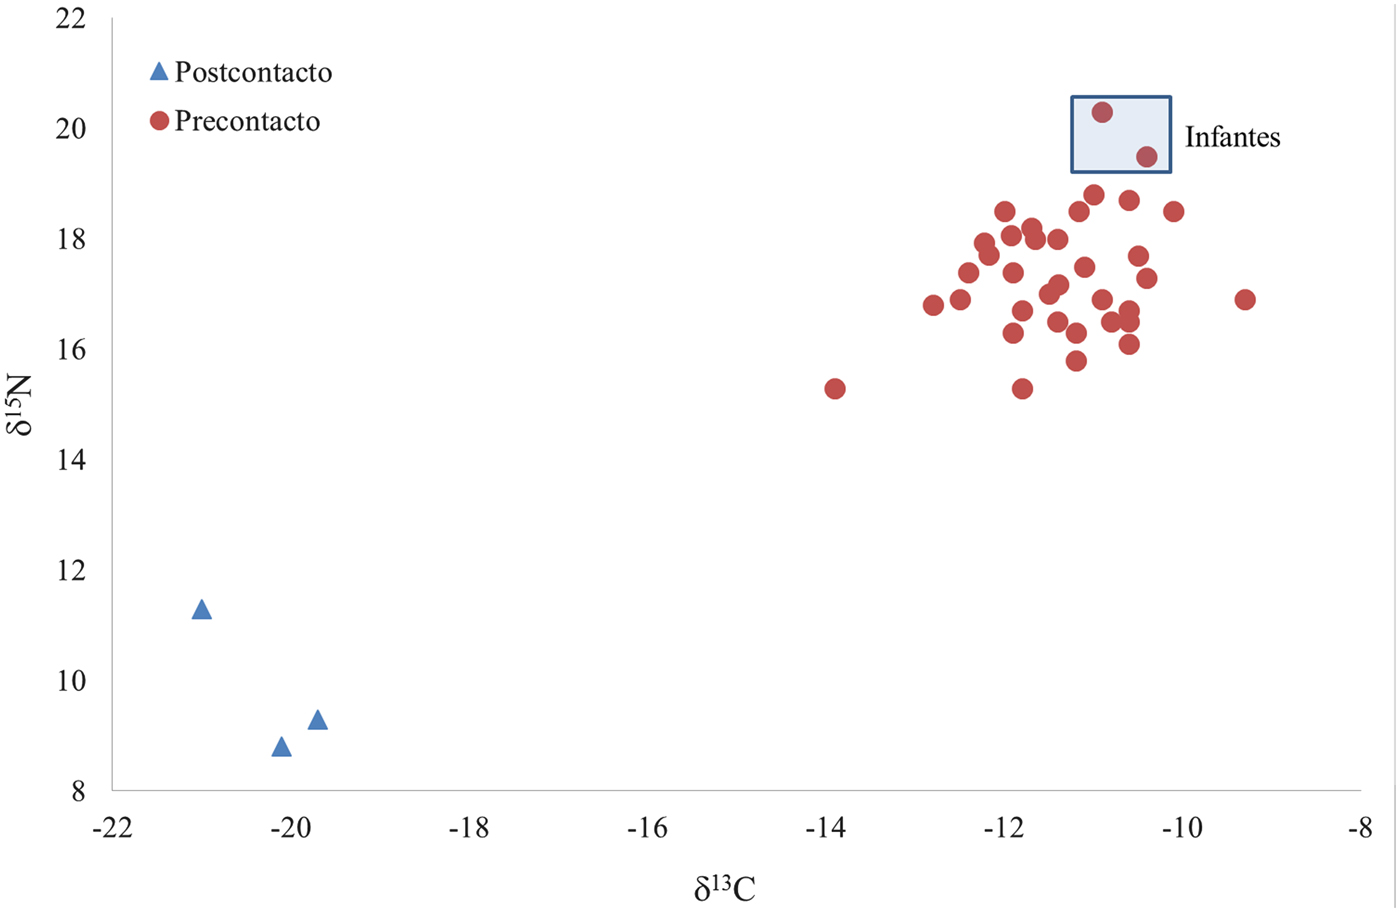
La correlación entre el δ13C y δ15N de los restantes valores del grupo precontacto es baja (r = 0,1886; p = 0,2931). En este conjunto precontacto, no se observan diferencias si consideramos la determinación sexual de los individuos (Mann-Whitney p > 0,05), las restantes categorías de edad (Mann-Whitney p > 0,05), o las prácticas funerarias de disposición de los cuerpos (i.e., tipo de sitio; Mann-Whitney p > 0,05). Finalmente, las tres muestras con fechas poscontacto presentan valores muy distintos de δ13C (entre -21‰ y -19,7‰) y δ15N (entre 11,3‰ y 8,8‰; Figura 4), lo que justifica tratarlas como un conjunto aparte.
Discusión
Paleodietas y Cronología en el Archipiélago de los Chonos: La Escala Regional
A partir de estos resultados se puede afirmar que el conjunto precontacto constituye un grupo bastante homogéneo, con valores esperables para poblaciones de cazadores recolectores pescadores con una fuerte dependencia de recursos litorales y marinos, incluyendo entre estos los mamíferos ribereños. Esto concuerda con lo observado en otras líneas de evidencia como la arqueofauna y la tecnología que no muestran mayor variabilidad a lo largo de la secuencia de ocupación (Reyes et al. Reference Reyes, Moraga, Méndez and Cherkinsky2015).
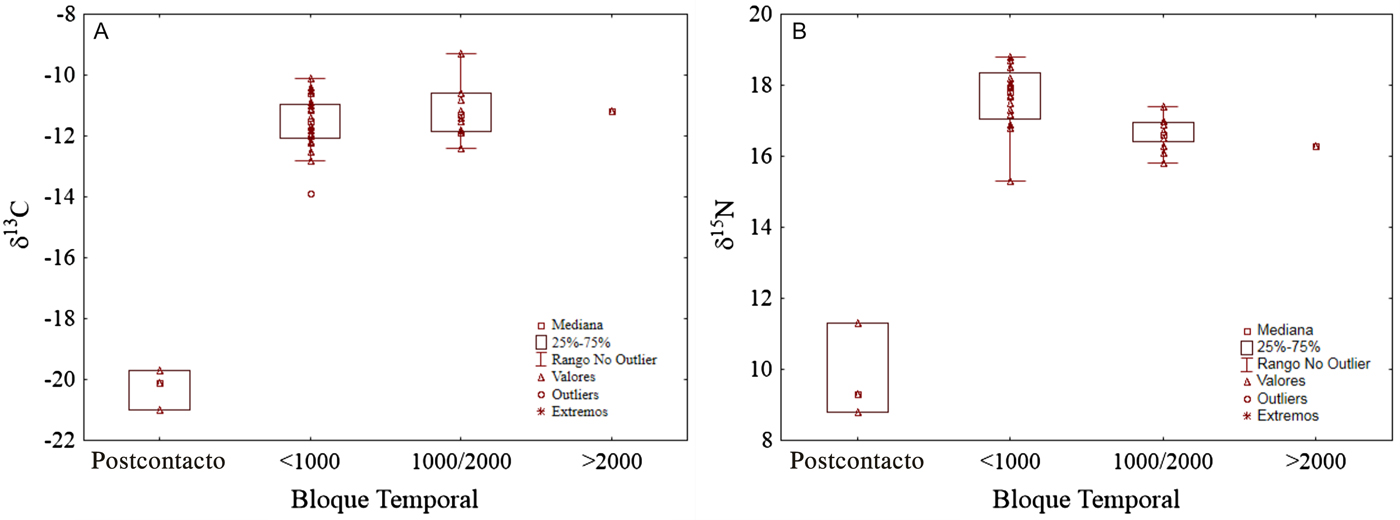
No obstante, si dividimos este conjunto por intervalos de milenios se observa una variación en el δ15N, no así en el δ13C. El subconjunto de individuos precontacto de los últimos 1.000 años cal aP registra valores más altos de nitrógeno, 1‰ en relación con el bloque temporal precedente, diferencia que es estadísticamente significativa (Mann-Whitney p < 0,05). A su vez, estos dos bloques se separan de manera significativa del grupo poscontacto en los dos marcadores isotópicos (Figura 5).
Valores de δ13C (a) y δ15N (b) de la muestra de restos humanos por bloques temporales.
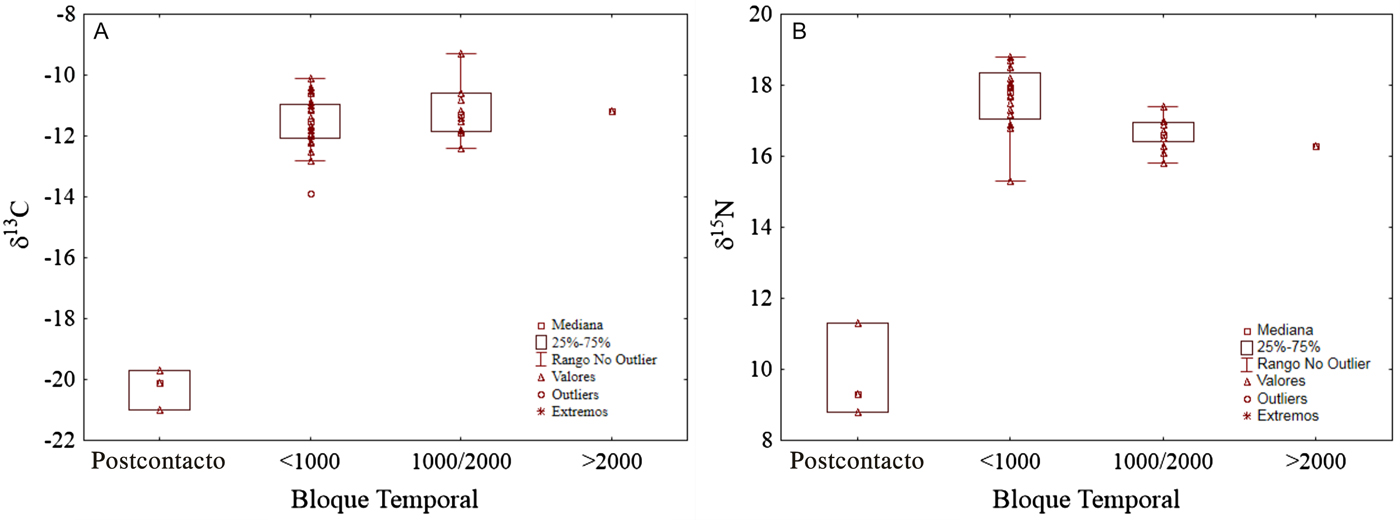
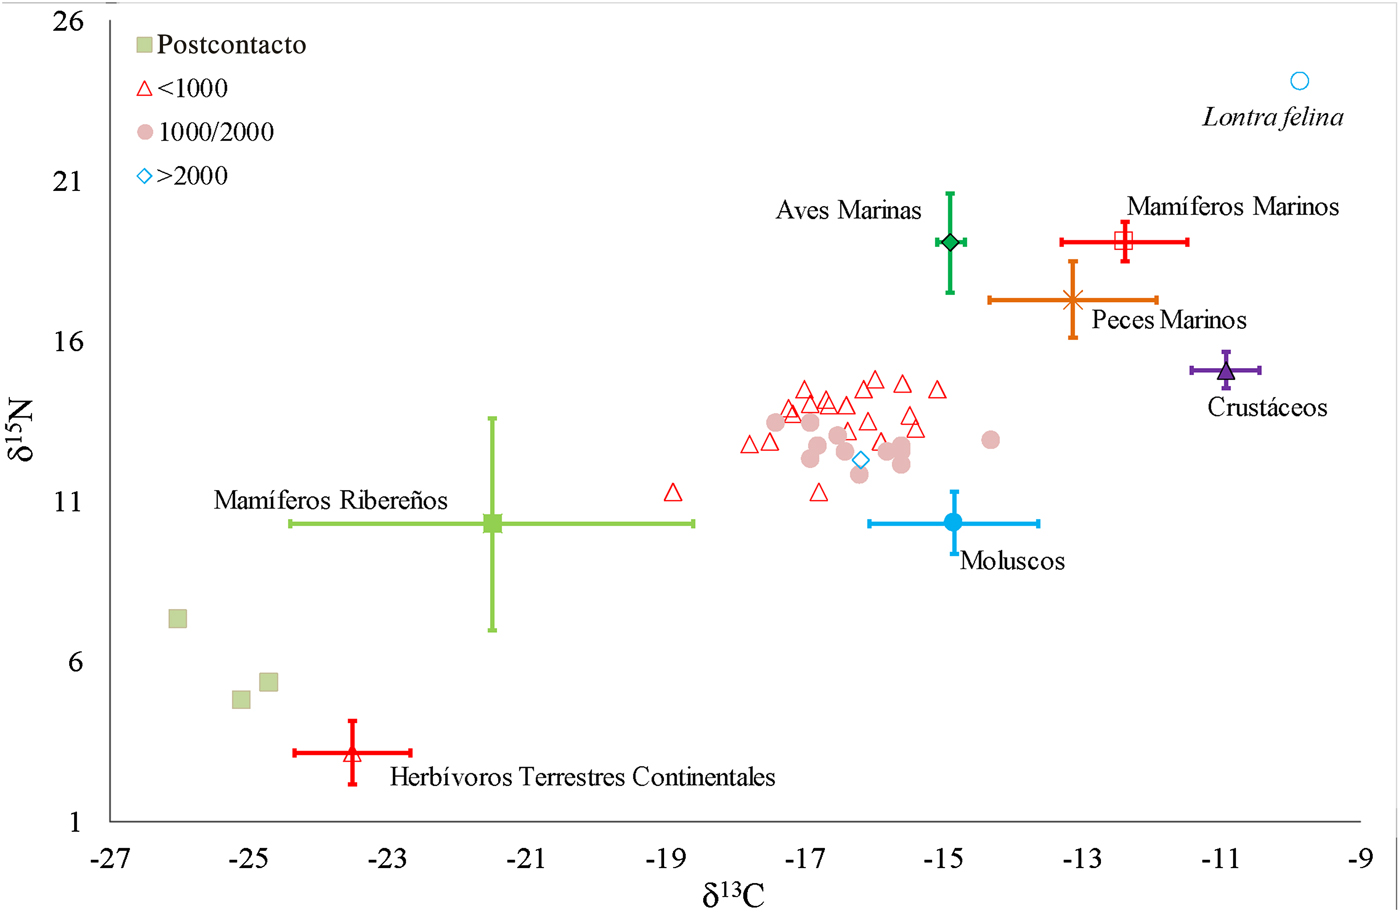
Las diferencias observadas dentro del conjunto precontacto se interpretan en relación con un mayor énfasis en la obtención de algunos recursos con valores δ15N más altos como peces, aves marinas, pequeños mamíferos omnívoros como la nutria o mamíferos marinos (Figura 6). No obstante, la frecuencia de estos últimos en el registro zooarqueológico del archipiélago es menor respecto a la frecuencia de peces que domina los conjuntos (Reyes et al. Reference Reyes, Méndez, Roman, Cardenas, Velásquez, Trejo, Morello and Stern2007). Si bien las diferencias registradas descritas son menores, éstas indican variaciones significativas tendientes al enriquecimiento del nitrógeno. No obstante, otra posibilidad que explica esta tendencia serían cambios en el ciclo del N del ambiente marino a través del tiempo (Saporiti et al. Reference Saporiti, Bala, Gómez-Otero, Crespo, Piana, Aguilar and Cardona2014). Por tal razón, esta situación debe considerarse como preliminar mientras no sea complementada con una mayor cobertura de excavaciones arqueológicas, control cronológico de las muestras de fauna y nuevos valores en humanos con una mayor distribución en el archipiélago. En este sentido, comparando los valores δ13C de los conjuntos precontacto procedentes de las diversas áreas registradas del archipiélago con los obtenidos del borde continental, la diferencia de las medias es de 0,7‰ (11,2 ‰ y 11,9 ‰, respectivamente). Estas diferencias son significativas (Mann-Whitney p < 0,05). Por el contrario, no hay diferencias entre estas áreas en el caso de los valores δ15N (diferencias entre las medias de 0,2‰), por lo que se puede descartar que la misma se deba al consumo de herbívoros terrestres en el borde continental. Los futuros muestreos y análisis de este proyecto permitirán evaluar estas tendencias espacio-temporales resaltadas.
Representación de dietas estimadas de los individuos precontacto y postcontacto del archipiélago de los Chonos en relación con los valores de fauna marina y terrestre nativa. Las muestras humanas se consignan de acuerdo a la cronología.
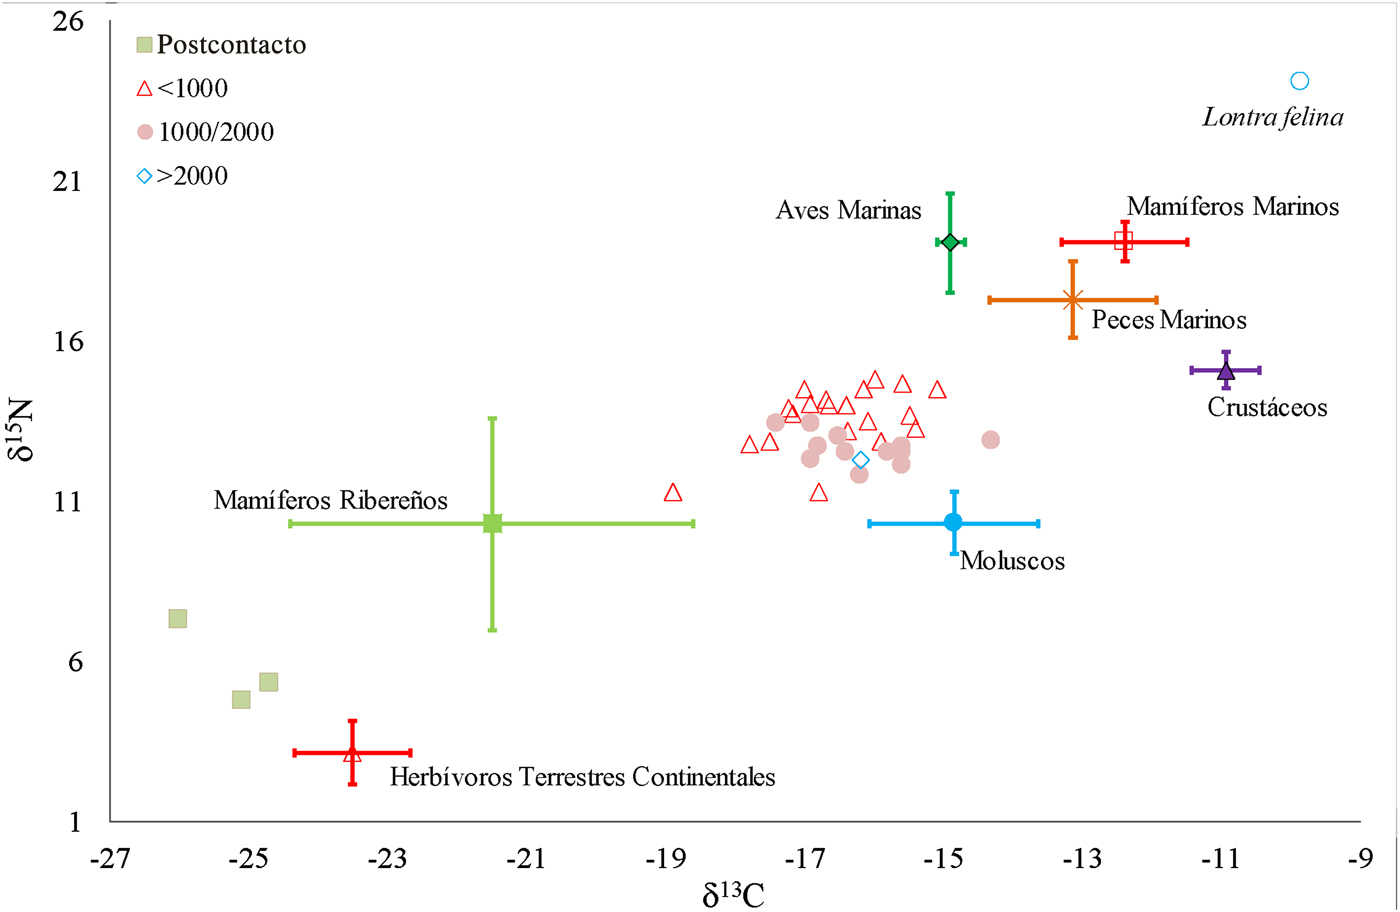
La comparación entre los conjuntos precontacto y poscontacto señala diferencias notoriamente más marcadas. En términos paleodietarios, los individuos poscontacto registran una disminución significativa en el consumo de recursos marinos, los que ya no son fuente alimentaria dominante. La incorporación de recursos terrestres en la dieta —por ejemplo, animales domésticos o vegetales como la papa de vía fotosintética C3 reconocidos para poblaciones históricas— podría haber contribuido de forma más sustantiva. Estos cambios pueden ser explicados en el marco de las profundas alteraciones culturales sufridas luego del contacto occidental en los archipiélagos septentrionales, especialmente a partir del siglo dieciséis (García Reference García1889[1766]; Torrejón et al. Reference Torrejón, Bizama, Araneda, Aguayo, Bertrand and Urrutia2013; Urbina Reference Urbina1988; Urbina Reference Urbina and Valenzuela2017).
En suma, el análisis de los valores isotópicos de humanos del archipiélago de los Chonos y Chiloé, en el marco de una ecología isotópica regional, respalda las interpretaciones previas sugeridas a partir de un conjunto menor de datos (Reyes et al. Reference Reyes, Moraga, Aspillaga, Zangrando, Barberena, Gil, Neme, Giardina, Luna, Otaola, Paulides, Salgán and Tívoli2013). Estos son consistentes con una adaptación cazadora recolectora pescadora fundamentada en un patrón de subsistencia litoral y marino. En segundo lugar, los profundos cambios culturales ocurridos a partir del contacto europeo tuvieron implicancias significativas en las estrategias de subsistencia y alimentación de estas poblaciones.
Comparación con la Dieta Humana del Archipiélago Patagónico: La Escala Supraregional
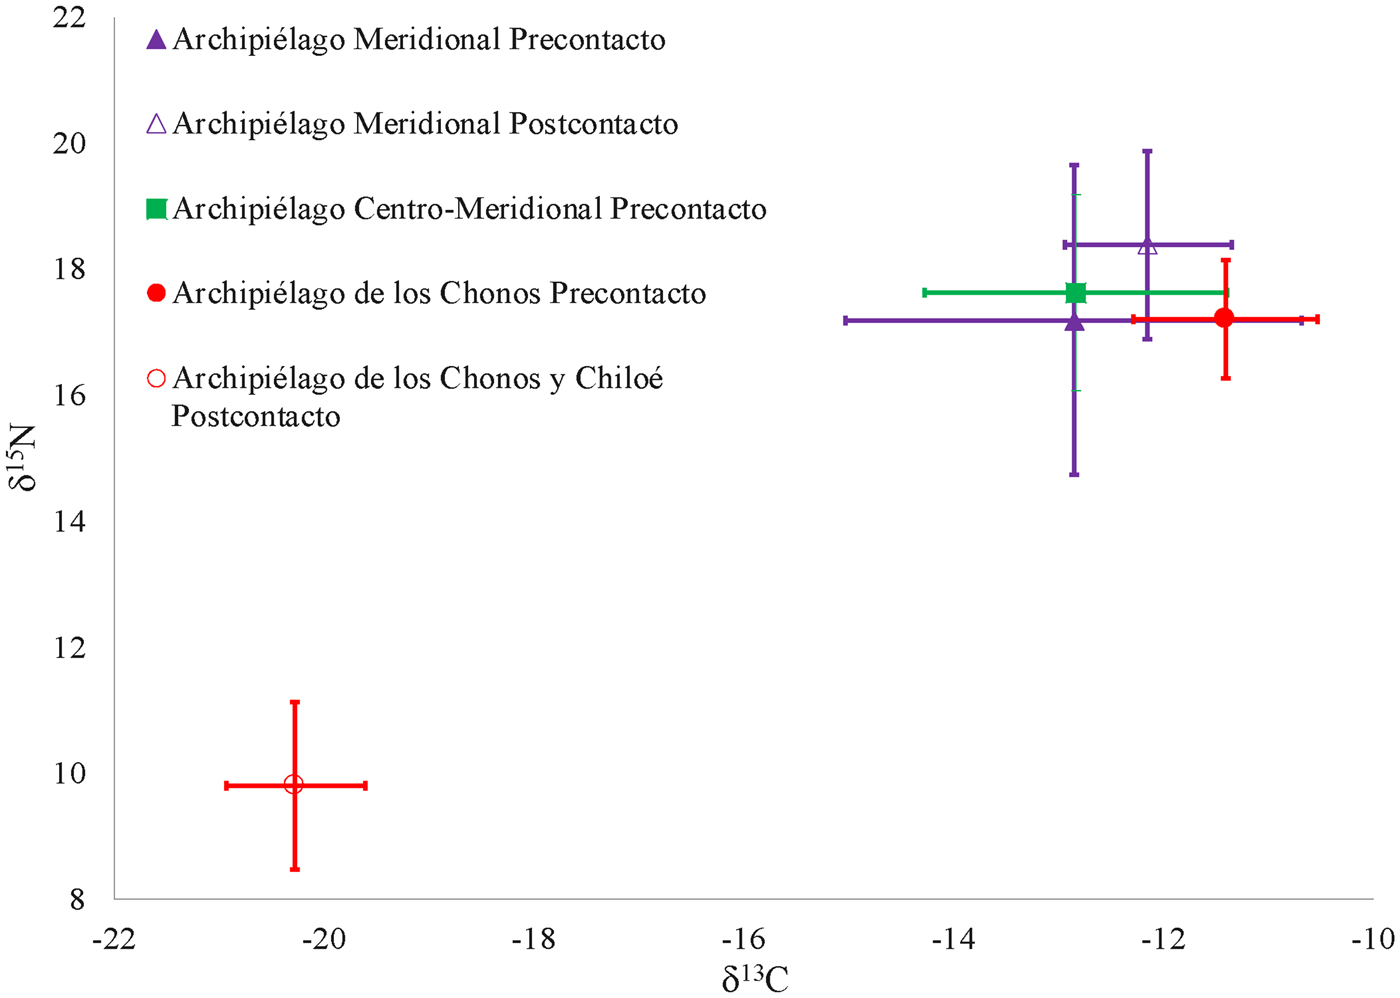
Se realizó una comparación del conjunto de individuos del archipiélago de los Chonos con los valores δ13C y δ15N de otras poblaciones canoeras del extremo sur del archipiélago patagónico (Alfonso et al. Reference Alfonso, Giles, Misarti, Román and Morello2015; Barberena Reference Barberena2002; Borrero et al. Reference Borrero, Guichón, Tykot, Kelly, Prieto and Cárdenas2001; Kochi Reference Kochi2017; Panarello et al. Reference Panarello, Zangrando, Tessone, Kozameh and Testa2006; Tafuri et al. Reference Tafuri, Zangrando, Tessone, Kochi, Cecchi, Di Vincenzo, Profico and Manzi2017; Tessone et al. Reference Tessone, Zangrando, Valencio and Panarello2003; Yesner et al. Reference Yesner, José Torres, Guichón and Borrero2003). En la Figura 7 se observa que las muestras precontacto constituyen un grupo bastante homogéneo para todo el archipiélago patagónico. Los valores reflejan claramente patrones de dieta de cazadores recolectores pescadores marinos (Barberena Reference Barberena2002; Borrero et al. Reference Borrero, Guichón, Tykot, Kelly, Prieto and Cárdenas2001; Kochi Reference Kochi2017; Panarello et al. Reference Panarello, Zangrando, Tessone, Kozameh and Testa2006; Reyes et al. Reference Reyes, Moraga, Aspillaga, Zangrando, Barberena, Gil, Neme, Giardina, Luna, Otaola, Paulides, Salgán and Tívoli2013; Tafuri et al. Reference Tafuri, Zangrando, Tessone, Kochi, Cecchi, Di Vincenzo, Profico and Manzi2017; Tessone et al. Reference Tessone, Zangrando, Valencio and Panarello2003; Yesner et al. Reference Yesner, José Torres, Guichón and Borrero2003). No obstante, los individuos precontacto del área centro-meridional y meridional presentan valores más negativos en el δ13C respecto al grupo del archipiélago de los Chonos (diferencia entre las medias mayor a 1 ‰; Tabla Suplementaria 2). Esta diferencia es estadísticamente significativa (Mann-Whitney p < 0,05). Una posible explicación puede ser el menor énfasis en la caza de herbívoros terrestres en el archipiélago de los Chonos a diferencia de lo registrado en los componentes faunísticos en el área más meridional (San Román Reference San Román2010; San Román et al. Reference San Román, Reyes, Méndez, Cárcamo and Torres2016; Zangrando Reference Zangrando2009). En el archipiélago de los Chonos, los recursos terrestres no tuvieron una contribución relevante en la dieta, como sí lo indican los conjuntos óseos con marcada presencia de guanaco en el canal Beagle (e.g., Orquera y Piana Reference Orquera and Piana1999) y de huemules en el archipiélago centro-meridional (e.g., Emperaire Reference Emperaire1963; Fernández et al. Reference Fernández, Cruz, Belardi, de Nigris and Muñoz2016).
Comparación de los valores isotópicos δ13C y δ15N promediados de diferentes grupos cazadores recolectores marinos precontacto y poscontacto del archipiélago patagónico.

Respecto a la comparación de los grupos poscontacto, las diferencias son realmente sustantivas. Mientras que en el archipiélago meridional luego del contacto occidental continuaron las dietas eminentemente marinas (Tafuri et al. Reference Tafuri, Zangrando, Tessone, Kochi, Cecchi, Di Vincenzo, Profico and Manzi2017), los individuos del archipiélago de los Chonos y Chiloé experimentaron profundos cambios dietarios. Esto fue probablemente inducido por las transformaciones en los modos de subsistencia que incluyeron prácticas hortícolas y el consumo de fauna terrestre (e.g., aves de corral, ganadería doméstica), minimizando el rol de los recursos marinos, anteriormente dominantes en épocas precontacto.
Conclusiones
El extenso archipiélago de Patagonia occidental con sus 1.600 km de longitud fue el escenario para el desarrollo de grupos canoeros cazadores recolectores pescadores adaptados a ambientes marinos. El registro arqueológico de las ocupaciones documentadas desde el Holoceno medio hasta el siglo veinte permite, junto a referentes históricos y etnográficos (estos últimos sólo en el área centro-meridional y meridional), definir patrones de dieta orientados a recursos litorales y marinos. Esta adaptación, en líneas generales, se refiere tanto a la dependencia mayoritaria de los recursos marinos de un ecosistema para la subsistencia de un grupo humano (Perlman Reference Perlman1980; Yesner Reference Yesner1980), como al desarrollo de tecnologías específicas para su obtención eficiente (Arnold y Bernard Reference Arnold and Bernard2005; Orquera y Piana Reference Orquera and Piana2005), en el marco de la organización espacial y rangos de acción establecidos por estos grupos (Ames Reference Ames, Fitzhugh and Habu2002; Borrero y Barberena Reference Borrero and Barberena2006; Pallo Reference Pallo2011). Así, la línea de evidencia isotópica estudiada en el archipiélago septentrional, junto al registro artefactual y faunístico, permite no solo refrendar una alta especialización y adaptación al ecosistema marino por parte de estos grupos canoeros, sino también distinguir cambios y diferencias en la dieta a lo largo de la secuencia temporal y en su comparación latitudinal con respecto a otros grupos de cazadores recolectores marinos del archipiélago patagónico, mostrándonos un panorama más diverso para las adaptaciones marinas del extremo sur sudamericano.
El análisis de los valores isotópicos realizados a un conjunto de restos humanos pre y poscontacto en el archipiélago de los Chonos y Chiloé respalda las interpretaciones previas respecto a una adaptación cazadora recolectora pescadora fundamentada en un patrón de subsistencia litoral y marino con pequeñas variaciones a lo largo del Holoceno tardío. En el conjunto precontacto no se observaron diferencias significativas en cuanto a variables como el sexo, categorías de edad o prácticas fúnebres. En cambio, la diferencia es estadísticamente significativa respecto al enriquecimiento de δ15N ocurrido hace aproximadamente 1.000 años atrás. Esto se interpreta como un mayor énfasis o diversidad de las prácticas de obtención de recursos marinos, los que aportaron con valores de nitrógeno más altos. No obstante, queda evaluar a futuro si esta diferencia obedece a cambios en la obtención de algunos recursos (mayor consumo de algunas especies) o a otras circunstancias (ingreso de nuevas tecnologías, cambios paleoecológicos). A su vez, la comparación entre los conjuntos pre y poscontacto arrojó diferencias significativas. Las mismas son explicadas por la disminución del consumo de recursos marinos en época poscontacto. Estos dejaron de ser una fuente alimentaria dominante, incorporándose recursos terrestres en la dieta. Dicho proceso se explica en el marco de las profundas transformaciones culturales sufridas luego del contacto occidental en los archipiélagos septentrionales a partir del siglo dieciséis. En cambio, los individuos del archipiélago meridional (canal Beagle) continuaron con la ingesta preponderante de recursos del medio litoral y marino luego del contacto europeo, traduciéndose esto en respuestas diferentes respecto a las profundas transformaciones que sufrieron estos grupos canoeros (Tafuri et al. Reference Tafuri, Zangrando, Tessone, Kochi, Cecchi, Di Vincenzo, Profico and Manzi2017).
Finalmente, al comparar los valores isotópicos de los individuos del área centro-meridional y meridional del archipiélago registramos valores más negativos en el δ13C. Esta situación reflejaría diferencias en los patrones de subsistencia por parte de los grupos canoeros, en el que los individuos del archipiélago de los Chonos presentan un menor énfasis en el consumo de fauna terrestre respecto a lo registrado para los grupos meridionales y tal como lo refleja el registro faunístico obtenido en esta zona. Esto señala distinciones en el espectro de las dietas marinas de los diferentes cazadores recolectores pescadores a lo largo de los canales occidentales de Patagonia, obedeciendo probablemente tanto a la diversidad ecológica presente en este extenso territorio como a trayectorias culturales diversas respecto a los patrones de subsistencia y consumo de recursos faunísticos.
Agradecimientos
Financiamiento FONDECYT N°1170726, 1130151, 1100643. FONDECYT Regional R17A10002. A la comunidad Huilliche Nahuelquín Delgado de isla Traiguén. Al equipo de trabajo: Pablo González, Manny Gómez, Erik Lukoviek, Víctor Godoy, Francisco Cayla y Javier Cárcamo. A Mauricio Osorio, Francisco Mena, Valentina Trejo, Jimena Torres, Jacqueline Galimany y Mauricio Moraga por su participación en diferentes etapas de estos trabajos.
Declaración de Disponibilidad de Datos
Los materiales arqueológicos se encuentran disponibles en el Departamento de Antropología de la Universidad de Chile, Departamento de Arqueología en el Centro de Investigación en Ecosistemas de la Patagonia en Coyhaique y en Centro de Estudios del Hombre Austral de la Universidad de Magallanes.
Materiales Suplementarios
Para acceder a los materiales suplementarios que acompañan este artículo visitar https://doi.org/10.1017/laq.2019.40.
Tabla Suplementaria 1: Número de restos identificados (NISP) y cantidad de taxones identificados por sitio arqueológico en el archipiélago de los Chonos (modificado de San Román et al. Reference San Román, Reyes, Méndez, Cárcamo and Torres2016).
Tabla Suplementaria 2: Estadística descriptiva de las poblaciones humanas que habitaron los canales occidentales de Patagonia.