Introducción
La población bovina cubana en la década del 60 estaba formada en un 96% por animales cebuinos. Bajo estas condiciones, Cuba se trazó como estrategia incrementar las potencialidades en la producción de leche, e indirectamente en la producción de carne, mediante el aumento del número de individuos. Para ello, en 1964 se creó el Programa Nacional de Genética, donde la inseminación artificial jugó un papel primordial en el cruzamiento de las poblaciones acebuadas con animales Holstein importados fundamentalmente de Canadá (Buxadera y Dempfle, Reference Buxadera and Dempfle1997). Esto posibilitó la creación de nuevas razas como es el caso Siboney de Cuba (⅝ Holstein – ⅜ Cebú Cubano), Mambí de Cuba (¾ Holstein – ¼ Cebú Cubano) y Taíno de Cuba (⅝ Holstein – ⅜ Criollo de Cuba).
Con el desarrollo de metodologías para la identificación de polimorfismos se ha demostrado que las cuatro caseínas (αS1-caseína, CASA1; β-caseína, BCAS; αS2-caseína, CASA2; κ-caseína, KCAS) y las dos principales proteínas séricas (β-lactoglobulina, LGB; α-lactoalbúmina, LAA) presentan diferentes formas alélicas, controladas por genes codominantes autosómicos (Ng-Kwai-Hang y Grosclaude, Reference Ng-Kwai-Hang and Grosclaude1992; Formaggioni et al., Reference Formaggioni, Summer, Malacarne and Mariani1999). Los métodos basados en la identificación de polimorfismos de ADN para el estudio de los genes que codifican para las proteínas lácteas se usan en un gran número de investigaciones, pues no dependen del sexo ni del estado de desarrollo fisiológico del individuo a caracterizar (Prinzenberg, Krause and Erhardt, Reference Prinzenberg, Krause and Erhardt1999).
El creciente interés en el estudio del polimorfismo existente en los genes que codifican para las proteínas lácteas se evidencia en el número creciente de investigaciones en este campo. Esto puede ser explicado por los diferentes niveles de relación encontrados entre estos polimorfismos y los niveles de producción o composición de la leche (Ripoli et al., Reference Ripoli, Antonini, Giovambattista, Luca, Corva, Rojas and Dulout2003; Tsiaras et al., Reference Tsiaras, Bargouli, Banos and Boscos2005; Kučerova et al., Reference Kučerova, Matějiček, Jandurová, Sørensen, Němcová, Štipková, Kott, Bouška and Frelich2006; Heck et al., Reference Heck, Schennink, van Valenberg, Bovenhuis, Visker, van Arendonk and van Hooijdonk2009; Bonfatti et al., Reference Bonfatti, Di Martino, Cecchinato, Vicario and Carnier2010), efectos en la salud humana (Elliott et al., Reference Elliott, Harris, Hill, Bibby and Wasmuth1999; McLachlan, Reference McLachlan2001) y la caracterización de razas (Silva and Del Lama, Reference Silva and Del Lama1997; Lien et al., Reference Lien, Kantanen, Olsaker, Holm, Eythorsdottir, Sandberg, Dalsgard and Adalsteinsson1999; Beja-Pereira et al., Reference Beja-Pereira, Erhardt, Matos, Gama and Ferrand2002; Uffo et al., Reference Uffo, Martín-Burriel, Martínez, Ronda, Osta, Rodellar and Zaragoza2006; Alipanah, Kalashnikova and Rodionov, Reference Alipanah, Kalashnikova and Rodionov2008).
Las razas autóctonas o adaptadas a un ambiente cuentan con una combinación de genes que no se encuentran en otras razas, permitiéndoles resistir a enfermedades, condiciones ambientales adversas y baja calidad nutricional de los alimentos (Maudet, Luikart and Taberlet, Reference Maudet, Luikart and Taberlet2002). La caracterización de estas poblaciones puede contribuir al desarrollo de estrategias racionales para su conservación (European Cattle Genetic Diversity Consortium, 2006).
El objetivo del presente trabajo fue estudiar las frecuencias alélicas de las principales proteínas lácteas en cinco genofondos bovinos cubanos (Siboney de Cuba, Criollo de Cuba, Cebú Cubano, Mambí de Cuba y Taíno de Cuba) para estimar la estructura genética en estas poblaciones.
Materiales y métodos
Animales y obtención del material genético
Se tomaron muestras de sangre en pleno cumplimiento de las normas establecidas por el comité de ética y bienestar animal, de 324 vacas representativas de cinco razas bovinas cubanas (Siboney de Cuba SC = 85, Criollo de Cuba CC = 60, Cebú Cubano ZC = 61, Mambí de Cuba MC = 60 y Taíno de Cuba TC = 58), cuyos rebaños son considerados de alto valor genético, con tres de ellos (SC, MC y TC) ubicados en la región occidental de la isla y los dos restantes (CC y ZC) en la región oriental. Los individuos en cada población no están relacionados genéticamente entre si. Se emplearon 0,5mL de 0,5M EDTA como anticoagulante y se procedió a la extracción y purificación del ADN mediante el método de precipitación salina descrito por Miller,Dykes and Polesky (Reference Miller, Dykes and Polesky1988).
Genotipado de las seis proteínas lácteas
Las condiciones de reacción fueron descritas previamente (Osta, Reference Osta1994; Uffo, Reference Uffo2003; Acosta et al., Reference Acosta, Sanz, Uffo, Ronda, Osta, Martin-Burriel, Rodellar and Zaragoza2011). La mezcla de reacción estaba compuesta de buffer de reacción 10X libre de magnesio, 50 mM |MgCl2, 1,25 mM dNTPs, 20 nmol/μL oligonucleótidos correspondientes para cada uno de los fragmentos a amplificar y 2U de ADN polimerasa comercial (Promega). Se emplearon 40 ng de ADN por cada muestra y se completó el volumen de reacción a 30 µL con agua.
Las metodologías empleadas para establecer el genotipo de las muestras fueron tres: la creación de los sitios de restricción (ACRS, Amplification Created Restriction Sites) para CASA1 (Lien et al., Reference Lien, Kaminski, Aleström and Rogne1993) y CASB (Medrano y Sharrow, Reference Medrano and Sharrow1991), tipificación del polimorfismo de longitud de los fragmentos de restricción (RFLP, Restriction Fragment Length Polymorphism) para la CASA2 (Osta, Reference Osta1994), la LAA (Osta, Reference Osta1994) y LGB (Medrano y Aguilar-Córdova, Reference Medrano and Aguilar-Córdova1990), y la metodología oligonucleotidos alelo-específicos (ASO, Allele-Specific Oligonucleotides) empleada para el genotipado de la KCAS (Osta, Reference Osta1994).
A partir de 10 µL del producto amplificado se procedió a la digestión con las enzimas específicas para cada uno de los fragmentos, siendo la temperatura de incubación de 37 °C durante 3 horas (Osta, Reference Osta1994; Uffo, Reference Uffo2003; Acosta et al., Reference Acosta, Sanz, Uffo, Ronda, Osta, Martin-Burriel, Rodellar and Zaragoza2011). La visualización del producto digerido se realizó por medio de una electroforesis en gel de agarosa al 2%, TBE 0.5X, con tinción de Blue Green Loading Dye I (LGC Biotecnologia), empleando 0.3 µL por cada 5 µL de producto digerido.
Procesamiento estadístico
Fue empleado el programa GENEPOP versión 3.4 (Raymond y Rousset, Reference Raymond and Rousset1995; Rousset, Reference Rousset2008) para el cálculo de las frecuencias alélicas, genotípicas y la prueba exacta de la desviación de los locus del estado de equilibrio Hardy–Weinberg. El programa Arlequin (Excoffier, Laval and Schneider, Reference Excoffier, Laval and Schneider2005) fue empleado en el cálculo del número de alelos por locus y la heterocigosidad observada (Ho) y esperada (He). Para estimar la relación genética existente entre las cinco poblaciones, se aplicó un análisis de componentes principales con empleo del programa SPSS versión 8.0.0 (SPSS Inc., Chicago) partiendo de la frecuencia genotípica de cuatro locus, exceptuando la BCAS y CASA2.
Resultados y discusión
Variabilidad por loci
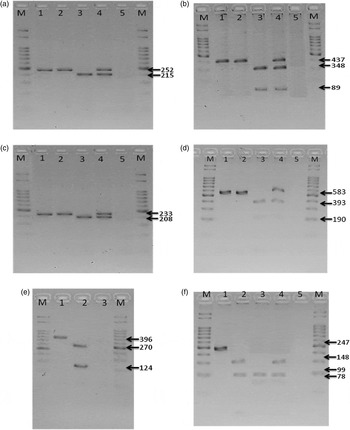
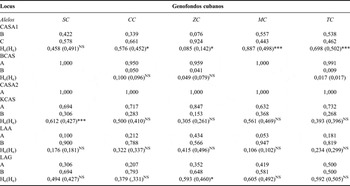
Tras el genotipado de 324 muestras de los seis genes de las proteínas lácteas se estimaron las frecuencias alélicas y se calculó la heterocigosidad observada y esperada en cada grupo (Tabla 1). Las variantes alélicas observadas se muestran en la Figura 1. De manera general se apreció un comportamiento polimórfico en todos los loci, con excepción del locus CASA2, que se comportó monomórfico en todas las poblaciones evaluadas y el locus BCAS en las poblaciones SC y MC.
Visualización de genotipos encontrados en genofondos cubanos. (a) CASA1 MPM 50pb; L. 1 producto amplificado; L. 2 CC; L. 3 BB; L. 4 BC; L. 5 control negativo. (b) CASB MPM 50pb; L. 1 producto amplificado; L. 2 BB; L. 3 AA; L. 4 AB; Línea 5 control negativo. (c) CASA2 MPM 50pb; L. 1 producto amplificado; L. 2 AA; L. 3 control negativo. (d) CASK MPM 100pb; L. 1 producto amplificado; L. 2 AA; L. 3 BB, L. 4 AB; L. 5 control negativo. (e) LAA MPM 100pb; L. 1 producto amplificado, L. 2 AA; L. 3 BB; L. 4 AB; L. 5 control negativo. (f) LGB MPM 50pb; L. 1 producto amplificado; L. 2 AA; L. 3 BB; L. 4 AB; L. 5 control negativo.

Frecuencia alélica, heterocigosidad observada (Ho) y esperada (He) y estado de equilibrio Hardy–Weinberg de los loci en estudio en cinco genofondos cubanos.

NS: No significativo *P < 0,05 ** P < 0,01 *** P < 0,001.
En el locus CASA1 (Figura 1a) se observaron altas frecuencias para el alelo C. Este resultado era de esperar para la población de ZC, así como para aquellas donde participó en su formación (SC y MC). Similares resultados se describen en estudios donde incluyen razas pertenecientes al género Bos indicus (Silva y Del Lama, 1997; Ceriotti et al., Reference Ceriotti, Marletta, Caroli and Erhardt2004). Nuestros resultados reafirman los ya publicados en estudios previos de poblaciones incluidas en esta investigación (Uffo et al., Reference Uffo, Martín-Burriel, Martínez, Ronda, Osta, Rodellar and Zaragoza2006), pues el comportamiento frecuencial de alelos C es similar al expuesto en el presente trabajo. Las altas frecuencias del alelo C en poblaciones Bos taurus (CC) y el cruzamiento en que participan (TC) indican un alto grado de introgresión de genes Bos indicus en estas poblaciones. Estos resultados se sustentan por los obtenidos por Lirón et al. (Reference Lirón, Acosta, Rogberg-Muñoz, Uffo, Posik, García, Peral García and Giovambattista2011) donde tras estudiar cinco microsatélites del cromosoma y del ganado CC observaron haplogrupos cebuinos Y3. La heterocigosidad observada fue superior a la esperada, apreciándose un desvío del estado de equilibrio Hardy–Weinberg en las poblaciones CC, MC y TC. El desequilibrio observado en el ZC fue debido a una disminución de la Ho; en los estudios realizados por Silva y Del Lama (1997) se aprecian valores de Ho inferiores a la He.
El alelo A del locus BCAS (Figura 1b) se comportó fijado para las poblaciones SC y MC, mientras que para las restantes poblaciones su frecuencia fue superior o igual a 0,95, siendo muy próximo a la fijación en el caso del TC. Estos resultados, comparados con estudios previos en los genofondos SC, CC y ZC realizado por Uffo et al. (Reference Uffo, Martín-Burriel, Martínez, Ronda, Osta, Rodellar and Zaragoza2006), indican una reducción de la diversidad genética en estas poblaciones. Las altas frecuencias de alelo A se han puesto de manifiesto en otras investigaciones donde se estudian razas taurinas y cebuinas (Mahé et al., Reference Mahé, Miranda, Queval, Bado, Zafindrajaona and Grosclaude1999), pues al sumar las diferentes variantes del alelo A en los dos grupos de razas se obtienen valores similares a los encontrados en nuestra investigación. Este locus se manifiesta en equilibrio Hardy–Weinberg para las razas CC y ZC; en la población TC no se analizaron las condiciones de equilibrio por encontrarse el alelo A prácticamente fijado.
El locus CASA2 (Figura 1c) se comportó monomórfico para el alelo A en las cinco poblaciones estudiadas. Similares resultados se describen en los estudios realizados por Uffo et al. (Reference Uffo, Martín-Burriel, Martínez, Ronda, Osta, Rodellar and Zaragoza2006), también en poblaciones de la raza española Rubia Gallega (Osta et al., Reference Osta, Marcos, Martin, García-Muro and Zaragoza1995). Otros estudios en razas portuguesas refieren que el alelo A está fijado en las poblaciones evaluadas (Beja-Pereira et al., Reference Beja-Pereira, Erhardt, Matos, Gama and Ferrand2002). Por otra parte, en la investigación de Jann et al. (Reference Jann, Ibeagha-Awemu, Özbeyaz, Zaragoza, Williams, Ajmone-Marsan, Lenstra, Moazami-Goudarzi and Erhardt2004) donde se estudiaron 30 razas, se observó que en 20 de ellas el alelo A está fijado y en otras cinco razas su frecuencia es superior a 0,95.
Para el locus KCAS (Figura 1d) las mayores frecuencias se observaron en el alelo A, el cual también se comportó con las mayores frecuencias en cuatro razas del ganado cebú brasileño (Silva y Del Lama, 1997). En el caso del ganado taurino la frecuencia reportada para el alelo A fueron superiores al 0,5, con excepción de la raza Marinhoa donde se observó una frecuencia de 0,25 (Beja-Pereira et al., Reference Beja-Pereira, Erhardt, Matos, Gama and Ferrand2002). De forma similar se comportan las razas nórdicas, pues de 22 poblaciones estudiadas 17 mostraron una frecuencia del alelo A superior a 0,5 (Lien et al., Reference Lien, Kantanen, Olsaker, Holm, Eythorsdottir, Sandberg, Dalsgard and Adalsteinsson1999). En el caso de dos razas rusas (Black Pied y Red Pied) las frecuencias del alelo A son mayoritarias con valores de 0,83 y 0,69, respectivamente (Alipanah Kalashnikova and Rodionov, 2008). Se aprecia una desviación del estado de equilibrio Hardy–Weinberg en el SC con un exceso de la heterocigosidad.
El locus LAA muestra con mayor frecuencia el alelo B en las cinco poblaciones (Figura 1e). Comparativamente, son menores las frecuencias encontradas del alelo A con respecto a estudios previos en poblaciones cubanas (Uffo et al., Reference Uffo, Martín-Burriel, Martínez, Ronda, Osta, Rodellar and Zaragoza2006), pero son superiores a las descritas en razas Bos taurus (Mahé et al., Reference Mahé, Miranda, Queval, Bado, Zafindrajaona and Grosclaude1999). El interés en el comportamiento de la frecuencia del alelo A se debe a que fue empleado como marcador racial en los cruces donde participó el CC (Pérez-Beato y Granado, Reference Pérez-Beato and Granado1982). En tal sentido se evidencian altas frecuencias del alelo A en razas cebuinas con valores que van desde 0,176 a 0,386 en Silva y Del Lama (1997) y desde 0,17 a 0,29 en el reporte de Mahé et al. (Reference Mahé, Miranda, Queval, Bado, Zafindrajaona and Grosclaude1999). Por otra parte, para las razas españolas se describe el alelo B fijado (Osta et al. Reference Osta, Marcos, Martin, García-Muro and Zaragoza1995), por lo que la presencia de alelos A en la raza CC constituye un elemento más para demostrar la introgresión de genes Bos indicus en estas poblaciones. Este locus se comportó en equilibrio Hardy–Weinberg para todas las poblaciones.
El alelo B del locus LAG (Figura 1f) se observó con mayor frecuencia en las cinco poblaciones, con valores de la misma mayores que 0,5. Este alelo se encuentra ampliamente distribuido en poblaciones Bos taurus y Bos indicus, como alelo predominante. Ejemplo de ello se encuentra en poblaciones cebuinas brasileñas (Silva y Del Lama, 1997) y en razas nórdicas donde 20 de estas presentaron frecuencias superiores a 0,5, de un total de 22 razas estudiadas (Lien et al., Reference Lien, Kantanen, Olsaker, Holm, Eythorsdottir, Sandberg, Dalsgard and Adalsteinsson1999). También se observa este comportamiento de altas frecuencias del alelo B en poblaciones Bos taurus y Bos indicus incluida en los estudios de Mahé et al. (Reference Mahé, Miranda, Queval, Bado, Zafindrajaona and Grosclaude1999) y Ceriotti et al. (Reference Ceriotti, Marletta, Caroli and Erhardt2004). Se observó una desviación del equilibrio Hardy–Weinberg en la raza ZC con un exceso de heterocigotos. En el estudio previo realizado por Uffo et al. (Reference Uffo, Martín-Burriel, Martínez, Ronda, Osta, Rodellar and Zaragoza2006) se observó una desviación del equilibrio para este locus, pero sólo en la raza SC.
Diversidad genética y diferenciación de las poblaciones
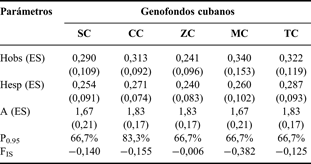
Para estimar la estructura genética de las poblaciones en el estudio se calcularon cinco indicadores genéticos que permiten inferir el grado de diversidad en las mismas (Tabla 2).
Parámetros medidos para evaluar la variabilidad genética en los cinco genofondos cubanos. Heterocigosidad media observada (Hobs) y esperada (Hesp), número medio de alelos (A), porcentaje de loci polimórficos (P0,95) e índice de fijación (FIS). Errores estándar dentro de paréntesis.
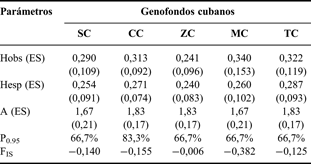
La heterocigosidad media observada en las cinco poblaciones es mayor que la esperada, con valores del coeficiente de fijación negativos y significativamente inferiores de cero, con excepción en la raza ZC. Analizando estos resultados de forma conjunta con los obtenidos del estado de equilibrio Hardy–Weinberg por locus y por población, se observa que todos los grupos genéticos tienen al menos un locus desviado de esta condición de equilibrio y siempre por exceso de heterocigotos, por lo que los valores medios de Hobs, Hesp y FIS pudiesen explicarse por esta causa. Esto pudiera deberse a la disminución considerable en el número de individuos de estos rebaños por el deterioro de la economía del país, que imposibilitó la satisfacción de los requerimientos mínimos de estas poblaciones, quedando sujetas al proceso de selección natural, donde se espera que sobrevivan los animales con una mayor capacidad de adaptación, es decir los heterocigotos (Fisher, Reference Fisher1930; Ortiz y Montes de Oca, Reference Ortiz and Montes de Oca2003).
El porciento de loci polimórficos en cuatro de las poblaciones en estudio fue de 66,7%, siendo superior para el ganado CC con un 83,3% de loci polimórficos. En el caso de las razas SC, CC y ZC que fueron evaluadas previamente (Uffo et al., Reference Uffo, Martín-Burriel, Martínez, Ronda, Osta, Rodellar and Zaragoza2006), el indicador de P0,95 se mantiene igual en las razas CC y ZC, mientras que en el SC se observó el locus BCAS fijado para el alelo A. El número medio de alelos por población se comportó de igual forma, observándose una reducción del mismo en el SC a 1,67, al compararse con estudios previos.
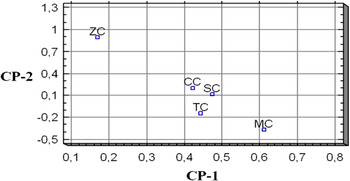
Para determinar la relación entre las poblaciones se aplicó un análisis de componentes principales (Figura 2), pudiéndose agrupar el 93,57% de la variabilidad total en dos componentes (CP-1 y CP-2).
Ploteo de las dos principales componentes (CP-1 y CP-2) a partir de la distribución de frecuencia genotípica de cinco locus. El CP-1 acumula el 69.61% y el CP-2 el 23.96% del total de la variación.

Se observa que el ZC se aleja de las restantes poblaciones, aún y cuando formó parte en la conformación de dos de ellas (SC y MC). Este resultado es esperado, si partimos de estudios previos donde se involucran las poblaciones SC, CC y ZC con empleo de otra metodología molecular para la identificación del polimorfismo (RAPD), donde el ZC se ubica formando un grupo en el dendograma que muestra las relaciones genéticas entre estas poblaciones (Acosta et al., Reference Acosta, Vazquez, Salazar and Uffo2010). El agrupamiento del CC, SC y TC puede deberse, en el caso de los dos últimos, a la proporción de Holstein usada en su formación (5/8 para ambos casos), lo cual explica el acercamiento de estas con el CC, de origen mayoritariamente taurino. En el caso del MC las proporciones de las razas que lo originaron son diferentes, por lo que su comportamiento genotípico hace que se comporte como un grupo aislado de los otros, aunque su ubicación lo acerca a las poblaciones CC, SC y TC.
Conclusiones
Se evidencia la presencia de genes Bos indicus en las poblaciones CC y TC debido a las frecuencias alélicas CASA1C y LAAA observadas. Se aprecia un incremento de la heterocigosidad en estas poblaciones y las frecuencias genotípicas en cada población permiten diferenciar estas de aquellas que la originaron.
Agradecimientos
Este trabajo fue financiado en parte por dos becas de estudios de MAEC-AECID, España, y un proyecto CAPES-MES 085–09, Brasil–Cuba. Los autores quieren agradecer a la Dirección Nacional de Genética (Cuba) por su contribución en la recopilación de las muestras analizadas. También nos gustaría agradecer a las especialistas Carmen Cons y Zoraide Fernandes por su asistencia técnica.
Declaración de interés
No hay intereses relevantes.