Introduction
Au Niger, les caprins représentent 36% du cheptel (Niger, 2007) et occupent une place de choix dans la vie socioéconomique et culturelle de la population. Ils constituent une spéculation importante en matière de commercialisation de bétail sur pied, mais aussi de production. C'est également une source principale de protéines animales en milieu rural.
L'espèce caprine se présente sous trois races au Niger: la chèvre du sahel (79,54%) qui est présente dans toutes les régions du pays, la chèvre rousse (17,48%) prédominante dans la bande sud du pays et la chèvre naine d'Afrique de l'Ouest (chèvre Djallonké) dite localement chèvre « gourma » (2,98%) qui est présente dans la partie ouest de la région de Tillabéry à la frontière avec le Burkina Faso (Rhissa, Reference Rhissa2010).
Comparativement à la chèvre rousse de Maradi qui a fait l'objet de nombreuses investigations sur les plans ethnologique et zootechnique (Robinet, Reference Robinet1967; Marichatou et al., Reference Marichatou, Mamane, Banoin and Baril2002; Hamidou,Reference Hamidou1995; Saadou, Reference Saadou2005; Mani, Reference Mani2009; etc.), il existe peu ou pas de données scientifiques sur la chèvre du sahel, malgré son importance numérique et son omniprésence dans toutes les zones climatiques du Niger.
Cette étude vise à établir les caractéristiques phénotypiques qualitatives de la chèvre du sahel au Niger. En effet, si la caractérisation phénotypique vise à identifier et établir la diversité inter et intra races à travers des traits physiques, les paramètres qualitatifs, partie intégrante de cette caractérisation phénotypique, renseignent autrement sur les caractères d'adaptation des races à leur milieu d'élevage mais aussi, peuvent traduire les préférences des acteurs (éleveurs et consommateurs) ou des aspects culturels (FAO, 2012).
Matériel et Méthodes
Echantillon d'étude
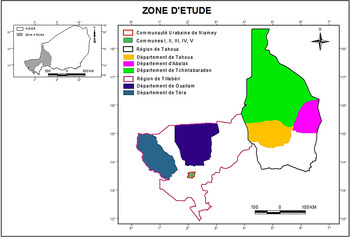
L'étude a été conduite dans la partie Nord-Ouest du Niger, notamment, les régions de Tahoua (départements de Tahoua, Abalak et Tchintabaraden), Tillabéry (département de Téra et Ouallam) et la Commune Urbaine de Niamey (figure 1) de juillet 2011 à mai 2012. Les échantillons de sites et d'individus ont été calculés à partir de la formule de proportion suivante:
 $${\rm n}=\lpar {\rm Z}/{\rm e}\rpar ^2 \times {\rm p}\lpar 1-{\rm p}\rpar$$
-
– “n” est la taille de l'échantillon;
-
– “Z” est le niveau de confiance, en général, Z = 1,96 à un intervalle de confiance de 95%;
-
– “P” est le niveau initial des indicateurs;
-
– “e” est la marge d'erreur.
Du fait de l'importance de la chèvre du sahel dans la zone d'étude, les valeurs de “P” et “e” choisis pour les calculs du nombre de sites et d'individus sont respectivement de 80% et 10% et 50% et 5%. En outre, s'agissant de l'échantillon d'individus, un forfait supplémentaire de 15% de la valeur calculée a été ajouté.
Zone d’étude

En raison du manque de données sur les effectifs caprins au niveau villageois d'une part et en fonction du mode d'élevage dans la zone échantillon d'autre part, le nombre d'individus dans les sites n'a pas été pondéré en fonction de la densité des caprins.
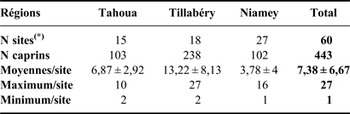
Au total 443 caprins (77% des femelles) appartenant à 145 exploitations sur 60 sites choisis au hasard en fonction de l'adhésion volontaire des éleveurs ont été caractérisés. Le tableau 1 présente le nombre de sites et de caprins par région de l'échantillon d'étude. Selon l'âge, apprécié à partir de l'échelle de dentition (Hamito, Reference Hamito2009), l'échantillon est composé de 22,1% de caprins de 0 – 1 an; 16,5% de 1 – 2 ans; 22,3% de 2 – 3 ans; 18% de 3 – 4 ans et 20,3% de plus de 4 ans.
Nombre de sites et de caprins par région de l'échantillon d'étude

N = nombre
(*) Site = village ou quartier
Indicateurs de caractérisation
Plusieurs critères de classification des races caprines africaines ont été relatés par Bouchel et Lauvergne (Reference Bouchel and Lauvergne1996). Les indicateurs de caractérisation considérés dans cette étude, extraits de FA0 (1986), Lauvergne et al. (Reference Lauvergne, Bourzat, Souvenir, Zeuh and Ngo Tama1993) et FAO (2012) sont les ports des oreilles et des cornes, la présence/absence de la barbiche et de pampilles (pendeloques), la structure (longueur et type) de pelage et les patrons pigmentaires. Ces paramètres ont été appréciés par observation directe et les informations sont répertoriées sur une fiche de caractérisation élaborée à cet effet. Cependant, pour la détermination des patrons pigmentaires, l'échelle visuelle présentée dans la note technique de Danchin-Burge (lien électronique: idele.fr/?eID = cmis_download&oID = workspace://SpacesStore/415d632d-8485-495c-9e02-87c53ab30fcc) a été utilisée. Cette échelle distingue neufs (9) patrons pigmentaires dont:
-
➢ deux patrons unis: eumélanique (noir ou chocolat) et phaeomélanique;
-
➢ cinq patrons présentant des variations de mélanine au niveau dorsal, ventral et de la face: joue rouge, eumélanique et feu, eumélanique uni et feu à ventre clair, chamoisé (ou blaireau, ou badger face) et patron sauvage;
-
➢ Deux patrons mantelés: mantelé antérieur et mantelé postérieur.
Sur ces patrons, il peut y avoir des dépigmentations de la phaeomélanine mais aussi, des panachures. Les dépigmentations peuvent s'étendre sur le corps entier de l'animal se traduisant par un mélange de poils blancs soit sur un animal de couleur entièrement noir ce qui donne le gris, soit sur un animal de couleur entièrement rouge, ce qui donne le rouan ou au niveau de la tête (à la base des oreilles, des yeux ou du nez) donnant l'impression des mouchetures, on parle de « frosting ».
Les panachures quant à elles sont des altérations pigmentaires qui, se caractérisent par la présence des tâches blanches à contour irrégulier sur une ou plusieurs parties du corps allant de la simple tâche (panachure localisée), à la grande panachure étendue à la quasi-totalité du corps (panachure généralisée), rendant souvent même difficile la lecture du patron pigmentaire (patron illisible).
A partir des données des paramètres visuels, les indices de primarité (ou de traditionalité) tels que définis par Machado, Lauvergne et Souvenir zafindrajaona (Reference Machado, Lauvergne and Souvenir Zafindrajaona1992) et Lauvergne et al. (Reference Lauvergne, Bourzat, Souvenir, Zeuh and Ngo Tama1993) ont été calculés.
-
➢ Indice de primarité «loci à effet visible en ségrégation» (IPs): c'est la fréquence (ou pourcentage) du nombre des loci à effet visible en ségrégation (ns) rapporté au nombre total de loci à effet visible (Ns) identifiés dans l'espèce.
 $${\rm IPs}={\rm ns}/{\rm Ns}$$
-
➢ Indice de primarité allèles au locus agouti (IPa): Soit Na le nombre total d'allèles en agouti considéré dans une population et na le nombre d'allèles identifiés dans cette même population, l'indice de primarité allèles au locus agouti se définit comme suit:
$${\rm IPa}=\lpar {\rm na}-1\rpar /\lpar {\rm Na}-1\rpar$$


Analyses statistiques
Les différents indicateurs étant codifiés, une maquette élaborée au logiciel SPSS 17.0 a été utilisée pour enregistrer toutes les informations recueillies. Ces dernières ont fait l'objet d'une analyse descriptive préliminaire et de test de comparaison (Test de Khi carré) au logiciel SPSS et une analyse en composante multiple (ACM) au logiciel XLSTAT 2012.
Résultats
Analyse descriptive des paramètres qualitatifs étudiés
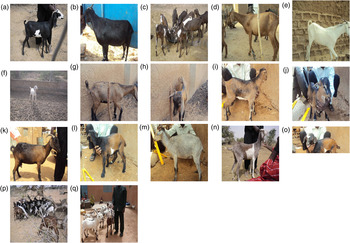
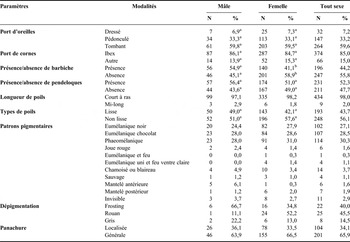
Le tableau 2 présente les fréquences observées selon le sexe des paramètres qualitatifs étudiés. Il ressort de ce tableau que le port d'oreilles est tombant (60%) aussi bien chez les mâles que chez les femelles, les cornes sont de type ibex dans plus de 85% des cas (chez les deux sexes). La barbiche et les pendeloques sont observées sur les deux sexes en moyenne respectivement sur 44,2% (54,9% des mâles et 41,1% des femelles) et 52,3% (56,4% des mâles et 51% des femelles) des animaux. Le pelage chez les deux sexes est entièrement court à ras (plus de 97%) et lisse à 56,1 % (51% des mâles et 57,6% des femelles). Il ressort en outre que tous les patrons pigmentaires ont été observés avec une prédominance des patrons phaeomélanique (30% en moyenne avec 28% des mâles et 31% des femelles), eumélanique chocolat (29% en moyenne dont 28% des mâles et 29% des femelles) et eumélanique noir (27% en moyenne dont 24,4% des mâles et 28% des femelles). Il faut cependant noter que la majorité de patrons observés (68,84%) est panachée (tache blanche) dont 65% panachure généralisée (64% des mâles et 67% des femelles); le pourcentage de dépigmentation est de 11,5% dont les plus dominantes sont le rouan avec en moyenne 45,5% (11,1% des mâles et 52,2% des femelles) et le frosting qui représente 40% (66,7% des mâles et 34,8% des femelles). La figure 2 présente quelques patrons observés.
Quelques patrons pigmentaires observés [eumélanique noir Téra (a), eumélanique noir Niamey (b), eumélanique chocolat Téra (c), phaeomélanique Niamey (d), patron illisible Niamey (e), patron illisible Téra (f), chamoisé Niamey (g et h), sauvage Niamey (i et j), mantelé postérieur Niamey (k), mantelé antérieur Niamey (l), grise Niamey (m), chèvre rouanée Téra (n), frosting Niamey (o), panachure Téra et Oullam (p et q)].

Répartition des fréquences des paramètres qualitatifs selon le sexe

Les fréquences selon le sexe portant des lettres différentes sur la même ligne sont statistiquement différentes.
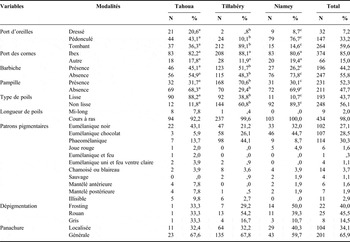
En considérant les variables (tableau 2) dont les modalités ont des effectifs supérieurs à 5 (ports d'oreilles et de cornes, présence/absence de barbiche et des pampilles, types de poils), la répartition des fréquences selon le sexe est statistiquement non significative (P > 0,0 5) à l'exception de la présence/absence de barbiche (P = 0,014). S'agissant de la répartition selon les régions, le test de Khi carré indique qu'elle est statistiquement significative pour les paramètres présence/absence de barbiche et des pampilles, port d'oreilles, type de poils et non significative pour port de cornes (tableau 3).
Paramètres qualitatifs selon les régions

Les fréquences sur la même ligne, portant des lettres différentes sont significativement différentes selon les régions.
Indices de primarité
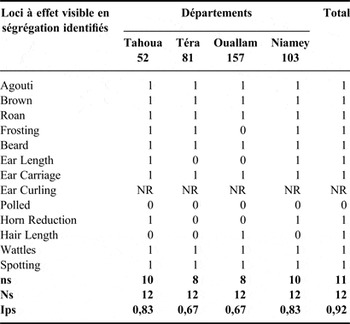
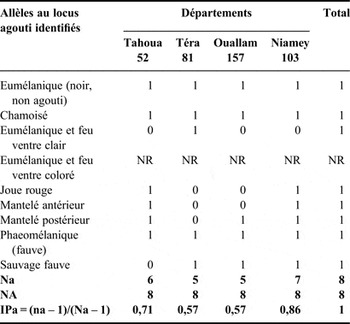
Les tableaux 4 et 5 présentent respectivement les différents loci à effet visible en ségrégation et les allèles au locus agouti identifiés. Dans les départements d'Abalak et de Tchintabaraden (1ers sites d'enquête), les données pour les indices de primarité n'ont pas été abordées. Il ressort (tableau 4) que sur la population totale, IPS = 0,92. En effet, un seul locus à effet visible en ségrégation pressenti notamment «polled» caractérisant les chèvres mottes n'a pas été identifié. La valeur de l'IPS varie selon les départements, elle est de 0,83 dans le département de Tahoua et à Niamey et 0,67 dans les départements de Téra et Ouallam (région de Tillabéry). Cependant, le tableau 5 indique que les allèles au locus agouti pressentis et recherchés ont tous été identifiés dans la zone d'étude, IPA = 1. Selon les départements, l'IPA varie de 0,57 à 0,86.
Indice de primarité «loci à effet visible en ségrégation» (IPs)

NR = Non recherché Ns: nombre total de loci à effet visible identifiés, ns : nombre des loci à effet visible en ségrégation rapporté.
Indice de primarité allèles au locus agouti (IPa)

NR = Non recherché; NA: nombre total d'allèles en agouti considéré dans une population; na : na le nombre d'allèles identifié.
Analyse multi-variée des paramètres qualitatifs
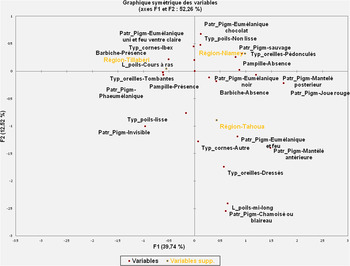
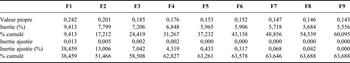
Au-delà de l'étude de la traditionalité, une Analyse en Composante Multiple (ACM) a été conduite afin de mieux apprécier la dispersion des paramètres phénotypiques visibles. Les deux premiers axes factoriels F1 et F2 totalisent 51,47% de l'inertie cumulée (tableau 6). La proportion des contributions élevées des modalités des différentes variables est la plus importante sur ces axes, mais aussi, ces axes représentent la plus grande proportion des cosinus carrés élevés des modalités. Le premier plan factoriel (F1-F2) peut cependant être utilisé pour l'interprétation. La carte factorielle des modalités (figure 3) indique que toutes les modalités sont bien représentées. Il ressort que:
-
– le port d'oreilles est majoritairement pédonculé dans les régions de Tahoua et Niamey et tombant dans la région de Tillabéry; le port d'oreilles dressées bien que faiblement représenté dans les trois régions est majoritaire dans la région de Tahoua;
-
– les cornes conformément au test de Khi carré, sont majoritairement de type ibex dans les trois régions avec une forte proportion dans la région de Tillabéry;
-
– la barbiche et les pampilles sont présentes sur la majorité de chèvres de la région de Tillabéry et majoritairement absentes dans les populations caprines de la région de Niamey et Tahoua;
-
– les poils, de types majoritairement lisses dans la région de Tahoua et non lisses dans les régions de Tillabéry et Niamey, sont presque exclusivement courts à ras dans les trois régions;
-
– S'agissant des patrons pigmentaires, la figure 3 montre que le patron phaeomélanique est majoritairement observé à Tillabéry (majorité des chèvres), eumélanique noir est observé dans les trois régions avec des proportions beaucoup plus importantes à Tahoua et Niamey, eumélanique chocolat est majoritairement observé à l'ouest (Niamey et Tillabéry), joue rouge est majoritairement identifié à Niamey et absent dans la région de Tillabéry, eumélanique et feu est exclusivement signalé dans la région de Tahoua, eumélanique et feu ventre clair est observé à Tahoua et Tillabéry, chamoisé est indiqué dans les trois régions et majoritairement dans la région de Tillabéry, sauvage à Niamey et Tillabéry, mantélé antérieur et postérieur majoritairement à Tahoua et les chèvres totalement panachées (patron invisible) sont identifiées dans les trois régions.
Carte factorielle des modalités des paramètres phénotypiques qualitatifs

Discussion
Seuls ou associés à d'autres, les indicateurs choisis dans cette étude sont classiques pour la caractérisation des petits ruminants en Afrique et à travers le monde (Lauvergne et al., Reference Lauvergne, Bourzat, Souvenir, Zeuh and Ngo Tama1993; Lanari et al., Reference Lanari, Taddeo, Domingo, Perez-Centeno and Gallo2003; Traoré et al., Reference Traoré, Tamboura, Kaboré, Yaméogo, Bayala and Zaré2006; Traoré et al., Reference Traoré, Hamidou, Adama, Luis, Ivan, Isabel, Sangaré, Bouchel, Jean Paul, Dominique, Sawadogo and Goyache2008; Hamito, Reference Hamito2009; Yakubu, Reference Yakubu, Raji and Omeje2010; Halima et al., Reference Halima, Michael, Barbara and Markos2012).
Valeurs propres et pourcentages d'inertie selon les axes

Le port d'oreilles est à environ 60% tombant et 33% pédonculé. Pareils constats ont été rapportés sur la chèvre du sahel au Burkina et au Tchad (Traoré et al., Reference Traoré, Hamidou, Adama, Luis, Ivan, Isabel, Sangaré, Bouchel, Jean Paul, Dominique, Sawadogo and Goyache2008; Dumas, Reference Dumas1980). En effet, selon Dumas (Reference Dumas1980), les oreilles de la chèvre du sahel tchadienne sont longues, larges, pendantes sur les joues, dépassant le museau lorsqu'elles sont rabattues vers l'avant.
Tous les animaux (100%) sont cornus (aucun animal motte a été rencontré). Cela est conforme aux résultats rapportés par Yakubu, Raji et Omeje (Reference Yakubu, Raji and Omeje2010) sur les chèvres locales du Nigéria, Lauvergne et al. (Reference Lauvergne, Bourzat, Souvenir, Zeuh and Ngo Tama1993) au Nord Cameroun. Les cornes sont l'un des appendices importants en milieu tropical car intervenant dans le mécanisme de thermorégulation (Robertshow, Reference Robertshaw2006; FAO, 2012). Dans le cadre de cette étude, les dimensions des cornes varient en fonction de l'âge et du sexe. Elles sont longues chez les animaux adultes, fines chez les femelles et épaisses et souvent torsadées chez les mâles. Les cornes sont de type ibex (plus de 84% chez les deux sexes), conformément aux résultats de Traoré et al. (Reference Traoré, Hamidou, Adama, Luis, Ivan, Isabel, Sangaré, Bouchel, Jean Paul, Dominique, Sawadogo and Goyache2008) chez les chèvres locales du Burkina en général et particulièrement sur la chèvre du sahel, et de Dumas (Reference Dumas1980) qui précise pour la chèvre du sahel tchadienne «les cornes sont assez longues chez le mâle, elles sont dirigées en arrière et en haut en divergeant». Par contre ces résultats diffèrent de ceux rapportés par Lauvergne et al. (Reference Lauvergne, Bourzat, Souvenir, Zeuh and Ngo Tama1993) au Nord Cameroun (11,7% type ibex).
La présence de la barbiche a été identifiée chez les animaux des deux sexes (mâles 55% et femelles 41%). La présence/absence de la barbiche est le seul paramètre qualitatif dont la différence entre sexe a été statistiquement significative. Ce dimorphisme sexuel quant au port de la barbe a été rapporté par plusieurs auteurs avec des proportions variables selon le sexe: Wilson (Reference Wilson1991) sur la chèvre West African Long-Legged (chèvre du sahel), Traoré et al. (Reference Traoré, Tamboura, Kaboré, Yaméogo, Bayala and Zaré2006) sur la chèvre locale mossi du Burkina Faso, Yakubu, Raji et Omeje (Reference Yakubu, Raji and Omeje2010) sur les races caprines locales du Nigéria. Traoré et al. (Reference Traoré, Hamidou, Adama, Luis, Ivan, Isabel, Sangaré, Bouchel, Jean Paul, Dominique, Sawadogo and Goyache2008) ont constaté un taux d'absence de barbe de plus de 75% sur les chèvres locales du Burkina. La présence de la barbe chez les deux sexes avec précellence chez le mâle tient d'une part, du fait que la barbe constitue un caractère sexuel secondaire chez le mâle et d'autre part, le gène codant pour la barbe existe à l'état récessif chez les femelles et dominant chez les mâles (Yakubu, Raji et Omeje, Reference Yakubu, Raji and Omeje2010).
Comme autre appendice, la présence de pendeloques a été observée sur plus de 50% chez les deux sexes. Ces résultats se rapprochent de ceux de Traoré et al. (Reference Traoré, Hamidou, Adama, Luis, Ivan, Isabel, Sangaré, Bouchel, Jean Paul, Dominique, Sawadogo and Goyache2008) qui rapportent que bien que la fréquence du port de pendeloques dans la population caprine locale soit relativement faible (30%), la chèvre du sahel spécifiquement recouvre plus de 75%. Cependant, des fréquences inférieures ont été rapportées par Yakubu, Raji et Omeje (Reference Yakubu, Raji and Omeje2010) au Nigéria sur les chèvres de races West Africain Dwarf Goat (mâle 31,64% et femelle 5,78%) et Red Sokoto Goat (mâle 1,69% et femelle 3,78%). Selon Ricordeau et Bouillon (Reference Ricordeau and Bouillon1967), dans l'espèce caprine, les pendeloques sont présentes avec une fréquence variable dans les différentes races et il est bien difficile de dire si c'est la présence ou l'absence de pendeloques qui constitue le caractère normal ou sauvage.
Le pelage est presque entièrement court à ras, les animaux à poils mi-longs sont rarement rencontrés (2%) et cela conformément aux races caprines locales de la sous région, notamment la chèvre rousse (red sokoto goat), la chèvre Djallonké (WAD goat), la chèvre du sahel (West African Long-Legged) et la chèvre mossi (Wilson, Reference Wilson1991; Meyer, Reference Meyer2001; Traoré et al., Reference Traoré, Tamboura, Kaboré, Yaméogo, Bayala and Zaré2006; Traoré et al., Reference Traoré, Hamidou, Adama, Luis, Ivan, Isabel, Sangaré, Bouchel, Jean Paul, Dominique, Sawadogo and Goyache2008; Yakubu, Raji et Omeje, Reference Yakubu, Raji and Omeje2010).
La robe est multicolorée, tous les patrons pigmentaires identifiés chez l'espèce caprine ont été observés avec dominance chez les deux sexes des patrons Phaeomélanique (Brown), Eumélanique chocolat et Eumélanique noire (30,3%, 28,5% et 27,1% respectivement). Cependant, dans la plupart des cas (plus de 68%) la robe est panachée et le pourcentage de dépigmentation est non négligeable (11,5%). Ces résultats sont comparables à ceux de Lauvergne et al. (Reference Lauvergne, Bourzat, Souvenir, Zeuh and Ngo Tama1993) au Nord Cameroun (tous les patrons observés avec prédominance des patrons phaeomélanique, sauvage et eumélanique respectivement) et de Traoré et al. (Reference Traoré, Hamidou, Adama, Luis, Ivan, Isabel, Sangaré, Bouchel, Jean Paul, Dominique, Sawadogo and Goyache2008) chez la chèvre du sahel. En outre, ces résultats se distinguent de ceux de Yakubu, Raji et Omeje (Reference Yakubu, Raji and Omeje2010) sur les races WAD et Red Sokoto goats au Nigéria avec prédominance respective de eumélanique noir et phaeomélanique (red). L'importance des panachures d'une part et le pourcentage non négligeable de dépigmentation d'autre part peuvent trouver une explication dans le cadre de la thermorégulation. En effet selon Acharya et al. (Reference Acharya, Gupta, Sehgal and Singh1995), les caprins à poils courts sont peu résistants aux radiations solaires et consomment moins que ceux à poils longs. De même, les caprins noirs sont moins résistants que les rouges, à leur tour moins résistants que les blancs. L'émergence de la panachure et de dépigmentation sur les autres patrons, autrement dit la présence des taches blanches d'une part et le mélange des poils blancs aux poils rouges et noirs d'autre part, rehaussera probablement la résistance aux radiations solaires et peut donc traduire une certaine adaptation au milieu.
L'ACM indique que tous les paramètres qualitatifs étudiés sont régulièrement répartis dans toutes les régions de la zone d'étude. Cependant, elle fait ressortir que les caprins dans les trois régions se distinguent par le port des oreilles (majoritairement tombant dans la région de Tillabéry, pédonculé à Niamey et pédonculé et dressé dans la région de Tahoua), la présence de la barbe et des pendeloques (majoritairement présents dans la région de Tillabéry et absents dans la région de Tahoua et Niamey) et le patron pigmentaire (majoritairement eumélanique noir à Tahoua, eumélanique chocolat à Niamey et phaeomélanique à Tillabéry). Cette hétérogénéité selon les régions reflète l'originalité de la race caractérisée par une diversité de forme dans sa zone d'expansion (Wilson, Reference Wilson1991; Meyer, Reference Meyer2001).
Conclusion
Ces résultats font ressortir une hétérogénéité sur le plan phénotypique qualitatif des caprins dans la zone d'étude. En effet, selon les régions, la répartition des paramètres visuels étudiés a été statistiquement différente à l'exception du type des cornes. Visiblement la chèvre dans la zone d'étude est multicolorée. La fréquence des panachures est élevée (plus de 68%) d'où une proportion importante des robes pies (pie rouge dans la région de Tillabéry et la CUN et pie noire dans la région de Tahoua). Les animaux des deux sexes portent des cornes (majoritairement de type ibex), une proportion importante tous sexes confondus porte la barbiche (proportion statistiquement plus élevée chez le mâle) et des pendeloques. Le pelage est court à ras et les oreilles sont majoritairement tombantes. L'analyse des indices de primarité indique que cette population présente globalement, les caractéristiques d'une population primaire. Cependant, l'analyse multivariée fait ressortir quelques spécificités selon les régions.
Ces résultats doivent être complétés par des données biométriques afin d'affiner l'image phénotypique type de la chèvre du sahel dans la zone d'étude.
Remerciements
Les auteurs remercient le partenaire financier qui est l'Agence Universitaire de la Francophonie (AUF), précisément son Bureau Afrique de l'Ouest et le CNF de Niamey. Ils remercient également le Programme de Productivité Agricole en Afrique de l'Ouest (PPAAO) qui a contribué matériellement et financièrement aux activités sur les caprins du Sahel.