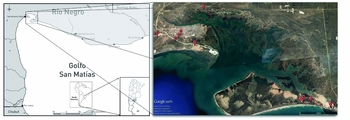
El objetivo de este trabajo es caracterizar el registro ictioarqueológico y discutir las variaciones cronológicas en la explotación de los peces en la localidad arqueológica de Bahía San Antonio (BSA) y su área de influencia, en la costa norte de la provincia de Río Negro, Patagonia Argentina (Figura 1). Esta extensa localidad fue estudiada inicialmente en la década de 1960 por Marcelo Bórmida (Reference Bórmida1964), quien publicó los primeros datos sistemáticos. En la actualidad esta área se encuentra incluida dentro de los proyectos de investigación dirigidos por la Dra. Florencia Borella y el Dr. Cristian Favier Dubois. En el marco de estos proyectos, se publicaron diferentes trabajos que mencionan parcialmente el registro arqueológico de la misma (Favier Dubois et al. Reference Favier Dubois, Borella, Manzi, Cardillo, Lanzelotti, Scartascini, Váz, Cruz and Caracotche2008, Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009; Favier Dubois y Scartascini Reference Favier Dubois and Scartascini2012). Sin embargo, aún no se han publicado resultados específicos acerca de los estudios del abundante registro ictioarqueológico allí recuperado.
Localización del área e imagen de la localidad arqueológica de Bahía San Antonio. Referencias: (A) Playón Cementerio; (B) No K; (C) Playón de las Pesas; (D) Marisma Norte; (E) Duna detrás del Vivero; (F) Camino ALPAT; (G) Saco Viejo 1; (H) Saco Viejo 2; (I) Saco Viejo Histórico; (J) Saco Viejo Caserío; (K) FSM Sondeo 2; (L) FSM Sondeo 12; (M) FSM Sondeo 6.

Con base en la información arqueológica, paleodietaria y cronológica disponible para la costa norte del Golfo San Matías (en adelante GSM), se planteó un modelo acerca de la intensidad en el uso de los recursos marinos (Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009; Favier Dubois y Scartascini Reference Favier Dubois, Zangrando, Barberena, Gil, Neme, Giardina, Luna, Otaola, Paulides, Salgan and Tívoli2012). Este modelo propone tres etapas principales. En la primera etapa, entre 6.000 y 2.200 años aP, los recursos marinos habrían sido intensamente consumidos. Durante este periodo el registro zooarqueológico evidencia el predominio de restos faunísticos marinos (principalmente peces) asociados a tecnologías para la explotación específica de estos recursos (e.g., pesas líticas; Borella et al. Reference Borella, Scartascini, Marani, Borella and Cardillo2011; Cardillo et al. Reference Cardillo, Scartascini and Zangrando2015; Scartascini et al. Reference Scartascini, Charo, Volpedo, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009; Scartascini y Cardillo Reference Scartascini, Cardillo, Palacios, Vázquez, Palacios and Cabanillas2009). Posteriormente, entre 1.700 y 400 años aP la señal isotópica indica un cambio hacia paleodietas mixtas a continentales (Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009). Durante este periodo el registro zooarqueológico muestra una mayor presencia de recursos faunísticos terrestres, algunos de alto ranking tales como el guanaco y los rheidos (Marani Reference Marani2016; Marani y Borella Reference Marani and Borella2012), a la vez que se observa la presencia de otros recursos marinos de menor ranking, como por ejemplo peces de menor tamaño (Borella et al. Reference Borella, Scartascini, Marani, Borella and Cardillo2011; Borella y Cruz Reference Borella and Cruz2012; Scartascini Reference Scartascini2012, Reference Scartascini2014). A partir de esto se propuso como hipótesis para estos momentos un proceso de diversificación en la dieta (Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009:994) que podría haber tenido un alcance geográfico amplio, de escala regional o macroregional (Barrientos y Pérez Reference Barrientos, Pérez, Civalero, Fernández and Guráieb2004:189; Martínez et al. Reference Martínez, Valero, Flensborg, Carden, Stoessel, Alcaraz and Vaz2017). Finalmente, el modelo plantea que con la llegada de los europeos y la incorporación del caballo la costa habría sido menos utilizada y los recursos marinos prácticamente abandonados, generando el panorama descripto por las crónicas históricas (Viedma Reference Viedma and de Angelis1972 [1783]).
En este contexto, este trabajo se propone evaluar la importancia de los recursos ícticos en la Bahía San Antonio y su área de influencia, caracterizando las variaciones cronológicas y espaciales del registro ictioarqueológico y sus implicaciones en torno de la subsistencia humana en el área. Finalmente, esto permitirá discutir las tendencias locales en el marco del modelo de subsistencia planteado para la región y las tendencias en el consumo de recursos ícticos a nivel regional y macroregional.
Área de Estudio
La Bahía San Antonio es una extensa y profunda bahía que constituye el principal entrante marino de la provincia de Río Negro, en la Patagonia Argentina (Figura 1). Posee una amplia planicie de marea flanqueada por numerosos cordones litorales y espigas del Holoceno y Pleistoceno que forman terrazas marinas de diferentes alturas (Angulo et al. Reference Angulo, Fidalgo, Peral and Schnack1978; Kokot y Favier Dubois Reference Kokot and Dubois2016). Este entrante marino se encuentra parcialmente cerrado por dos grandes espigas que crecen en direcciones opuestas, lo que genera un ambiente litoral protegido, ampliamente utilizado por diversas especies marinas (peces, aves y mamíferos) como área de descanso y reproducción (Perier Reference Perier1994). Según Perier (Reference Perier1994) la fauna íctica de la Bahía San Antonio está compuesta al menos por treinta especies de peces, agrupadas en diez órdenes. Esta importante variabilidad y riqueza se debe entre otras cuestiones a la disponibilidad de macrohabitats en los diferentes espacios costeros de la bahía y su área de influencia. Asimismo, las condiciones marinas del Golfo San Matías permiten la presencia de especies típicas de aguas templado-cálidas (Distrito Bonaerense) y especies de aguas templado-frías (Distrito Patagónico-Magallánico). Entre las primeras se destacan Mugil platanus, Sparus pagrus, Diplodus argenteus y Acanthistius patachonicus, mientras que las especies típicas del Distrito Patagónico son Eleginops maclovinus, Callorhynchus callorhynchus y Congiopodus peruvianus (Perier Reference Perier1994).
Sobre una de las espigas de la bahía se encuentra la ciudad de San Antonio Oeste y sobre la otra el puerto de San Antonio Este. La localidad y el puerto se encuentran en un ambiente semidesértico con regímenes de lluvia por debajo de los 300 mm anuales en el que se desarrolla la región fitogeográfica del monte, con dominio de la estepa arbustiva (Cabrera y Wilink Reference Cabrera and Willink1980). La temperatura media anual es de 15 °C, con máximas cercanas a los 29 °C y mínimas de 3 °C. Los vientos predominantes soplan del oeste, noroeste y sudoeste, siendo estos dos últimos los de mayor intensidad, de hasta 123 y 135 km/h (Capítoli Reference Capítoli1973). Las mareas son semidiurnas y tienen un régimen macromareal, con amplitudes medias de 6,38 m y máximas de 9,22 m durante las mareas de sicigias en el puerto de San Antonio Este (Servicio de Hidrografía Naval 2009).
En este sector litoral se localizaron un gran número de loci arqueológicos, tanto en ambientes propiamente costeros como en espacios continentales inmediatos. El registro arqueológico es muy variado e incluye concentraciones de materiales en superficie y sitios concheros con variada fauna marina y terrestre (Borella et al. Reference Borella, Scartascini, Marani, Borella and Cardillo2011; Favier Dubois et al. Reference Favier Dubois, Borella, Manzi, Cardillo, Lanzelotti, Scartascini, Váz, Cruz and Caracotche2008). La cronología actual indica ocupaciones humanas entre ca. 5.000 y 400 años aP (Favier Dubois Reference Favier Dubois, Zangrando, Barberena, Gil, Neme, Giardina, Luna, Otaola, Paulides, Salgan and Tívoli2013; Favier Dubois y Scartascini Reference Favier Dubois and Scartascini2012).
Materiales y Métodos
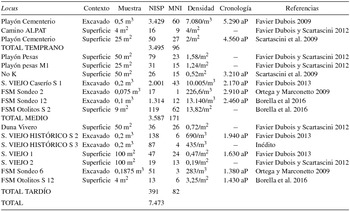
Los materiales ictiofaunísticos analizados en este trabajo provienen tanto de la excavación de concheros como de recolecciones superficiales dirigidas. En el Golfo San Matías los concheros se ubican en dunas de la faja costera y presentan una forma lenticular en estratigrafía que generalmente no supera los 40 cm de espesor (Favier Dubois y Borella Reference Favier Dubois and Borella2007). La recuperación del material faunístico en estos contextos se realizó a partir de sondeos de 0,5 por 0,5 m, 1 por 1 m o 1 por 1,5 m, dependiendo de la extensión de la acumulación de valvas. Las excavaciones se realizaron por niveles artificiales de 5 cm y el sedimento se tamizó en zarandas de malla de 1 mm. En todos los casos se recuperaron muestras de fondos de zaranda para ser analizados en el laboratorio. Los sondeos realizados en la localidad BSA corresponden a pequeñas excavaciones cuyo volumen en ningún caso supera los 0,5 m3 (Tabla 1). De esta manera se pudieron obtener muestras estratigráficas en distintos áreas y ambientes de este vasto sector litoral (e.g., costa de mar abierto, costa protegida dentro de la bahía, sectores de cotas altas y bajas —mayores y menores a 15 m snm— etc.).
NISP, MNI, Contexto, Densidad y Cronología de las Muestras Analizadas por Bloque Cronológico.

Para los contextos superficiales se adoptó la metodología utilizada en trabajos previos (e.g., Borella et al. Reference Borella, Scartascini, Marani, Borella and Cardillo2011; Scartascini Reference Scartascini2012; Scartascini et al. Reference Scartascini, Charo, Volpedo, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009). Se plantearon cuadrículas de recolección de 2 por 2 m en sectores con alta densidad y cuadrículas de mayor tamaño en sectores donde esta era baja.
La identificación anatómica y taxonómica de las especies ícticas recuperadas se realizó a través del método de anatomía comparada (Wheeler y Jones Reference Wheeler and Jones1989), para lo cual se utilizó la colección de referencia propia obtenida en la región, depositada en el laboratorio del Instituto de Investigaciones en Diversidad Cultural y Procesos de Cambio (IIDyPCa) en Río Negro. La determinación buscó alcanzar el nivel taxonómico más discriminante posible —es decir, el de especie— aunque en algunos casos solo se alcanzaron determinaciones a nivel de género o familia. La cuantificación de los conjuntos se llevó a cabo mediante el empleo de los índices que son utilizados comúnmente en zooarqueología (NISP, MNI, MNE, MAU y sus valores estandarizados; Mengoni Goñalons Reference Mengoni Goñalons1999). Para evaluar el grado de fragmentación ósea se utilizaron los lineamientos propuestos por Zohar et al. (Reference Zohar, Dayan, Galilli and Spanier2001). Para analizar aspectos vinculados al consumo se evaluaron distintas variables, como la presencia de huellas de corte (Willis y Boehm Reference Willis and Boehm2014), alteraciones térmicas (Greenspan Reference Greenspan1998) y evidencias de digestión (hoyuelos, deformaciones en las vértebras, redondeamientos y presencias de residuos adheridos en la superficie; Butler y Schroeder Reference Butler and Schroeder1998). Finalmente, el tratamiento de los datos se realizó a partir de estadística univariada y del empleo de test de hipótesis (Grayson Reference Grayson1984; Reitz y Wing Reference Reitz and Wing1999). Para caracterizar la diversidad taxonómica se utilizó el índice de dominancia de Simpson, ya que además de ser un índice robusto es de fácil interpretación debido a que varía entre 0 (baja dominancia) y 1 (alta dominancia; Magurran Reference Magurran2004). Por último, para facilitar la presentación y comparación de los datos, las muestras analizadas en este trabajo son agrupadas en tres bloques cronológicos. El bloque temprano incluye los conjuntos fechados entre ca. 6.000 y 4.000 años aP, el bloque medio corresponde a las muestras fechadas en torno a los 3.000 años aP y el bloque tardío agrupa los restos entre ca. 2.000 y 800 años aP (Tabla 1).
Resultados
En las 17 muestras analizadas se recuperó un total de 7.473 especímenes atribuibles a la categoría taxonómica “peces”; 7.032 corresponden a muestra de excavación y 436 a restos de superficie. Del conjunto total, 4.008 (53,7%) fueron identificados a nivel taxonómico y anatómico y 3.465 (46,3%) resultaron indeterminados. Esta categoría incluye los restos únicamente identificados a nivel anatómico y los fragmentos indiferenciados.
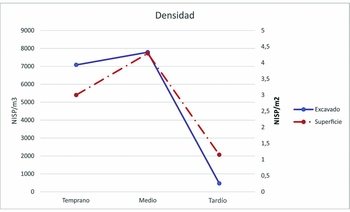
Al subdividir la muestra por bloques cronológicos se observan algunas tendencias relevantes. En primera instancia se perciben variaciones cronológicas significativas en la abundancia del registro ictioarqueológico, tanto a nivel de NISP como de MNI (Tabla 1). La muestra correspondiente al bloque temprano alcanza los 3.495 especímenes y un MNI de 96 ejemplares, mientras que el bloque medio posee un NISP de 3.587 y un MNI de 171; finalmente, el bloque tardío arroja un NISP de 391 y un MNI de 82 individuos. Estos datos muestran un abrupto descenso en la abundancia de peces en los conjuntos tardíos. Sin embargo, como puede observarse en la Tabla 1, las muestras ictiofaunísticas provienen de un número desigual de conjuntos para cada bloque cronológico. Atendiendo a esto, se realizó la comparación a partir de una medida estandarizada como la densidad. Se determinó la densidad media de especímenes por metro cubico (m3) para las muestras recuperadas en sondeos y la densidad de restos por metro cuadrado (m2) para las recogidas en superficie. Como se observa en la Figura 2, en ambos casos se registra una tendencia decreciente muy marcada en la densidad media de restos de peces hacia los momentos más tardíos, que se expresa con valores altos de densidad media para los bloques temprano y medio y una fuerte reducción en la densidad de restos en los conjuntos tardíos (después de 2.000 aP).
Valores de abundancia por bloque cronológico. Los valores se expresan en densidad, NISP/m3 para muestras de excavación (línea continua) y NISP/m2 para conjuntos de superficie (línea punteada).

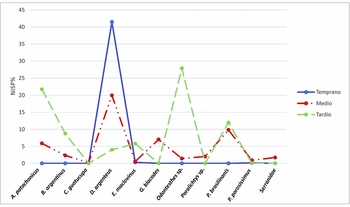
Respecto de la diversidad y abundancia taxonómica, como se observa en la Figura 3, la variabilidad de especies identificadas en sondeos es relativamente baja. De las más de 30 especies disponibles en la bahía solo se identificaron ocho especies, dos géneros y una familiaFootnote 1 , y de estas solo cinco especies se encuentran en altas proporciones. La especie más representada es el sargo (Diplodus argenteus) y la siguen la familia de los pejerreyes (Odontesthes sp.) y el mero (Acanthistius patachonicus). Con excepción de los pejerreyes y el abadejo (Genypterus blacodes), todas las especies corresponden al ensamble de “peces de los arrecifes de los golfos nordpatagónicos” (Irigoyen y Galván Reference Irigoyen and Galván2010:66–72).
Abundancia relativa (NISP%) de especies ícticas recuperadas en sitios excavados por bloque cronológico.

El análisis de los conjuntos provenientes de excavación muestra que la representación de las distintas especies ícticas es desigual entre los bloques cronológicos y no parece ser dependiente del tamaño de las muestras en cada bloque. Como se observa en la Figura 3, en el bloque temprano el sargo domina casi exclusivamente la totalidad de la muestra, pero su influencia se reduce en el bloque medio y casi desaparece en bloque tardío. En cambio, para los últimos 3.000 años aP se incrementa la señal de otras especies como los pejerreyes, el mero, el torito de los canales (Bovichthys argentinus) y el chanchito (Pinguipes brasilianus).
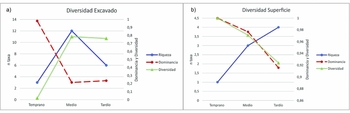
En suma, los conjuntos recuperados en sondeos muestran un marcado incremento de la cantidad de especies explotadas en la localidad durante el bloque medio. Durante este periodo se observan hasta 12 clases representadas, lo que contrasta con las tres y seis clases representadas en el bloque temprano y tardío, respectivamente (Figura 4a). Si bien no se observa una tendencia lineal, el patrón general muestra un aumento en la diversidad de especies desde el bloque temprano hasta el tardío (Figura 4a). Este proceso se ve acompañado por la reducción en los valores de dominancia estimados para los conjuntos después de 3.000 años aP (valores cercanos a 0), lo que implica muestras más heterogéneas, es decir, conjuntos en donde ninguna especie predomina por sobre las demás (Figura 4a).
Estimadores de la diversidad por bloque cronológico, riqueza (número de taxa), dominancia e índice de diversidad de Simpson: (a) conjuntos excavados; (b) conjuntos superficiales.

Las muestras provenientes de conjuntos superficiales (n = 436) corresponden exclusivamente a otolitos de distintas especies ícticas. La identificación taxonómica de los otolitos mostró el predominio de Micropogonias furnieri (corvina rubia), con una frecuencia de 428 otolitos (98,16%) y un MNI estimado en 232 ejemplares. Cuatro otolitos (MNI = 3) corresponden a Umbrina canosai (pargo), otra especie de scienido de aspecto muy similar a Micropogonias furnieri. Dos otolitos corresponden a Genidens barbus (bagre de mar; MNI = 2) y otros dos especímenes corresponden a Urophycis cirrata (brótola; MNI = 2). De igual forma que en los conjuntos de excavación, también en este caso se observan variaciones cronológicas en cuanto a la diversidad de especies representadas. Si bien en todos los bloques se observa un alto predominio de corvina rubia, en el bloque temprano además de esta especie —que está representada con el 98,5% del NISP— solo se recuperó un otolito de pargo (1,5% del NISP). En el bloque medio, por su parte, la corvina rubia representa el 99,2% del NISP pero se agregan dos otolitos, uno correspondiente a pargo y otro a brótola (cada uno representando 0,4% del NISP). Finalmente, en el bloque tardío la diversidad aumenta a cuatro especies representadas: corvina rubia (95,6% del NISP), pargo y bagre de mar (1,7% del NISP en ambos casos) y brótola (0,86% del NISP). Si bien es una tendencia leve, se puede observar un patrón creciente en el número de especies representadas desde el bloque temprano al tardío, que se expresa tanto en el número de taxa como en la dominancia (Figura 4b).
Es posible, sin embargo, que la evaluación en cuanto a la diversidad de especies en estos conjuntos se encuentre fuertemente sesgada debido a que provienen de sitios superficiales, por lo que es necesario ser precavidos en la ponderación de estas tendencias en el marco zooarqueológico general. Estas tendencias serán incluidas y evaluadas adecuadamente en la discusión.
Estado de los Conjuntos Ictioarqueológicos
La incorporación de muestras provenientes tanto de sondeos como de sitios superficiales implica historias tafonómicas y formacionales distintas, lo que sin duda es un factor central para interpretar los resultados de los análisis faunísticos. En función de esto, se buscará evaluar si existen diferencias significativas en la integridad, el origen de los conjuntos y el grado de fragmentación y preservación ósea entre las muestras obtenidas en uno y otro contexto. Asimismo, se buscará determinar las características tafonómicas principales en los distintos bloques cronológicos, y de esta forma evaluar si existen diferencias en el estado de los conjuntos que puedan influenciar la interpretación de las tendencias observadas. La expectativa inicial es que las muestras más antiguas se encuentren más impactadas por los diferentes agentes y procesos tafonómicos (e.g., procesos pedológicos y bioturbación) que las más recientes, lo que generaría diferencias en la representatividad e integridad entre bloques. De igual forma, sería esperable que las muestras provenientes de contextos superficiales tengan una menor integridad en cuanto a composición y diversidad en comparación a las muestras recuperadas en excavación.
Contextos Excavados
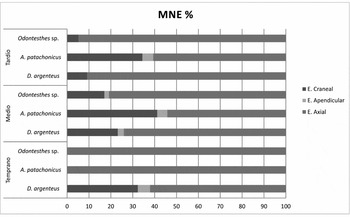
En cuanto a la representación de partes esqueletales, los resultados observados en las tres especies más frecuentes (sargo, mero y pejerreyes) muestran que en la mayoría de los casos todas las regiones anatómicas se encuentran representadas. Sin embargo, los análisis muestran el predominio mayoritario de elementos pertenecientes al esqueleto axial (i.e., las vértebras). Esto es concordante con otros conjuntos ictioarqueológicos recuperados en el área de estudio (Scartascini Reference Scartascini2012) y en otras áreas costeras de Patagonia (Zangrando Reference Zangrando2009). Por su morfología y densidad los cuerpos vertebrales suelen ser los elementos con la tasa de supervivencia más alta en los conjuntos ictioarqueológicos (Butler y Schroeder Reference Butler and Schroeder1998; Falabella et al. Reference Falabella, Vargas and Meléndez1994). Al explorar la representación de partes esqueletales a partir del eje temporal no se observan grandes diferencias entre los bloques cronológicos (Figura 5). La mayor diferencia se expresa en los perfiles anatómicos del mero y de los pejerreyes, que en el bloque temprano se encuentran representados únicamente por vértebras. Esto podría implicar la entrada al sitio solo de las partes de mayor rendimiento energético, o bien que exista un sesgo de preservación en favor de los elementos vertebrales. Sin embargo, estos posibles sesgos en la representación de partes no parecen obedecer a un condicionante temporal, ya que también en el bloque tardío se observa un predomino casi absoluto de elementos vertebrales de pejerreyes y sargos, a pesar de que todas las regiones de estas especies se encuentran bien representadas en los conjuntos del bloque medio (Figura 5).
Frecuencia relativa (MNE%) de las regiones esqueletales de las principales especies representadas.

La consideración respecto del origen de los conjuntos se establece a partir de la presencia de marcas o huellas antrópicas en los elementos analizados. De la totalidad de elementos ictioarqueológicos recuperados en excavación, ninguno presentó huellas atribuibles a corte. Si bien esto puede resultar llamativo, esta clase de huellas es significativamente escasa en las muestras ictioarqueológicas de todo el mundo (Willis y Boehm Reference Willis and Boehm2014). Sin embargo, se recuperaron 347 (4,6%) ejemplares con evidencias de quemado, lo que podría vincularse a procesos de cocción, sobre todo teniendo en cuenta que se trata mayoritariamente de vértebras, es decir la parte más productiva de los peces. Asimismo, solo se recuperaron 16 (0,2%) restos con evidencias de deformación platica, lo que podría indicar bajas probabilidades de que los peces hayan ingresado al sitio en los contenidos estomacales de otros animales ictiófagos. Finalmente, solo 18 (0,28%) elementos presentaron pérdida de color por exposición solar y 125 (1,6%) poseían adherencias de carbonatos en su superficie, lo que sugeriría cierta estabilidad en los depósitos que contenían estos conjuntos.
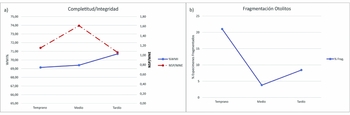
Para evaluar la fragmentación de los conjuntos, se utilizó el índice de completitud ósea (%WMI). Temporalmente se observó que los materiales más tardíos presentan en promedio un porcentaje de completitud más alto que los tempranos, aunque estas diferencias son de unos pocos puntos porcentuales y en todos los casos los huesos presentan un buen estado de preservación, con valores cercanos al 70% de completitud (Figura 6a).
(a) Índice de completitud ósea (%WMI) y fragmentación (NSP/MNE) para conjuntos excavados por bloque cronológico; (b) Porcentaje de otolitos fragmentados por bloque cronológico.

La evaluación respecto de la integridad de los conjuntos (indicada por la proporción entre NISP y MNE) tampoco muestra variaciones significativas entre los bloques cronológicos (Figura 6a). Se observa una tendencia relativamente homogénea, con valores máximos (1,3) en el bloque medio y mínimos (1,0) en el tardío. En suma, estos indicadores estarían mostrado cierta homogeneidad en las historias tafonómicas de las muestras provenientes de excavación, al margen de su cronología.
Contextos de Superficie
A diferencia de las muestras recuperadas en excavación, los conjuntos superficiales se encuentran representados únicamente por elementos craneales, específicamente solo otolitos de distintas especies ícticas. La morfología redondeada y su composición (carbonato de calcio) permitieron que estas estructuras perduraran aún en contextos de alta exposición. Con excepción del quemado presente en ocho otolitos (1,8% del total de 436 especímenes), ninguna marca fue observada en estas estructuras. Los análisis muestran un buen estado de preservación de la muestra en general. Se recuperaron 349 (80%) ejemplares enteros, 45 (10,3%) levemente fragmentados (es decir, que posibilitaron su análisis métrico) y 42 (9,7%) fragmentados. Aun así en todos los casos (incluso los fragmentados) se pudo realizar la identificación específica.
De igual forma que en los contextos de excavación, tampoco se observó una variación clara en la fragmentación de los conjuntos superficiales. Es cierto que el porcentaje de fragmentación del bloque temprano es marcadamente superior comparado con el de los otros dos bloques (Figura 6b), lo que podría en parte sobreestimar la muestra de otolitos para el bloque temprano. Sin embargo, la magnitud de las diferencias en la densidad media de otolitos por m2 es tal que no puede ser únicamente explicada por un aumento en el porcentaje de restos fragmentados. Incluso al excluir los restos fragmentados del análisis y solo comparar la densidad media de otolitos enteros, esta tendencia cronológica decreciente se mantiene (Figura 2). En definitiva, se observó que la muestra de superficie se encuentra altamente impactada respecto de la representación de partes y posiblemente respecto de la diversidad de especies recuperadas, por lo que es necesario ser cauteloso con la información recuperada en estos contextos. Por otra parte, la fragmentación evidenciada en los otolitos no parece ser un factor suficiente para explicar las significativas variaciones en la frecuencia entre bloques cronológicos.
Discusión
Los resultados alcanzados en este trabajo muestran que los peces fueron un recurso altamente consumido por las poblaciones que ocuparon el área de la Bahía San Antonio desde por los menos 5.000 años aP. La intensa señal en el consumo de estos recursos durante buena parte del Holoceno medio y tardío se corresponde con los resultados alcanzados en otras localidades de la costa del GSM (Favier Dubois y Scartascini Reference Favier Dubois and Scartascini2012; Scartascini Reference Scartascini2012). Hasta el momento en ningún otro punto de la extensa costa atlántica Patagónica se observó una actividad pesquera tan sistemática y sostenida (espacial y temporalmente) como la documentada en la costa norte del GSM (Scartascini Reference Scartascini2017), lo que necesariamente invita a explorar más profundamente este particular registro.
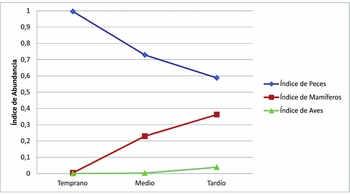
Los datos analizados para la localidad arqueológica Bahía San Antonio muestran que este registro presenta variaciones cronológicas significativas en la intensidad y en el modo en el que las actividades pesqueras fueron desarrolladas. A nivel general los análisis muestran una marcada reducción en la frecuencia de restos de peces hacia momentos tardíos, tanto en términos de NISP como de MNI. Esto implicaría una reducción en la importancia de los peces en la localidad, lo que resulta coherente con las expectativas del modelo arqueofaunístico y paleodietario regional (Borella et al. Reference Borella, Scartascini, Marani, Borella and Cardillo2011; Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009). Esta reducción en la importancia de los peces se ve además acompañada por el incremento de otras arqueofaunas como son los mamíferos, principalmente guanacos y lobos marinos (Figura 7; Borella et al. Reference Borella, Scartascini, Marani, Borella and Cardillo2011; Marani Reference Marani2016).
Índices de abundancia correspondientes a peces, mamíferos y aves. Los valores de NISP de mamíferos y aves fueron consultados en Marani (Reference Marani2016) y en Scartascini (Reference Scartascini2014).

Las tendencias cronológicas en el bloque temprano indican valores altos en la frecuencia de restos de peces recuperados en todos los conjuntos analizados, tanto en términos de NISP como de MNI (Tabla 1). Sin embargo, llama la atención la baja diversidad de especies recuperadas, tanto en conjuntos de superficie como en muestras provenientes de excavación. Esto puede estar en parte influenciado por el sesgo de preservación que seguramente afecta la muestra superficial; de hecho, conjuntos de este tipo presentaron casi exclusivamente otolitos de corvina rubia (y un otolito de pargo blanco) y ningún otro tipo de evidencia arqueofaunística pudo ser recuperada. No obstante, también se observa una relativa baja riqueza taxonómica y una alta dominancia en los sondeos estudiados para esta cronología. En las dos cuadrículas excavadas del sitio de Playón Cementerio se observó una alta dominancia de sargo y muy baja proporción de otras especies (Figura 3).
Si bien la muestra excavada es aún pequeña, nos preguntamos entonces si este patrón con una alta densidad de restos de peces y una baja diversidad específica no responde a un modo o estrategia de pesca particular. Si consideramos los perfiles de las presas (en cuanto a la talla y a la frecuencia) y la presencia de pesas líticas en esos mismos contextos arqueológicos (Scartascini y Cardillo Reference Scartascini, Cardillo, Palacios, Vázquez, Palacios and Cabanillas2009), se podría pensar que para momentos tempranos las actividades de pesca habrían seguido una estrategia de captura masiva. Este método se podría haber dado a partir del uso de redes de pesca, lo que además se ajusta muy bien con los resultados tecnológicos y funcionales obtenidos en las pesas líticas del área (Cardillo et al. Reference Cardillo, Scartascini and Zangrando2015) y con los escenarios ambientales disponibles en esa cronología (Favier Dubois y Scartascini Reference Favier Dubois and Scartascini2012; Kokot y Favier Dubois Reference Kokot and Dubois2016). Los datos actuales muestran además que las dos especies más consumidas en este período, la corvina rubia y el sargo, presentan un patrón estacional de agregación en grandes cardúmenes costeros durante los meses cálidos (Scartascini y Volpedo Reference Scartascini and Volpedo2013). Los análisis de estacionalidad a partir del conteo de bandas hialinas y opacas en otolitos de corvina rubia mostraron que la explotación de este recurso ocurrió entre los meses de noviembre y enero (Scartascini et al. Reference Scartascini, Saez and Volpedo2015). Esta tendencia se registró para conjuntos que van desde el Holoceno medio hasta el Holoceno tardío, lo que además se corresponde con el patrón ecológico de las especies en la actualidad (Cousseau y Perrota Reference Cousseau and Perrota2004). En el caso del sargo, a pesar de que no se realizaron análisis de estacionalidad, la información actual en la Bahía San Antonio muestra que la mayor concentración de ejemplares adultos de esta especie se da desde fines del verano hasta inicios del otoño (Perier Reference Perier1994 y observación personal). En definitiva, entonces, el registro ictioarqueológico, la presencia de pesas líticas y la disponibilidad de ambientes adecuados sugieren que durante el bloque cronológico temprano la explotación de peces se habría dado siguiendo una estrategia de pesca masiva, posiblemente a partir del uso de redes de pesca, durante los meses cálidos del año y aprovechando el agrupamiento en aguas costeras de ciertas especies. Un patrón similar fue descripto para otras localidades de la costa norte del GSM (Bajo de la Quinta y Bahía Creek), en donde los escenarios costeros permitieron el desarrollo de estrategias de pesca masiva durante el Holoceno medio (Favier Dubois y Scartascini Reference Favier Dubois and Scartascini2012). En resumen, las muestras disponibles actualmente sugieren que la pesca fue el modo de subsistencia principal durante el Holoceno medio. El gran número de restos de peces recuperados se condice con las tendencias paleodietarias regionales (Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009) y contrasta con la baja representación de otras arqueofaunas marinas y terrestres en los sitios (Figura 7).
El registro ictioarqueológico recuperado para el bloque cronológico medio (entre 3.100 y 2.000 aP) muestra diferencias con lo observado previamente. En primera instancia, la abundancia de restos de peces se sostiene, e incluso aumenta levemente, respecto del bloque temprano, lo que muestra un alto consumo de peces en este período. Al mismo tiempo, aumenta la diversidad de especies explotadas. Se observa un marcado incremento de especies correspondiente al ensamble de peces de los arrecifes patagónicos, es decir, especies que habitan en las áreas rocosas de la plataforma litoral (e.g., lenguado, torito de los canales, chanchito, mero, etc.; Irigoyen y Galván Reference Irigoyen and Galván2010). De igual forma que la señal isotópica de la paleodietas humanas (Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009), las muestras faunísticas recuperadas en este bloque cronológico presentan una mayor variabilidad en cuanto a la explotación de recursos faunísticos general (Borella et al. Reference Borella, Scartascini, Marani, Borella and Cardillo2011) y de peces en particular. Esto no permite establecer parámetros promedios para este período, en donde se observa un elevado consumo de peces provenientes de distintos ambientes y sectores costeros y un paulatino incremento en el consumo de otros recursos marinos y continentales (Figura 7).
Finalmente, el registro pesquero recuperado para los momentos tardíos (entre 2.000 y 800 aP) muestra una notable reducción tanto en el NISP como en el MNI de peces acompañada de un incremento en el uso de otras arqueofaunas (Figura 7). A pesar de que se observa un aumento en la diversidad de especies ícticas explotadas, estas incluyen mayoritariamente especies pequeñas y de bajo rendimiento energético (e.g., torito de los canales, chanchito y los pejerreyes). Los perfiles taxonómicos sugieren que durante este período la explotación de peces estuvo casi exclusivamente dirigida a la plataforma litoral rocosa. Esto llama la atención debido a que implica necesariamente el uso de los ambientes costeros por fuera de la bahía, es decir, costas abiertas con fondos duros. Esto podría implicar el desarrollo de estrategias de pesca más selectivas o individuales en pozones o canales de marea, aprovechando la diferencia entre la baja y la pleamar.
Hay que considerar, sin embargo, que los peces pequeños presentan una serie de ventajas en términos logísticos y de procesamiento para los grupos humanos ya que pueden ser consumidos enteros, sin necesidad de eliminar los huesos o las vísceras, lo que además de una reducción en el tiempo de procesamiento resulta en ventajas nutricionales, aportando mayor cantidad de vitaminas, minerales y calorías (Lindström Reference Lindström and Plew1996). Muchas de las especies recuperadas en los conjuntos tardíos en la actualidad presentan un patrón de conducta estacional y solo se acercan a las áreas costeras en determinados momentos del año. La diversidad de especies explotadas en ese momento permitiría sostener el desarrollo de prácticas pesqueras sostenidas a lo largo del año, siendo que se registraron especies típicas de los meses cálidos, como por ejemplo corvina rubia, sargo y lucerna, y otras típicas de los meses fríos como pejerreyes y róbalos (Perier Reference Perier1994). En suma, para momentos tardíos se observan cambios en la frecuencia y en la diversidad de especies ícticas explotadas, que podrían vincularse con la modificación de estrategias y ambientes de pesca. Esto se tradujo en una notable disminución en la intensidad de la señal pesquera sobre todo para el Holoceno tardío final. Esta tendencia se acompaña además con un marcado incremento en el consumo de otros recursos, principalmente los de origen continental (Borella et al. Reference Borella, Scartascini, Marani, Borella and Cardillo2011; Marani Reference Marani2016), en concordancia con las tendencias paleodietarias detectadas a nivel regional (Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009).
Este proceso parece ser inverso al que se registró en otras áreas costeras cercanas. Es interesante notar que hacia el 2.500 aP, la explotación de peces se volvió un fenómeno más o menos recurrente en toda la costa atlántica patagónica. Es decir, a pesar de que esto no implica una explosión en el uso de estos recursos, el registro ictioarqueológico adquirió una regularidad y continuidad espacial que estaba ausente hasta este momento (Scartascini Reference Scartascini2017). Incluso los datos isotópicos y faunísticos disponibles para la costa norte de la provincia de Chubut indican dietas mixtas (marina y continental) durante buena parte del Holoceno tardío y un incremento en la señal marina para los últimos 1.000 años aP (Gómez Otero Reference Gómez Otero, Morello, Martinic, Prieto and Bahamonde2007). En el área costera del sur de la provincia de Buenos Aires y el interior inmediato también se observó un marcado incremento en el consumo de peces marinos y fluviales hacia el Holoceno tardío final, lo que fue explicado en términos de un proceso de intensificación de alcance regional (Martínez et al. Reference Martínez, Valero, Flensborg, Carden, Stoessel, Alcaraz and Vaz2017).
En conjunto, estas evidencias sugieren cambios significativos en la subsistencia y modo de uso de la costa luego de los 2.500 años aP aproximadamente. Sin embargo, la dirección de estos cambios parece ser opuesta: mientras que en la costa norte del GSM se observa una tendencia hacia la reducción en la importancia de los peces y el resto de los recursos marinos, en las áreas costeras cercanas los datos disponibles parecerían mostrar un incremento en consumo de estos recursos. ¿A qué factores responden estos cambios? Si bien esta es una pregunta difícil (o imposible) de responder, a modo exploratorio podemos evaluar algunas tendencias generales. En primera instancia, en los últimos 2.500 años aP se registraron variaciones significativas tanto a nivel ambiental como cultural en el área y en zonas cercanas. Uno de los factores más destacados son los cambios ambientales en el ecosistema marino. Los datos indican que luego de los 2.600 años aP se produjo un segundo y abrupto descenso en el nivel del mar que generó la línea de costa y morfología costera actual (Schellman y Radtke Reference Schellmann and Radtke2010). Asimismo, se observó una paulatina disminución en la productividad marina acompañada de un descenso en la temperatura promedio del mar desde el Holoceno medio hasta el Holoceno tardío, tanto a nivel regional (Bernasconi y Cusminky Reference Bernasconi and Cusminky2009) como posiblemente local (Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009). Estos nuevos escenarios costeros sin duda generaron cambios importantes en la disponibilidad y en consecuencia en los modos de obtención de los recursos ícticos. Esto ha sido evaluado en distintos puntos de la costa norte del GSM (Favier Dubois y Scartascini Reference Favier Dubois and Scartascini2012; Scartascini Reference Scartascini2012). Estas señales de cambio se intensifican en los últimos 1.500 años aP y pueden ser evaluadas en el marco de un proceso de diversificación en la dieta, como ya fuera propuesto por Favier Dubois y coautores (Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009). Estos autores consideraron un posible escenario de aumento demográfico a nivel regional, lo que podría haber favorecido la saturación de espacios favorables durante el Holoceno tardío final, acompañado además de un posible deterioro de los ambientes continentales cercanos durante el Período Cálido Medieval (Favier Dubois et al. Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009:994; Marcos y Mancini Reference Marcos and Mancini2012). Estos planteos se corresponden con la información cronológica (Favier Dubois Reference Favier Dubois, Zangrando, Barberena, Gil, Neme, Giardina, Luna, Otaola, Paulides, Salgan and Tívoli2013) en la que se observa un pico en la frecuencia de ocupaciones y en los tamaños de loci para el Holoceno tardío final. Además, para este periodo se registró una gran diversidad artefactual que incluye tecnología ósea (Borella y Buc Reference Borella, Buc, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009) y alta frecuencia de restos cerámicos (Borges Váz Reference Borges Váz2013; Favier Dubois et al. Reference Favier Dubois, Borella, Manzi, Cardillo, Lanzelotti, Scartascini, Váz, Cruz and Caracotche2008), a lo que se suma el gran número de artefactos de molienda (Orlando Reference Orlando, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009). Todos estos parecen ser indicadores de movilidad reducida, enmarcados dentro de una estrategia de tipo processor (Bettinger y Baumhoff Reference Bettinger and Baumhoff1982), tal como había sido propuesto por Favier Dubois y colaboradores (Reference Favier Dubois, Borella, Tykot, Salemme, Santiago, Álvarez, Piana, Vázquez and Mansur2009). Considerando los modelos etnográficos que vinculan los periodos de intensificación y reducción de la movilidad con el mayor consumo de recursos acuáticos (Kelly Reference Kelly1995; Binford Reference Binford2001), llama la atención la marcada reducción en el consumo de recursos marinos y el incremento en la “señal” continental. Por supuesto, los modelos no siempre se ajustan a los casos. Al parecer, la costa norte del GSM es singular en muchos aspectos. Esta singularidad abre las puertas a nuevas preguntas y posibilidades que sin duda serán el eje central de nuevos trabajos futuros.
Conclusiones
La evaluación de las representaciones de restos ícticos reveló una tendencia decreciente en la frecuencia de peces desde el Holoceno medio al Holoceno tardío. Conjuntamente, se registró un aumento en la riqueza de especies explotadas que se corresponde además con la inclusión de taxa de menor rendimiento energético. Asimismo, los análisis evidenciaron cambios en la distribución de las especies explotadas; es decir, mientras que para momentos tempranos se registraron actividades pesqueras dirigidas a unas pocas especies (corvina rubia y sargo), para los momentos finales se desarrolló un patrón de captura más equilibrado en el que todas las especies se encuentran representadas en porcentajes similares. En conjunto estos datos sugieren variaciones diacrónicas en las estrategias de pesca desarrolladas por los grupos humanos en el GSM.
Al margen de las diferencias consignadas y sus posibles causas, es importante destacar que la pesca se sostiene como una actividad vinculada a la subsistencia humana desde hace más de 5.000 años. Este aspecto cobra especial relevancia en la actualidad, cuando el 40% de las actividades económicas en el área de la Bahía San Antonio están directa o indirectamente vinculadas con las actividades pesqueras (González et al. Reference González, Narvarte and Verona2010). En resumen, sería posible sostener que la pesca fue y es una actividad central en la Bahía San Antonio, una historia que se remonta a los últimos 5.000 años.
Agradecimientos
Las investigaciones arqueológicas en la costa del Golfo San Matías fueron financiadas mediante sucesivos subsidios otorgados por el Consejo Nacional de Investigaciones Científicas y Técnicas (CONICET) y el Fondo para la Investigación Científica y Tecnológica (FONCyT) a los Dres. Florencia Borella y Cristian Favier Dubois y equipo. A la Agencia Río Negro Cultura y Áreas Naturales Protegidas (Provincia de Río Negro, Argentina) por otorgar los permisos de trabajo en el área. Este trabajo se realizó en el marco de las becas doctorales (Tipo 1 y Tipo 2) y post-doctoral otorgadas por el CONICET al autor. Se expresa el agradecimiento a todos los que participaron en los diversos trabajos de campo en esta localidad (Dres. Florencia Borella, Cristian Favier Dubois, Marcelo Cardillo, Hernán Marani, Liliana Manzi, Sonia Lanzelotti, Jimena Alberti, y Lic. Juan Matías Dellepiane, Gabriel Acuña y Florencia Ortega). A Emmanuel Vargas quien gentilmente me ayudó a mejorar la información gráfica. Finalmente, los comentarios de tres evaluadores anónimos fueron de gran relevancia para mejorar la calidad y claridad de este trabajo.
Declaración de Disponibilidad de Datos
Los datos utilizados en este artículo se encuentran disponibles tanto en la presente publicación como en otros trabajos ya publicados. En caso de que sean necesarios datos más detallados, éstos pueden ser solicitados al autor.