Introduction
Ressource animale caractéristique des zones sèches, la chèvre du sahel est très répandue dans tous les pays du sahel, au Sénégal, Mauritanie, Mali, Burkina Faso, Niger, Tchad, Nigéria (Dumas, Reference Dumas1980; Wilson, Reference Wilson1991; Meyer, Reference Meyer2001). Sa présence est également signalée dans les régions humides d'Afrique occidentale et centrale au Togo, en Côte d'Ivoire, au Cameroun (Lauvergne et al., Reference Kaiser1993; Meyer, Reference Meyer2001).
Au Niger, la chèvre du Sahel représente environ 80% du cheptel caprin (Rhissa, Reference Rhissa2010) et est élevée dans toutes les régions du pays. Cependant, à l'image des autres pays voisins tels que le Tchad, le Burkina Faso (Dumas, Reference Dumas1980; Lauvergne et al., Reference Lauvergne, Bourzat, Souvenir, Zeuh and Ngo Tama1993; Gnanda, Reference Gnanda2008; Traoré, Reference Traoré2010), la chèvre du sahel est peu connue au Niger. L'objectif visé dans ce travail est d'établir les caractéristiques phénotypiques quantitatives de la chèvre du sahel au Niger. En effet, une étape importante dans la connaissance des ressources génétiques animales, la caractérisation phénotypique est selon FAO (2012), essentielle pour la planification de la gestion des ressources zoogénétiques aux niveaux local, national, régional et mondial. Les paramètres phénotypiques quantitatifs étant directement corrélés aux paramètres de production (FAO, 2012), leur connaissance est importante pour la maîtrise et l'amélioration des performances de production des animaux.
Matériel et Méthodes
Echantillon d'étude
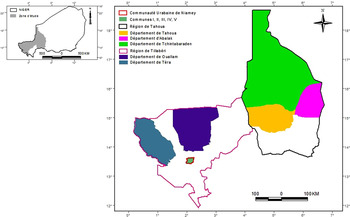
Inscrite dans le cadre des investigations de caractérisation phénotypique de la chèvre du sahel au Niger, l'étude a été conduite cumulativement à celle de la caractérisation phénotypique qualitative (Mani et al., sous presse), de juillet 2011 à mai 2012 dans la partie nord-ouest du Niger, notamment, les régions de Tahoua (départements de Tahoua, Abalak et Tchintabaraden), Tillabéri (département de Téra et Ouallam) et la Commune Urbaine de Niamey (Figure 1).
Zone d'étude.

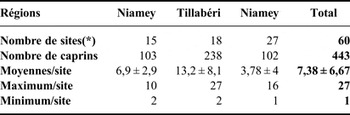
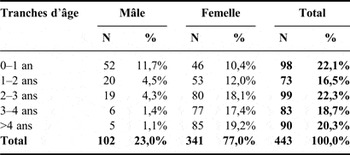
Les travaux étant conduits en milieu réel, l'adhésion des éleveurs a constitué un facteur déterminant pour la collecte des données. Ainsi, au niveau des exploitations où l'accord de principe a été acquis, un certain nombre de têtes est aléatoirement isolé pour les mensurations nécessaires. Au total, 145 exploitations et 443 caprins (dont 77% de femelles, 22,1% âgés de 0 à 1 an, 16,5% de 1 à 2 ans, 22,3% de 2 à 3 ans, 18% de 3 à 4 ans et 20,3% de plus de 4 ans) répartis en 60 sites, ont constitué l'échantillon de caractérisation. Le Tableau 1 présente le nombre de sites et de caprins par région de l'échantillon de l'étude et le Tableau 2 la répartition selon les tranches d'âge de l'échantillon d'étude.
Nombre de sites et de caprins par région de l'échantillon d'étude.

(*) Site = village ou quartier.
Configuration selon l'âge et le sexe de l'échantillon d'étude.

N = Nombre de caprins caractérisé par tranche d'âge.
Indicateurs de caractérisation
En Afrique, la classification des races caprines a été évolutive, plusieurs combinaisons de critères, généralement adoptées chez les bovins, ont été utilisées, une bibliographie conséquente en ce sens a été établie par Bouchel et Lauvergne (Reference Bouchel and Lauvergne1986). Pour atteindre les objectifs assignés à notre étude, les indicateurs quantitatifs retenus de la FAO (FAO, 1986; FAO, 2012) sont: la hauteur au garrot (HG), la longueur du corps (LC), le tour de poitrine (TP), la largeur du bassin (LB), la hauteur à la croupe (HC), la profondeur du thorax (PT), la longueur des oreilles (LO) et la longueur des cornes (Lc). Les mensurations (Figure 2) sont effectuées à l'aide d'une règle, d'un mètre ruban et d'un compas.
Mensurations réalisées [hauteur au garrot (a), hauteur à la croupe (b), profondeur du thorax (c), tour de poitrine (d), largeur du bassin (e), longueur des cornes (f)].

L'âge des animaux est déterminé par examen de la dentition, l'échelle présentée par Hamito (Reference Hamito2009) a été utilisée à cet effet tout en considérant que chez l'espèce caprine, l'animal atteint l'âge adulte à partir de 4 paires d'incisives (Bouchel et al., Reference Bouchel, Sow, Bibe, Tixier-Boichard, Lauvergne, Poivey and Rognon2006).
Les données morpho-biométriques ont permis d'établir les indices biométriques tels que définis par Lauvergne et al. (Reference Lauvergne, Bourzat, Souvenir, Zeuh and Ngo Tama1993) et Bourzat et al. (Reference Bourzat, Souvenir, Lauvergne and Zeuh1993).
-
➢ Indice de gracilité sous-sternal (IGS): rapport du vide sous-sternal [différence entre hauteur au garrot (HG) et profondeur du thorax (PT)] sur la profondeur du thorax (PT).
 $${\rm IGS} = \lpar {\rm HG} - {\rm PT}\rpar /{\rm PT}$$
-
➢ Indice auriculaire thorax (IAT): longueur de l'oreille (LO) sur la profondeur du thorax (PT).
$${\rm IAT} = {\rm LO}/{\rm PT}$$


Analyses statistiques
Les données recueillies ont fait l'objet d'analyse descriptive et d'une comparaison des moyennes (ANOVA) au logiciel SPSS (version 17.0). Des analyses multivariées notamment l'Analyse en Composante Principale (ACP) et l'Analyse Factorielle Discriminante (AFD) ont été effectuées au logiciel XLSTAT 2012. Il faut cependant noter que la synthèse des informations de l'analyse descriptive sous forme de tableaux et figures a été faite au tableur Excel.
L'ACP vise à représenter graphiquement les relations entre individus par l'évaluation de leurs ressemblances, ainsi que les relations entre variables par l'évaluation de leurs liaisons (Martin, Reference Martin2004). Ces principes sont également pris en compte en AFD (Baccini et Besse, Reference Baccini and Besse2007). Selon Martin (Reference Martin2004), deux individus se ressemblent, ou sont proches, s'ils possèdent des valeurs proches pour l'ensemble des variables. Cette définition sous entend une notion de proximité qui se traduit par une distance. Ainsi, la distance entre deux individus Xi et Yj est définie par:
 $${d^2}\lpar {X_i}\comma \; {Y_j}\rpar = {\sum\limits_{k = 1}^p {\lpar {X_{ik}} - {Y_{\,jk}}\rpar } ^2}$$
Par ailleurs, deux variables sont liées si elles ont un fort coefficient de corrélation linéaire. Sur un échantillon de taille n, le coefficient de corrélation linéaire (dit de Bravais-Pearson ou de Pearson) entre deux variables X (x1, x2, … .xi) et Y (y1, y2, … yi) est donné par l'équation suivante rapportée par Martin (Reference Martin2004) et Rakotomalala (Reference Rakotomalala2012).
 $$r={{\sum_{i = 1}^{n}} ( {x_i} - \bar x) \;.\;({y_i} - \bar y)\over\sqrt {\sum _{i = 1}^{n} (x_i -{\overline {x) ^2 \sum_{i = 1}^n (y_i - \bar y)^2}}}}$$
Plus le coefficient de corrélation est proche de 1 (en valeur absolue), plus la relation est forte (négativement si r < 0 et positivement si r > 0). Si r = 0, il ya absence de corrélation.
Graphiquement, les variables sont représentées dans l'espace (de dimension n) par des vecteurs. On considère les données centrées réduites par ligne afin de faciliter l'analyse du nuage d'individu car permettant de ramener l'origine des axes au centre de gravité G correspondant à l'individu moyen de la population (Martin, Reference Martin2004).
 $$X\lpar x_1 - \bar x\comma \; \ldots \ldots \ldots \comma \; {x_n} - \bar x\rpar \semicolon \; \quad \quad \quad Y\lpar y _1 - \bar y\comma \; \ldots \ldots \ldots \comma \; {y_n} - \bar y\rpar \semicolon \;$$
Le cosinus de l'angle α entre ces vecteurs n'est autre que le coefficient de corrélation, Cos(α) = r (formule ci-haut).
Résultats
Analyse descriptive des données
Paramètres biométriques selon la région, le sexe et les tranches d'âges
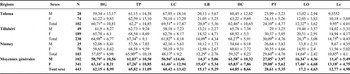
Le Tableau 3 présente les moyennes et écarts types des différents paramètres biométriques étudiés selon les régions et le sexe. Il ressort trois classements décroissants selon les régions:
-
– Tillabéri, Tahoua, Niamey pour HG et HC;
-
– Tillabéri, Niamey, Tahoua pour TP, PT, LO et Lc;
-
– Tahoua, Tillabéri, Niamey pour LC et LB.
Cependant, l'analyse des variances suivie de test post hoc, ont montré que les différences entre les populations caprines des trois régions sont statistiquement significatives (P < 0,05) pour HG, LC, LB, HC et LO. En outre, les chèvres de Tahoua se distinguent statistiquement de celles de Tillabéri par le TP et de plus de celles de Niamey par la PT et les chèvres de Tillabéri se distinguent statistiquement de celles de Tahoua et Niamey par la LC.
Moyennes et écarts types moyens (cm) des paramètres biométriques selon les régions

HG: hauteur au garrot, TP: tour de poitrine, LC: longueur du corps, LB: largeur du bassin, HC: hauteur à la croupe, PT: profondeur du thorax, LO: Longueur des oreilles, Lc: Longueur des cornes.
Les moyennes des régions portant des lettres différentes (a, b ou c) sur la même colonne sont statistiquement dfférentes (P < 0,05).
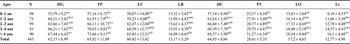
Le Tableau 4 présente les moyennes et écarts types des différents paramètres biométriques selon les tranches d'âge. Il résulte que tous les paramètres varient avec l'âge. L'analyse des variances fait ressortir des différences statistiquement significatives à certaines tranches d'âges. Les variations d'HG, HC LC, TP et Lc d'une part et LO et LB d'autre part sont apparues statistiquement semblables. En effet, les différences sont significatives entre les tranches d'âge à l'exception des tranches d'âge successives à partir de 2 ans pour HG et Lc. Comparativement à ces derniers, les variations sont significatives pour TP entre 2–3 ans et 3–4 ans et non significatives pour LC entre 1–2 ans et 3–4 ans puis, 2–3 ans et > 4 ans et pour HC entre 2–3 ans et > 4 ans. S'agissant de LB et LO cependant, les variations sont non significatives à l'exception de la tranche d'âge 0–1 an et les tranches > 3 ans pour LB et en plus entre 1–2 ans et > 4 ans pour LO.
: Tableau 4: Variation selon l'âge des paramètres biométriques

Sur la même colonne, une moyenne portant au moins une lettre (a, b, c ou d) portée par une autre, ne lui est pas statistiquement différente (P < 0,05).
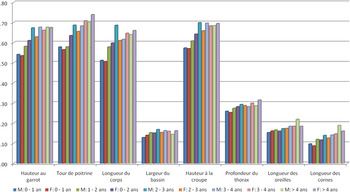
La Figure 3 présente l'évolution des différents paramètres biométriques selon le sexe et les tranches d'âge. Il ressort que chez le mâle, les valeurs maximales sont atteintes à l'âge de 2–3 ans pour les paramètres tels que HG, LC, LB, HC, et la PT, les autres paramètres (TP, LO et Lc) continuant leur croissance jusqu'à l'âge de quatre ans et au delà. Chez la femelle par contre, tous les paramètres étudiés augmentent selon l'âge jusqu'au-delà de 4 ans. En termes de comparaison selon le sexe, la Figure 3 permet de noter selon les tranches d'âge:
-
– les mâles sont supérieurs aux femelles à toutes les tranches d'âge pour la Lc;
-
– les mâles sont supérieurs aux femelles pour HG, TP, LC, HC, PT, et inférieurs aux femelles pour LO pour la tranche d'âge 0–1 an et inversement pour la tranche d'âge 1–2 ans;
-
– à 2–3 ans, au moment où les paramètres sont globalement à leur optimum chez les mâles, ces derniers sont supérieurs aux femelles pour tous les paramètres;
-
– au-delà de trois ans, les mâles sont supérieurs aux femelles pour HG et LO et inférieurs pour TP, LC et PT.
Afin de mieux apprécier la répartition selon les régions d'une part et les paramètres directeurs de cette répartition d'autre part, il a été abordé l'analyse des indices biométriques mettant en exergue la hauteur au garrot, la profondeur de la poitrine et la longueur des oreilles et l'analyse multivariée mettant en jeux tous les paramètres morpho-biométriques en relation avec les paramètres qualitatifs dont la région et le sexe.
Evolution selon l'âge et le sexe des paramètres morpho - biométriques étudiés ( M: mâle; F: femelle).

Indices biométriques
Les indices biométriques moyens sont:
-
➢ Indice de gracilité sous sternal IGS = 1,21 ± 0,34
-
➢ Indice Auriculo-thorax IAT = 0,44 ± 0,14
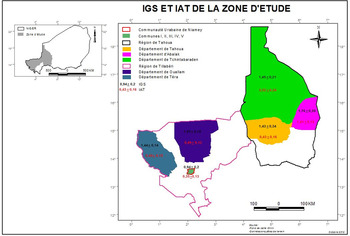
Les valeurs moyennes indiquent que les caprins dans la zone d'étude sont globalement de type longipes (IGS > 1), aux oreilles longues. Cependant, ces moyennes cachent de grandes disparités. La Figure 4, présente les valeurs moyennes de ces indices selon les départements de la zone de l'étude. Il ressort que ces indices varient selon les départements. L'IGS varie approximativement avec la longueur des pattes (HG – PT) alors que les variations de l'IAT sont imputables à l'évolution des deux facteurs (LO et PT). Ainsi, dans la zone d'étude, les chèvres sont de type brèvipes à oreilles moyennes dans la région de Niamey, longipes à oreilles longues dans la région de Tillabéri (Téra et Ouallam) et longipes à oreille relativement courtes dans la région de Tahoua (Tahoua, Abalak).
Répartition des indices biométriques selon les départements de la zone d'étude.

Analyse multi-variée des paramètres biométriques
Analyse en composante principale
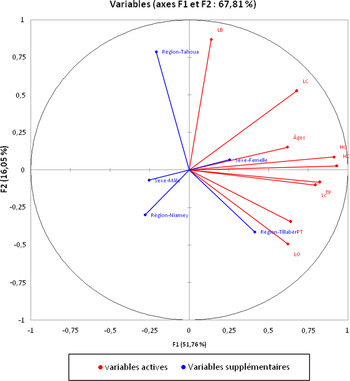
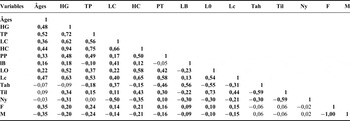
L'ACP fait ressortir (Tableau 5), les corrélations entre les paramètres morpho-biométriques étudiés en variables principales mais aussi entre eux et la région et le sexe en variables supplémentaires. Conformément au principe de Kaiser (Reference Kaiser1960), les deux premiers axes F1 et F2 de l'ACP sont les seuls dont les valeurs propres sont supérieures à 1, ils résument en outre environ 67,8% des observations. Pour cela, et du fait que l'essentiel des variables principales mais aussi supplémentaires ont leurs cosinus carrés élevés sur ces axes, le premier plan factoriel (F1xF2) s'adapte bien pour l'interprétation des résultats de l'analyse. Il ressort sur ce plan factoriel (Figure 5) que toutes les variables (principales et supplémentaires) sont bien représentées. Cette figure permet en outre de constater une forte corrélation positive entre HG, HC, Lc, TP, LC, PT et LO. Ce groupe de variable fortement corrélé est en corrélation approximativement nulle avec LB. Il ressort que ce groupe de variable est bien caractéristique des chèvres de la région de Tillabéri alors que celles de Tahoua sont bien caractérisées par LB, LC, HG, HC et celles de Niamey par PT, LO, Lc et TP. En outre, cette figure permet de lire que globalement à tout âge compris tous les paramètres sont en corrélation positive avec le sexe femelle et négative avec le sexe mâle.
Cercle de corrélation ACP.

Matrice de corrélation (Pearson (n))

Les valeurs en gras sont différentes de 0 à un niveau de signification alpha = 0,05.
Analyse Factorielle Discriminante
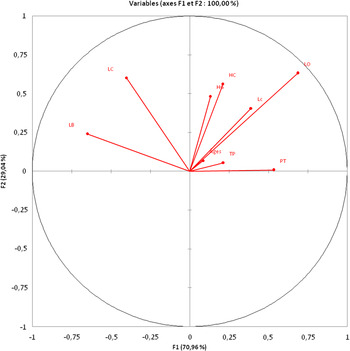
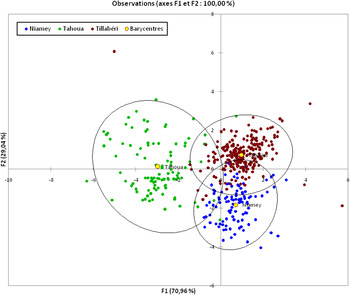
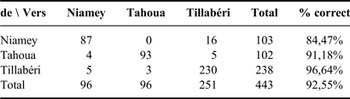
L'Analyse Factorielle Discriminante (AFD) contribue à affiner les résultats de l'ACP. En considérant comme variables dépendantes la région et le sexe et comme variables explicatives l'âge et les huit paramètres morpho-biométriques, les deux premiers axes factoriels expliquent 100% de la variabilité. Il ressort de cette analyse (Figure 6), que les facteurs les plus discriminants mieux représentés sur les deux axes, autrement dit qui permettent de mieux caractériser les chèvres, sont HG, HC, LC, Lc, LO, LB et PT. La matrice de confusion (Tableau 6) montre que les individus sont bien classés en moyenne dans 92,55%, trente trois (33) individus soit 7,45% étant reclassés. Il ressort de la répartition des individus dans le plan factoriel (Figure 7) que dans les régions de Tahoua et Tillabéri, les individus sont bien discriminés sur les deux axes contrairement à la région de Niamey où les individus sont représentés principalement sur l'axe F1. Cette répartition fait également ressortir que les populations de chèvres dans les trois régions ne sont pas totalement distinctes. Il existe en faible proportion des sous groupes intermédiaires entre les régions. Cependant, conformément à l'ACP, l'AFD (Figures 6 et 7) montre que dans la majorité, les populations caprines se distinguent d'une région à une autre, les chèvres dans la régions de Tahoua bien discriminées par l'importance de LC et LB, celles de la région de Tillabéri par l'importance de HG et HC, PT, Lc et LO, tandis que celles de Niamey sont mieux représentées par TP et PT.
Cercle de corrélation AFD.

Répartition des individus dans le plan factoriel (F1-F2).

Matrice de confusion pour l'échantillon d'estimation (région)

Discussion
Plusieurs études de caractérisation des caprins (Lauvergne et al., Reference Lauvergne, Bourzat, Souvenir, Zeuh and Ngo Tama1993; Zeuh et al., Reference Zeuh, Lauvergne, Bourzat and Minvielle1997; Lanari et al., Reference Lanari, Taddeo, Domingo, Perez-Centeno and Gallo2003; Traoré et al., Reference Traoré, Tamboura, Kaboré, Yaméogo, Bayala and Zaré2006; Bouchel et al., Reference Bouchel, Sow, Bibe, Tixier-Boichard, Lauvergne, Poivey and Rognon2006; Traoré et al., Reference Traoré, Hamidou, Adama, Luis, Ivan, Isabel, Sangaré, Bouchel, Jean Paul, Dominique, Sawadogo and Goyache2008; Verma et al., Reference Verma, Dixit, Aggarwal, Dangi and Joshi2010; Ebegbulem et al., Reference Ebegbulem, Ibe, Ozung and Ubua2011; Halima et al., Reference Halima, Michael, Barbara and Markos2012) ont fait usage seuls ou associés à d'autres, des indicateurs utilisés dans le cadre de cette étude. L'échantillon étudié est composé majoritairement des femelles (77%) conformément à l'image générale des troupeaux enquêtés (les mâles sont minoritaires et généralement jeunes), mais aussi traduit l'importance socioéconomique de l'élevage caprin dans la zone d'étude. En effet, les mâles sont abattus à bas âges pour des circonstances de cérémonies (mariage, baptême, tabaski ou autres fêtes) mais aussi de sacrifice. Ils constituent également une épargne facilement mobilisable en cas de besoin pécuniaire et les femelles sauf en cas de forces majeures sont gardées pour le renouvellement du troupeau. Ce constat a été relaté au Nigéria, au Burkina, au Botswana, en Ouganda (Samuel et Salako, Reference Samuel and Salako2008; Traoré et al., Reference Traoré, Tamboura, Kaboré, Yaméogo, Bayala and Zaré2006; Katongole et al., Reference Katongole, Sebolai, Madimabe, Lebbie and Kagwini1996; Semakula et al., Reference Semakula, Mutetikka, Kugonza and Mpairwe2010).
Les moyennes des données biométriques obtenues sont inférieures à celles présentées par Wilson (Reference Wilson1991) pour la chèvre « Arabe » du Tchad et les chèvres « Maure » du Mali pour HG, PT, LO et Lc, les chèvres « Toureg » et « Sahel » du Mali pour HG et PT, mais semblable à la chèvre « Sahel » du Mali pour la LO. Par ailleurs, ces moyennes biométriques obtenus sont supérieures à celles des chèvres sahéliennes, soudanienne (chèvre Djallonké) et sahélo-soudanienne (Mossi) pour les paramètres HG, PT, LC, LO, Lc et HC (Traoré et al., Reference Traoré, Hamidou, Adama, Luis, Ivan, Isabel, Sangaré, Bouchel, Jean Paul, Dominique, Sawadogo and Goyache2008; Samuel et al., Reference Samuel and Salako2008; Abdulmojeed, Adebowale et Ikhide, Reference Abdulmojeed, Adebowale and Ikhide2010; Ebegbulem et al., Reference Ebegbulem, Ibe, Ozung and Ubua2011) mais se rapprochent des données de la chèvre « Red Sokoto Goat » obtenues par Abdulmojeed et al. (Reference Abdulmojeed, Adebowale and Ikhide2010).
Les indices biométriques varient selon les localités (régions et départements), l'IGS variant de 0,94 à 1,67 et l'IAT de 0,35 à 0,52. Etant donné que l'IGS évolue avec la longueur des pattes et l'IAT dépend des deux grandeurs conjugués, LO et PT, les variations des indices biométriques indiquent des distinctions entre les populations caprines des trois régions étudiées par la longueur des pattes et des oreilles et la profondeur du thorax.
Les variations de l'IGS observées sont semblables aux variations rapportées sur les populations caprines du Sénégal (Bouchel et al., Reference Bouchel, Sow, Bibe, Tixier-Boichard, Lauvergne, Poivey and Rognon2006). Cependant, l'IGS moyen obtenu est semblable a l'IGS des populations caprines du Nord Cameroun mais inférieur à celui des populations caprines du Nord Tchad (Bourzat et al., Reference Bourzat, Souvenir, Lauvergne and Zeuh1993) et intermédiaire entre les deux sous populations du sud Tchad (Zeuh et al., Reference Zeuh, Lauvergne, Bourzat and Minvielle1997). Egalement, cet IGS moyen se rapproche de celui de la population caprine toutes races confondues du Burkina Faso (Traoré et al., Reference Traoré, Hamidou, Adama, Luis, Ivan, Isabel, Sangaré, Bouchel, Jean Paul, Dominique, Sawadogo and Goyache2008), mais spécifiquement inférieur à celui de la chèvre sahélienne et supérieur à ceux des chèvres sahélo-soudanienne et soudanienne. Cela suppose que la population caprine de la zone d'étude se rapproche du point de vue longueur des pattes à celles du Burkina Faso et du Nord Cameroun. L'IAT quant à lui, est inférieur à ceux des populations caprines de ces deux entités. Cette faiblesse de l'IAT ne traduit pas que la LO et PT sont inférieures bien au contraire, mais tient au fait que l'évolution de l'IAT est apparue indépendante d'un seul des deux facteurs du fait des écarts entre les valeurs des deux paramètres (LO approximativement moitié de PT).
Les résultats de l'analyse en composante principales font ressortir qu'indépendamment de l'âge, le sexe femelle est en corrélation positive avec tous les paramètres biométriques étudiés. Cela peut être inhérent aux écarts d'effectifs (femelle 77%). L'analyse des variances a indiqué que les paramètres biométriques varient statistiquement selon l'âge et l'analyse selon les tranches d'âges a fait ressortir globalement que les mâles sont supérieurs aux femelles avec quelques exceptions selon les tranches d'âges et les paramètres. En effet, selon Vigne, Peters et Helmer (Reference Vigne, Peters, Helmer, Vigne, Peters and Helmer2002), le sexe est le facteur le plus influant sur les dimensions chez les chèvres, les mâles âgés de plus de 12 mois sont toujours plus grands que les femelles; ensuite vient l'environnement se traduisant par une diminution des dimensions des chèvres des zones froides et humides vers les zones arides, alors que l'âge semble avoir peu d'impact sur les dimensions des chèvres. Samuel et Salako (Reference Samuel and Salako2008) et Semakula et al. (Reference Semakula, Mutetikka, Kugonza and Mpairwe2010), étudiant respectivement les caractéristiques biométriques de la chèvre Djallonké (West African Dwarf Goat) au Nigéria et la chèvre Mubende en Ouganda, arguent que l'âge et le sexe sont des facteurs influençant significativement le poids corporel et les paramètres biométriques. Les femelles chez la chèvre Djallonké sont trouvées supérieures aux mâles dans les tranches d'âge de 0 à 2 ans selon les résultats de Samuel et Salako (Reference Samuel and Salako2008) et inversement pour toutes les tranches d'âge chez la chèvre Mubende selon les résultats de Semakula et al. (Reference Semakula, Mutetikka, Kugonza and Mpairwe2010). Cependant, les résultats d'Ebegbulem et al. (Reference Ebegbulem, Ibe, Ozung and Ubua2011) indiquent chez la chèvre Djallonké au Nigeria que les mâles sont supérieurs aux femelles pour HG, HC, TP, LO, LC et LB.
L'AFD et l'ACP, confirment les résultats des tests statistiques et de l'analyse des indices biométriques, autrement dit la distinction entre les populations caprines de trois régions. L'AFD révèle une quasi distinction et homogénéisation respectivement inter et intra région pour les populations caprines étudiées.
Les tests statistiques et les analyses multivariées (ACP et AFD) permettent de distinguer dans la zone d'étude quatre (4) sous populations distinctes de chèvres en fonctions des paramètres morpho-biométriques étudiés. Une sous population de Tillabéri caractérisée par de HG, HC, LO, TP, et Lc élevés mais LB et LC faibles par rapport aux autres sous populations, une sous population de Tahoua avec LB et LC élevées, HG et HC intermédiaires et TP, PT, LO, Lc faibles par rapport aux autres, une sous population de Niamey avec PT, LO moyens et des valeurs faibles pour les autres paramètres et une sous population intermédiaire entre la sous population de Tahoua et celle des Niamey avec TP et Lc moyens. Des différences statistiquement significatives sur le plan phénotypique qualitatif ont également été rapportées (Mani et al., sous presse) entre les populations des trois régions.
Les valeurs moyennes à faibles observées pour les chèvres de Niamey sont inhérentes au caractère urbain de son élevage, qui fait d'elle un melting-pot où est rencontré une diversité de races notamment, les races locales (chèvre Rousse, chèvre du sahel), sous régionale (chèvre Djallonké, chèvre Mossi) et leurs croisés. Les individus intermédiaires peuvent être inhérents à la proximité, en effet, Niamey est circonscrite dans la région de Tillabéri qui, elle-même partage une longue frontière avec la région de Tahoua.
Conclusion
Aux termes de cette étude, il ressort que l'espèce caprine dans la zone d'étude est diversement repartie selon les régions en fonction des paramètres quantitatifs étudiés. Trois écotypes spécifiques aux trois régions et un type intermédiaire Niamey-Tillabéri ont été distingués. Les valeurs moyennes à faibles des paramètres morpho-biométriques des caprins de Niamey est la résultante de l'hétérogénéité zoo-génétique de ce troupeau avec la présence de la diversité génétique de la sous région et son corolaire le brassage génétique. De ce fait, mise à part la population hétéro-génétique de Niamey, l'on retiendra que la chèvre du sahel se présente sous deux types phénotypiques dans la zone d'étude. Une population type de la région de Tillabéri et celle type de la région de Tahoua. Les caractéristiques sur le plan morpho-biométrique sont: grande taille (en moyenne 64,98 ± 6,77 cm et 60,71 ± 10,81 cm au garrot et 68,27 ± 5,91 cm et 62,46 ± 10,65 cm à la croupe respectivement à Tillabéri et Tahoua), oreilles et cornes longues dans la région de Tillabéri (en moyenne respectivement environ 20,3 ± 3,08 cm et 14,75 ± 4,43 cm) et courtes dans la région de Tahoua (environ respectivement 12,32 ± 3,62 cm et 9,95 ± 4,01 cm en moyenne). Le tour de poitrine, la longueur du corps, la largeur du bassin et la profondeur du thorax sont en moyenne respectivement 62,2 ± 14,85 et 67,34 ± 9,1 cm; 69,51 ± 17,47 et 61,82 ± 8,18 cm; 20,8 ± 5,36 et 14,09 ± 4,34 cm et 24,10 ± 4,77 et 30,09 ± 4,76 cm respectivement à Tahoua et Tillabéri.
Cependant, afin d'affiner la caractérisation, il est fondamental de savoir qu'en est-il sur les plans génétiques et zootechniques entre ces deux sous types? En outre, eu égard à l'omniprésence de la chèvre du sahel dans toutes les Régions du Niger, il s'avère important d'étendre les travaux de caractérisation sur les autres régions du pays.
Remerciements
Les auteurs remercient le partenaire financier qui est l'Agence Universitaire de la Francophonie (AUF), précisément son Bureau Afrique de l'Ouest et le CNF de Niamey. Ils remercient également le Programme de Productivité Agricole en Afrique de l'Ouest (PPAAO) qui a contribué matériellement et financièrement aux activités sur les caprins du Sahel.