Introducción
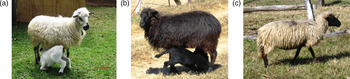
En la región de los Altos de Chiapas, México, se estableció desde el siglo XVI en la población indígena un sistema de producción ovina que prevalece casi sin cambios hasta nuestros días. Esta población de borregos tiene su origen de las razas Churra, Manchega y Lacha y es conocida como raza Chiapas, con tres biotipos: Blanca, Negra y Café (Figura 1) (Pedraza et al., Reference Pedraza, Peralta and Pérezgrovas1992; FAO, 2009).
Ovino de la raza Chiapas en sus variedades Blanca, Negra y Café. (a) Variedad blanca Borrego Chiapas (Icsat en lengua Tzotzil) Blanco con manchas negras alrededor de los ojos, el hocico y las orejas (b) Variedad negra o Chamula (Saciol en lengua Tzotzil) Negro de piel y lana, con manchas blancas en la región frontal de la cabeza y la punta de la cola. (c) Variedad Cafó (Mesha en lengua Tzotzil) El color de la lana es blanco cremoso con tres variedades marrón, negro y dorado.

Estos ovinos tienen importancia cultural, social y económica por la producción de lana en la población Tzotzil de origen maya (Perezgrovas y Castro, Reference Perezgrovas and Castro2000). Son animales rústicos con partos anuales generalmente sencillos; el empadre se realiza con monta natural teniendo presente al macho durante todo el año, a pesar de existir una marcada estacionalidad con partos al término de la época de lluvias (octubre–noviembre). La trasquila se realiza cada 6 meses (abril–octubre). Los rebaños son pequeños de entre 8 a 10 animales por comunero y son alojados en corrales de madera pequeños fijos o móviles. Los ovinos son llevados a pastorear en zonas comunales y a pie de carretera donde consumen pastos (Sporobolus sp., Stipa ichu, Avena fatua, Cynodon dactylon, Pennisetum clandestinum, Tripogandra spp., Trifolium amabile, Melilotus alba) y plantas nativas (Eupatorium mairetianum, Eupatorium ligustrinum, Salvia spp., Phytolaccaceae spp., Rulus trilobus, Sambucus mexicana). El agua de bebida es proporcionada de forma individual a cada animal con una cubeta procurando evitar que los animales beban de los aguajes o cauces de ríos a fin de evitar parasitosis. Cuando los dueños tienen oportunidad suplementan con rastrojo de maíz. Los animales enfermos son tratados con herbolaria tradicional (Pedraza et al., Reference Pedraza, Peralta and Pérezgrovas1992; Perezgrovas y Castro, Reference Perezgrovas and Castro2000). Por su respuesta reproductiva a estas condiciones ambientales se le considera a la raza de borregos Chiapas como un recurso zoogenético de la región. Actualmente, la Universidad Autónoma de Chiapas conserva un núcleo de esta raza con las tres variedades, con apareamientos controlados exclusivamente dentro de estos biotipos, con el objetivo de caracterizar, evaluar y apoyar la producción ovina de la región.
El borrego Chiapas es una raza pequeña con pesos al nacimiento de 2.5 kg y de 26 a 30 kg en la edad adulta en hembras y machos respectivamente (Perezgrovas y Pedraza, Reference Perezgrovas and Pedraza1984; Pedraza et al.,Reference Pedraza, Peralta and Pérezgrovas1992; Perezgrovas y Castro, Reference Perezgrovas and Castro2000; López et al., Reference López, Olivera, Berruecos, Peralta, Ulloa-Arvizu and Vásquez2012); sin embargo, se desconoce la curva y velocidad de crecimiento. López et al. (Reference López, Olivera, Berruecos, Peralta, Ulloa-Arvizu and Vásquez2012) estimaron heredabilidades de 0.09 a 0.34 para peso al nacimiento y de 0.09 a 0.16 para peso ajustado al destete (90 días), con una correlación genética entre estos pesos de 0.81 ± 0.18, sin que exista información en edades y pesos posteriores.
La estimación de la curva de crecimiento del nacimiento hasta la edad adulta permite identificar etapas en el desarrollo de esta raza, pudiendo establecer programas de manejo y alimentación así como estimar la tasa de crecimiento absoluto, la tasa relativa de maduración y peso adulto (Fitzhugh, Reference Fitzhugh1976), e identificar animales genéticamente sobresalientes a las condiciones ambientales.
Diferentes funciones no lineales han sido utilizadas para describir y ajustar la curva de crecimiento en diferentes especies, entre las cuales se encuentra la función de Gompertz que tiende a un mejor ajuste con respecto a otros modelos (Özdemir y Dellal, Reference Özdemir and Dellal2009; Forni et al., Reference Forni, Piles, Blasco, Varona, Oliveira, Lôbo and Albuquerque2009; Renne et al., Reference Renne, Langhammer, Wytrwat, Dietl and Bünger2003; Delgadillo et al., Reference Delgadillo, López, Montaldo, Berruecos, Luna, Shimada and Vásquez2009, Martínez et al., Reference Martínez, Rodríguez, Jiménez and Manrique2010). Esta función presenta dos parámetros con interpretación biológica: A supone que el peso tiende a un valor final o asintótico con el tiempo (peso adulto) y k es la tasa de crecimiento la cual disminuye monotónicamente a medida que aumenta el peso hacia la madurez, mientras que el parámetro b está relacionado con las condiciones iniciales (Blasco, Reference Blasco1999).
El objetivo de este estudio fue caracterizar la curva de crecimiento utilizando la función de Gompertz desde el nacimiento hasta la edad madura y la estimación de las (co)varianzas de los componentes de la función en ovinos de la raza Chiapas que permitan ayudar a establecer sistemas de manejo, alimentación y genéticos en esta raza.
Materiales y métodos
Se utilizó la información de los corderos nacidos entre 1991 y 2004, del rebaño de borrego Chiapas localizado en el Centro Universitario de Investigación y Transferencia de Tecnología de la Universidad Autónoma de Chiapas (CUITT-UNACH) ubicado en el municipio de Teopisca, 16°32′24″ de latitud norte y 92°28′19″ de longitud oeste y a una altitud de 1780 msnm. El clima es templado subhúmedo C(w2) (w) (clasificación de Köeppen), la temperatura media anual oscila entre los 14 y 18°C con heladas de noviembre a febrero y una precipitación pluvial de 1200 mm anual de abril a octubre (Nahed, Reference Nahed1999). El CUITT-UNACH, tiene una extensión de 50 ha de praderas; 10 ha son dedicadas para la siembra de maíz y casi una ha para instalaciones donde se localizan los corrales rústicos construidos con madera, y techo de lámina de zinc, sala de ordeño, bodega y oficina. Los borregos se mantienen en un sistema mixto con pastoreo diurno de 6 a 8 horas en pradera compuesta principalmente de zacate kikuyu (Pennisetum clandestinum) con encierro nocturno complementada con mazorca de maíz, harina de soya y sales minerales. El manejo sanitario del rebaño consistió en una rotación de principios activos para el control de enfermedades gastroentéricas y respiratorias. En la época de empadre se formaron lotes de 10 hembras por cada semental, con una duración de 60 días de inicios de noviembre a finales de diciembre de 1991 a 1997; a partir de 1998 hasta 2004, las hembras fueron inducidas al estro con el empadre a principios de marzo; los nacimientos fueron desde agosto a finales de septiembre. El destete se realizó cuando los corderos tenían 3 meses de edad aproximadamente.
Para cada uno de los corderos se registró la identificación del padre, de la madre, el número de parto del cual provenían, tamaño de la camada, año de parto, sexo, fecha de nacimiento, edad y peso semanal del nacimiento al destete, y mensual del destete hasta los 24 meses de edad. Eliminando del análisis aquellos registros que contaron con menos de 5 pesajes posdestete quedando un total de 790 animales y 15,067 mediciones.
Análisis estadístico
La caracterización de la curva de crecimiento se realizó utilizando la función de Gompertz (Proc NLIN, SAS, 1993), calculando para cada animal los estimadores de los parámetros de la función
 $${\bf y_{t}} = {\bf Ae}^{ \rm - {be}^{ - {kt}} }$$
donde yt representa el peso corporal a la edad t (en días); A es el valor estimado del peso asintótico cuando la edad tiende a infinito, interpretado como peso adulto o maduro; b es la constante de integración; k es la relación y/A que representa la tasa de crecimiento (tasa de madurez); y e es el número de Euler 2.7182818.
La relación (ln(b)/k) estima la edad a la inflexión, y ky ln(A/y) la velocidad de crecimiento absoluto al punto de inflexión, donde el valor de y se tomó como el peso a la inflexión que es 0.368.
Para el cálculo de los efectos ambientales sobre los estimadores de la curva de crecimiento se utilizó un modelo lineal (GLM, SAS, 1993) incluyendo los efectos fijos y las interacciones dobles, quedando en el modelo final los efectos de año de nacimiento, tamaño de la camada, edad de la madre y sexo (P < 0.05); mientras que las interacciones dobles se eliminaron al no presentar significancia estadística (P > 0.15). La estimación de los componentes de (co)varianza de los parámetros de crecimiento predichos a partir de la función de Gompertz se realizó utilizando un modelo animal univariado bajo la metodología de máxima verosimilitud restringida (REML) con el programa ASReml versión 2.0 (Gilmour et al., Reference Gilmour, Gogel, Cullis and Thompson2006) a partir de un modelo mixto representado como
 $${\bf {Y}} = {\bf {X}} {\bf {\beta}} + {\bf Z} {\bf a} + {\bf {e}}$$
donde Y es el vector N × 1 observaciones de los estimadores de los parámetros A, b y k del modelo de Gompertz, peso y edad a la inflexión, o velocidad de crecimiento absoluto; β es el vector de efectos fijos ambientales de número de parto, tamaño de la camada, sexo; X es la matriz de incidencia que relaciona los efectos ambientales con las características de crecimiento; a es el vector del valor genético aleatorio de los animales; Z es la matriz de incidencia que relaciona los efectos aleatorios de los animales con las observaciones; e es el vector de efectos aleatorios residuales. Los supuestos en el modelos fueron E[y] = Xβ y E[e] = 0y
 $$Var\left[{\matrix{ a \cr e \cr } } \right]= \left[{\matrix{ {{\bf A}\sigma _a^2 } & 0 \cr 0 & {{\bf I}_{\bf N} \sigma _e^2 } \cr } } \right]$$
donde N es el número de registros de las características estudiadas; A es la matriz de relaciones genéticas aditivas entre los animales; IN es la matriz de identidad de orden N.
Resultados
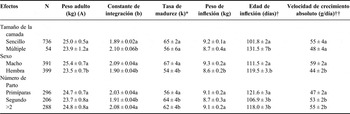
En el Cuadro 1 se presentan las medias de cuadrados mínimos de los efectos ambientales sobre los estimadores de la curva de crecimiento. El tamaño de la camada y número de parto del que provenían los animales, no influyeron en A (P > 0.05), mientras que el valor estimado en los machos fue de 25.4 kg (7.9%) mayor (P < 0.05) que en las hembras (24.8 kg). El parámetro b fue afectado por todos los efectos fijos incluidos en el modelo (P < 0.05).
Medias de cuadrados mínimos y errores estándar para las características de crecimiento de acuerdo al tamaño de la camada, sexo y número de parto en borregos de la raza Chiapas

* 1 × 10⁻⁴
† ln(b)/k
†† ky ln (A/y), tomando y = 0.368*A. 1 × 10⁻³
a, b, c Valores con diferente literal dentro del efecto son medias diferentes (P < 0.05)
El parámetro k no se vio influenciado por tamaño de la camada (P > 0.05); los machos tuvieron una mayor tasa de madurez (24%) que las hembras (P < 0.05), mientras que los corderos provenientes de madres primíparas tuvieron el valor más bajo (0.0056), lo que representa del 80 a 87% de lo alcanzado por los corderos provenientes de hembras multíparas (P < 0.05). El peso a la inflexión fue alcanzado 30 días antes en los corderos de parto sencillo comparados con los de parto múltiple (P < 0.05); los machos alcanzaron el peso a la inflexión 8% más rápido que las hembras (P < 0.05); los corderos de segundo parto tuvieron la menor edad a la inflexión (107 días), que representa un 13.7% menos que los corderos de primíparas y 10 % menos de las de tres o más partos (P < 0.05).
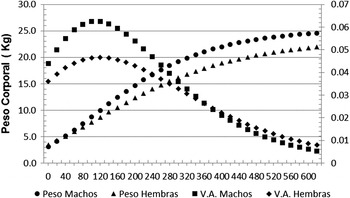
La Figura 2 muestra la curva de crecimiento y la tasa de crecimiento absoluto por sexo; la mayor tasa de crecimiento de los machos fue de 59 g/día (punto de inflexión), mientras que en las hembras la ganancia fue de 44 g/día (P < 0.05). Por otro lado, las crías de hembras de primer parto tuvieron una tasa de crecimiento absoluto menor que los corderos de dos o más partos (P < 0.05).
Pesos estimados con la funcion de Gompertz y velocidad de crecimiento absoluto (V.A.) para hembras y machos en el borrego de la raza Chiapas.

En general, los factores tamaño de la camada, número de parto de la hembra y sexo del cordero, fueron significativos en la variación de la curva de crecimiento del ovino Chiapas.
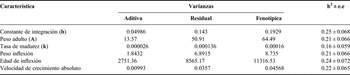
Componentes de varianzas y heredabilidades estimadas (h2 ± e.e) para las características de crecimiento en borregos Chiapas

En el Cuadro 2 se presentan los componentes de varianzas aditiva y fenotípica así como los valores de heredabilidad estimados de los parámetros de la función de Gompertz siendo para A (peso adulto) 0.21 ± 0.066, b (Constante de integración) 0.25 ± 0.068 y k (tasa de madurez) 0.16 ± 0.05. La estimación de heredabilidad para peso a la inflexión fue 0.21 ± 0.066; para edad a la inflexión, 0.24 ± 0.072 y para velocidad de crecimiento absoluto, 0.22 ± 0.065.
Discusión
Con respecto al peso adulto, los valores encontrados en este estudio son inferiores a lo observado en razas españolas Churra, Manchega y Lacha (Pedraza et al., Reference Pedraza, Peralta and Pérezgrovas1992), así como con otras razas locales en otras latitudes (Lewis et al., Reference Lewis, Emmans and Dingwall2002; Topal et al., Reference Topal, Ozdemir, Aksakal, Yildiz and Dogru2004; Lambe et al., Reference Lambe, Navajas, Simm and Bünger2006; Malhado et al., Reference Malhado, Carneiro, Affonso, Souza and Sarmento2009; Braga et al., Reference Braga, Vasques, Oliveira, Sousa and Oliveira2006; Ozder et al., Reference Ozder, Sezenler, Onal and Ceyhan2009; Kubuc y Eyduran, Reference Kubuc and Eyduran2009; Darkiran et al., Reference Darkiran, Koncagul and Bingol2010; Solomon et al., Reference Abegaz, Van Wyk and Oliver2010), pero semejantes a lo informado por Perezgrovas y Pedraza (Reference Perezgrovas and Pedraza1984): 25 y 28 kg en hembras y machos respectivamente en esta misma raza de ovino Chiapas, siendo esto indicativo de que la población de ovino de raza Chiapas no ha sido seleccionada para características de crecimiento, ya que es una raza que es destinada para la producción de lana (Perezgrovas y Castro, Reference Perezgrovas and Castro2000) y que el sistema de producción permanece prácticamente sin cambios (López et al., Reference López, Olivera, Berruecos, Peralta, Ulloa-Arvizu and Vásquez2012).
El modelo de Gompertz para peso maduro (A), mostró una subestimación de 1.5 kg aproximadamente, la cual ha sido también observada por otros autores (Lambe et al., Reference Lambe, Navajas, Simm and Bünger2006; Malhado et al., Reference Malhado, Carneiro, Affonso, Souza and Sarmento2009), posiblemente debido a la cantidad de tejido graso, que es muy variable a lo largo del estado adulto del animal (Blasco, Reference Blasco1999), y a la disponibilidad de forraje a través del tiempo. También hay referencias que mencionan que la subestimación del peso maduro se debe únicamente al uso de datos realizados en la etapa temprana (Lambe et al., Reference Lambe, Navajas, Simm and Bünger2006).
El peso adulto en los machos fue 7.9% superior al de las hembras, siendo un porcentaje menor a lo observado en razas de carne como la Suffolk (Lewis et al., Reference Lewis, Emmans and Dingwall2002). El hecho de que no existió efecto del tamaño de la camada y número de parto (P > 0.05) es explicado debido a que el peso adulto del animal está muy alejada de los efectos maternos que existen en el ambiente uterino y en la lactancia (López et al., Reference López, Olivera, Berruecos, Peralta, Ulloa-Arvizu and Vásquez2012), los resultados de este trabajo coincide con algunos estudios (Malhado et al., Reference Malhado, Carneiro, Affonso, Souza and Sarmento2009), aunque otros autores han registrado un efecto del número de parto sobre el peso maduro de sus crías (Bathaei y Leroy, Reference Bathaei and Leroy1996; Lewis et al., Reference Lewis, Emmans and Dingwall2002; McManus et al., Reference McManus, Evangelista and Fernandes2003).
El parámetro b se considera como una constante de integración sin significado biológico particular y con alta correlación con el parámetro A (Blasco, Reference Blasco1999); de tal modo que la expresión y0 = A exp (-b), puede ser interpretada como un estimador del peso al nacimiento; esta función estimó el peso al nacer de 3.14 kg para machos y de 3.51 kg para hembras, mostrando una sobrestimación en corderos de la raza Chiapas; Perezgrovas y Castro, (Reference Perezgrovas and Castro2000) y López et al. (Reference López, Olivera, Berruecos, Peralta, Ulloa-Arvizu and Vásquez2012) observaron pesos al nacer de 2.15 y 2.27 kg para hembras y machos de esta misma raza. Este sesgo se puede deber a la inconsistencia de la función.
En la mayoría de los estudios no se presenta el valor encontrado de b, sin embargo, hay informes en razas del medio oriente (Topal et al., Reference Topal, Ozdemir, Aksakal, Yildiz and Dogru2004) y brasileñas (Malhado et al., Reference Malhado, Carneiro, Affonso, Souza and Sarmento2009) que presentan valores alrededor de 2, semejante a la encontrado en el borrego Chiapas por López et al. (Reference López, Olivera, Berruecos, Peralta, Ulloa-Arvizu and Vásquez2012) y en este estudio.
En este estudio, los valores de la tasa de madurez son menores hasta en un 50% de los registrados en otras razas ovinas locales (Topal et al., Reference Topal, Ozdemir, Aksakal, Yildiz and Dogru2004; Kubuc y Eyduran, Reference Kubuc and Eyduran2009; Malhado et al., Reference Malhado, Carneiro, Affonso, Souza and Sarmento2009) y solo ligeramente inferiores a los encontrados en la West African Dwarf (Gbangboche et al., Reference Gbangboche, Glele-Kakai, Salifou, Albuquerque and Leroy2008), indicando que la raza de ovinos en la raza Chiapas es de lento crecimiento, lo que puede estar asociado a su adaptabilidad al medio ambiente de la zona. Como se esperaba, los machos presentaron una tasa de madurez 1.24 veces mayor que la de las hembras (P < 0.05); resultados similares se han observado en razas locales brasileñas (Malhado et al., Reference Malhado, Carneiro, Affonso, Souza and Sarmento2009).
El peso y la edad a la inflexión son los puntos donde la ganancia de peso llega al máximo y posteriormente tiende asintóticamente a cero (Figura 2). En la función de Gompertz este punto es fijo; el peso a la inflexión representó el 36.78% del peso a la madurez (A). Como en borregos Chiapas tienen valores de A menores que los encontrados en otras razas, consecuentemente el peso a la inflexión también resultó menor. Sin embargo, como el valor de k también fue menor, dando resultado que la edad a la inflexión fuera superior a lo que presentan las otras razas (Lewis et al., Reference Lewis, Emmans and Dingwall2002; Topal et al., Reference Topal, Ozdemir, Aksakal, Yildiz and Dogru2004; Lambe et al., Reference Lambe, Navajas, Simm and Bünger2006; Malhado et al., Reference Malhado, Carneiro, Affonso, Souza and Sarmento2009; Braga et al., Reference Braga, Vasques, Oliveira, Sousa and Oliveira2006; Ozder et al., Reference Ozder, Sezenler, Onal and Ceyhan2009; Kubuc y Eyduran, Reference Kubuc and Eyduran2009; Darkiran et al., Reference Darkiran, Koncagul and Bingol2010; Solomon et al., Reference Abegaz, Van Wyk and Oliver2010).
La velocidad absoluta de crecimiento en el borrego Chiapas se presenta por arriba de los 50 g/día. Los machos tuvieron una velocidad absoluta de crecimiento 1.34 veces mayor que las hembras (P < 0.05) y 8 días antes (P < 0.05); los corderos provenientes de parto simple mostraron una velocidad de crecimiento similar que aquellos proveniente de parto múltiple (P > 0.05). La mayor velocidad de crecimiento se da en la fase predestete, donde el cordero es dependiente del ambiente materno dado básicamente por la producción de leche. Las bajas tasas de crecimiento observadas después del destete indican que el manejo nutricional de estos animales no es el óptimo.
La estimación de componentes de varianza para los parámetros de la función de Gompertz en este estudio para la raza Chiapas mostraron un rango entre 0.16 y 0.25. Con respecto al peso adulto o maduro (A), Stobart et al. (Reference Stobart, Bassett, Cartwright and Blackwell1986) estimaron valores de 0.57 con una edad a la madurez de cinco años en razas Rambouillet, Targhee y Columbia, superiores a lo observado en este estudio (0.21) a los dos años de edad. Lewis et al. (Reference Lewis, Emmans and Dingwall2002), utilizando animales de la raza Suffolk, estimaron una heredabilidad de 0.37 en el mismo parámetro, y Lambe et al. (Reference Lambe, Navajas, Simm and Bünger2006) estimaron heredabilidades de 0.427 con la función de Richards y 0.871 con la función de Gompertz para la raza Texel. En estudios con otras razas locales, como la Mehraban (Bathaei y Leroy, Reference Bathaei and Leroy1996), Scottish Blackface (Lambe et al., Reference Lambe, Navajas, Simm and Bünger2006) y Horro (Solomon et al., Reference Abegaz, Van Wyk and Oliver2010), los valores de heredabilidad estimados variaron entre 0.29 a 0.52.
En cuanto a la tasa de madurez (k), el valor de heredabilidad estimado en este estudio fue similar a lo reportado en razas Santa Inés y Horro (Braga et al., Reference Braga, Vasques, Oliveira, Sousa and Oliveira2006; Solomon et al., Reference Abegaz, Van Wyk and Oliver2010), mientras que Lambe et al. (Reference Lambe, Navajas, Simm and Bünger2006) estimaron una heredabilidad de 0.06 en la raza Scottish Blackface; en contraste, Bathaei and Leroy (Reference Bathaei and Leroy1996) encontraron un valor de 0.45 en la raza Mehraban Irani y Stobart et al. Reference Stobart, Bassett, Cartwright and Blackwell1986 de 0.32 en razas Rambouillet, Targhee y Columbia.
En cuanto al parámetro b, que es considerada como una constante de integración que está ligado a las condiciones de inicio de la curva (Blasco, Reference Blasco1999), en la raza Suffolk, Lewis et al. (Reference Lewis, Emmans and Dingwall2002) estimaron un valor de 0.38, superior a lo encontrado en este estudio.
La forma en el crecimiento en ovejas se modifica con la edad y su forma depende de efectos de raza y condiciones ambientales como es la disponibilidad de alimento y manejo. La función de Gompertz se ha sugerido como adecuada, cuando no existen limitantes en las condiciones ambientales (Lewis et al., Reference Lewis, Emmans and Dingwall2002).
Los resultados indican que es posible modificar a través de selección la forma de la curva Selección directa en los parámetros A o b, tendrían como resultado un incremento en el peso adulto así como en los pesos corporales al nacer e indirectamente en la producción de lana y la resistencia a parásitos (Safari and Fogarty, Reference Safari and Fogarty2003). Sin embargo, tiene el inconveniente de incrementar el intervalo generacional. La selección sobre la tasa de madurez (k) o la velocidad de crecimiento, podría mejorar peso adulto, aunque habría que evaluar su impacto en la eficiencia dentro de este sistema de producción de los Altos de Chiapas.
Conclusiones
El borrego de la raza Chiapas muestra una curva de crecimiento lento, el cual puede atribuirse a la adaptación al medio ambiente.
La variabilidad genética aditiva encontrada a partir de la función de Gompertz en el crecimiento de esta raza de ovinos Chiapas, indica que es posible modificar la curva de crecimiento del borrego Chiapas pudiendo ser utilizada la estimación de velocidad o crecimiento máximo absoluto como criterio de selección.
Agradecimientos
Se agradece al Consejo Nacional de Ciencia y Tecnología (CONACYT-México) por la beca otorgada a la primera autora para realizar estudios de Maestría en Ciencias (FMVZ-UNAM); Proyectos UNAM-PAPIIT IN207707-3, UNAM-PAPIIT IN205710-3 y SAGARPA-CONACYT 2004-CO1-111/A1.
Esta investigación fue posible gracias al convenio de colaboración entre la Facultad de Medicina Veterinaria y Zootecnia de la Universidad Nacional Autónoma de México y el Centro Universitario de Investigación y Transferencia de Tecnología de la Universidad Autónoma de Chiapas.
Declaración de interés
Los autores declaran que no existen conflictos de interés en la presentación de este artículo.