Introduction
Les problèmes phytosanitaires de l'olivier constituent le facteur principal de la faiblesse de la productivité de cette culture et les cochenilles tiennent une place importante parmi les bio-agresseurs de cette culture, tant dans son aire de répartition originelle (méditerranéenne) (Leonardi Reference Leonardi1920; Demirozer et al. Reference Demirozer, Kaydan, Karacer and Ben-Dov2009) que dans ses nouvelles régions d'implantation (Boyce Reference Boyce1952; Aleksidze Reference Aleksidze1994; Daane et al. Reference Daane, Rice and Zalon2005; Taylor et Burt Reference Taylor and Burt2007). En Algérie, ce sont principalement la cochenille noire Saissetia oleae (Olivier) (Hemiptera : Coccidae), la cochenille farineuse Pollinia pollini (Costa) (Hemiptera : Coccidae) ainsi que la cochenille violette de l'olivier Parlatoria oleae (Colvée) (Hemiptera : Diaspididae) qui représentent les espèces nuisibles les plus communes et les plus redoutables de l'olivier (Ayoutantis Reference Ayoutantis1962; Michelakis Reference Michelakis1990; Katsoyannos Reference Katsoyannos1992; Moghadd et Tavalolim Reference Moghaddam and Tavaloli2010; Sema et Selma Reference Sema and Selma2010).
Parlatoria oleae, dont l'hôte primaire est l'olivier, a été décrite par Colvée, à partir d’échantillons en provenance de Valence en Espagne (Balachowsky Reference Balachowsky1953) et est signalée actuellement en Europe centrale, en Asie, dans le bassin méditerranéen et aux États-Unis (Applebaum et Rosen Reference Applebaum and Rosen1964; Kozar Reference Kozar1990; ScaleNet 2012). En Algérie, l'espèce a été signalée pour la première fois à Constantine, dans le nord-est, en 1896 par Eaton, puis à Alger, la capitale, en 1911 (Balachowsky Reference Balachowsky1932).
Plusieurs études ont été réalisées sur la biologie et la dynamique des populations de la cochenille violette, notamment en Azerbaidjan, en Grèce, en Italie, aux États-Unis d'Amérique, en Égypte et en Israël (Bodenheimer Reference Bodenheimer1951; McKenzie Reference McKenzie1952; Habib et al. Reference Habib, Salama and Amin1969; Imamkuliyev Reference Imamkuliev1969; Argyriou et Kourmadas Reference Argyriou and Kourmadas1979; Laccone Reference Laccone1981; Holgado et Gasparini Reference Holgado and Gasparini2008). Ces travaux notent que ce bio-agresseur présente une à quatre générations par an, dépendant des conditions climatiques, en particulier des températures.
Sur le littoral méditerranéen algérien, dans un bioclimat subhumide à humide, la cochenille violette manifeste deux générations par année (Biche et Sellami Reference Biche and Sellami2011). La région des hauts plateaux de l'Est algérien est caractérisée par un climat semi-aride à aride présentant d’énormes fluctuations tant d'un mois à un autre que d'une année à une autre. Ceci serait à l'origine d'un cycle biologique différent et d'une dynamique des populations variables à l'instar de ces variations climatiques intra et interannuelles.
Le but de cette étude est de mettre la lumière sur les particularités du cycle de développement de la cochenille violette et de la dynamique de ses populations au cours de ses différents stades de développement dans une zone d’écotone située en charnière entre les étages bioclimatiques semi-aride et aride (Stewart Reference Stewart1969).
Matériel et méthodes
Présentation de la région et du verger d’étude
Ce travail a été effectué dans la région d'Ain Touta (35°23′N, 5°53′E), petite ville des hauts plateaux de l'Est algérien anciennement appelée Mac-Mahon. C'est une région située au nord-est de l'Algérie, à 35 km au sud-ouest de la ville de Batna (300,000 habitants) et à une altitude moyenne de 960 m. Sur une période de 25 ans (1985 à 2009), les précipitations annuelles moyennes étaient de l'ordre de 246,96 ± 96,31 mm. Toutefois, ces valeurs pluviométriques ont connu d’énormes fluctuations d'une année à une autre. En 2009, la région a reçu 438 mm de précipitations et 334 mm en 2010. Pour la même période 1985–2009, les températures minimales et maximales ont été enregistrées respectivement en janvier (−0,38 ± 2,52 °C) et en juillet (33,5 ± 3,12 °C) pour une moyenne annuelle de 14,10 ± 1,31 °C. Les températures moyennes en 2009 (15,11 ± 7,84 °C) et en 2010 (15,73 ± 7,87 °C) étaient relativement plus élevées. En 2009 et 2010, le mois le plus froid correspondait respectivement au mois de février (−0,17 ± 2,42 °C) et au mois de décembre (0,29 ± 2,17 °C). Le mois le plus chaud correspondait au mois de juillet en 2009 (38,25 ± 2,18 °C) et en 2010 (37,04 ± 2,14 °C).
Le verger d’étude était une oliveraie traditionnelle (sans entretien particulier en termes d'irrigation, de taille, de traitements phytosanitaires et de fertilisations) caractérisée par la variété sigoise, couvrant une superficie de 1 ha, comprenant 81 arbres âgés de 40 ans. La hauteur des arbres variait entre 3 et 4 m avec des espaces interlignes de 10 m. Ce verger était entouré par une ligne de brise-vent composé de cyprès vert Cupressus sempervirens Linnaeus (Cupressaceae).
Méthode d’échantillonnage
Lors du suivi des populations de P. oleae, de janvier 2009 à décembre 2010, des relevés ont été effectués avec une fréquence de trois relevés par mois comme suggéré par Vasseur et Schvester (Reference Vasseur and Schvester1957), Benassy (Reference Benassy1961) et Fabres (Reference Fabres1979). Lors de chaque relevé, l'arbre sur lequel a été effectué le prélèvement du matériel végétal à étudier a été choisi aléatoirement. Ce dernier regroupait un rameau de 10 à 20 cm de long, deux feuilles adultes (feuilles de plus de 2 ans récoltées au milieu ou à la base du rameau) et deux fruits sur chacune des 4 orientations cardinales de l'arbre ainsi qu'en position centrale. Les échantillons ainsi prélevés, représentant un total de 25 organes, ont été placés dans des sachets en papier sur lesquels étaient mentionnées les coordonnées du prélèvement (date et direction). Des comptages individuels de cochenilles ont été réalisés au laboratoire à l'aide d'une loupe binoculaire au grossissement x40. Les cochenilles décomptées ont été classées en individus vivants et morts (individus complètement desséchés) suivant leurs stades d’évolution et leur sexe : œuf; L1 (1er stade larvaire mobile et fixe); L2 (2ème stade larvaire mâle et femelle); pro-nymphes et nymphes; mâle adulte et femelle adulte. Le bouclier des femelles adultes a été soulevé à l'aide d'une épingle entomologique afin de dénombrer le nombre d’œufs portés. La taille de ponte moyenne a alors été calculée sur l'ensemble des pontes dénombrées sur les rameaux, les feuilles et les fruits échantillonnés lors de chaque relevé (Benassy Reference Benassy1961; Fabres Reference Fabres1979).
Analyse statistique
La variation de l'abondance relative (nombre d'individus) des différents stades de développement de la cochenille violette a été testée à l'aide d'une analyse de variance (ANOVA) suivant l'effet des facteurs “mois”, “génération” et “année”. Les interactions des facteurs ont été également intégrées dans l'analyse pour chaque stade biologique. L'effet des facteurs a été évalué à l'aide des tests de type III.
Résultats
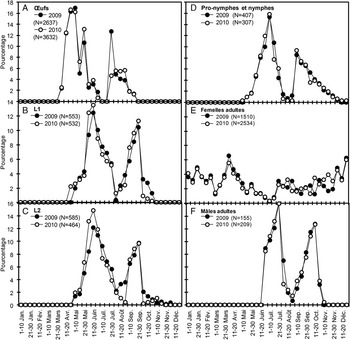
Au cours des deux années d’étude, nous avons relevé l'apparition de deux vols représentant deux générations par année. La première génération s'est étalée sur 122 jours (début avril - fin juillet) et la deuxième génération, de 132 jours, a débuté à la fin juillet et s'est terminé à la fin novembre (Fig. 1).
Evolution des effectifs des différents stades de développement de P. oleae au cours des années 2009 et 2010 dans la région d'Ain Touta (Algérie). (A): Œufs; (B): L1; (C): L2; (D): Pro-nymphes et nymphes; (E): Femelles adultes; (F): Mâles adultes.

La ponte printanière (1ère génération) en 2009 et en 2010 s'est étalée sur 91 jours. Elle a débuté à la première décade du mois d'avril et s'est poursuivi jusqu’à la dernière décade du mois de juin. La ponte moyenne de cette génération était de 10,05 ± 1,96 œufs/femelle pour l'année 2009 et de 10,47 ± 1,15 œufs/femelle pour l'année 2010. La ponte estivale (2ème génération) s'est étalée sur 62 jours, de la fin juillet jusqu’à la fin septembre. Les valeurs enregistrées de la ponte moyenne pour cette deuxième génération étaient moins élevées par rapport à la première avec 9,9 ± 1,69 et 9,16 ± 2,05 œufs/femelle, respectivement, pour 2009 et 2010 (Fig. 1A).
Le stade L1 s'est manifesté, pour la première génération en 2009, entre la première décade du mois de mai jusqu’à la fin juillet (92 jours) avec un effectif total de 342 individus dénombrés. En 2010, les L1 sont apparus à la dernière décade d'avril jusqu’à la fin juillet (101 jours) avec un effectif total de 346 individus recensés. La seconde génération a été presque similaire au cours des deux années d’étude. Elle s'est étalée sur 92 jours avec un effectif total de 211 individus en 2009 et 186 individus en 2010 (Fig. 1B).
Le stade L2 de la première génération a été observé du début mai jusqu'au début du mois d'août avec une même durée de 102 jours pour les deux années d’étude et un effectif total de 371 individus en 2009 et de 326 en 2010. Les L2 de la deuxième génération ont débuté à la dernière décade d'août et se sont étalés jusqu’à la fin novembre (92 jours) avec un effectif total de 214 individus en 2009. En 2010, les L2 n'ont été observés que sur une durée de 81 jours avec des effectifs moins importants de 138 individus (Fig. 1C).
Les pro-nymphes et nymphes ont été observées dès la fin du mois de mai jusqu'au mois de juillet pour la première génération (92 en 2009 et 102 jours en 2010) avec respectivement 235 et 181 individus. Lors de la deuxième génération, les pro-nymphes et nymphes ont été observées sur une durée plus longue; 112 jours pour les deux années (à partir de la deuxième décade de septembre) avec des effectifs totaux de 172 individus en 2009 et de 126 en 2010 (Fig. 1D).
Les femelles adultes ont été observées du début jusqu’à la fin du suivi des populations, tous les mois des deux années d’étude avec un total de 1510 individus en 2009 et de 2534 en 2010 (Fig. 1E). Toutefois, les effectifs de ce stade ont connu d’énormes fluctuations, avec notamment deux principaux pics enregistrés durant la première décade du mois d'avril et à la fin du mois de décembre.
Le vol des mâles de la première génération s'est poursuivi le long des mois de juin et de juillet (61 jours) pour les deux années d’étude avec des effectifs totaux respectifs de 88 et 115 individus pour 2009 et 2010. Lors de la deuxième génération, l'envol des mâles s'est fait du début du mois de septembre jusqu’à la fin d'octobre (61 jours) avec des effectifs totaux de 67 individus en 2009 et de 94 individus en 2010 (Fig. 1F).
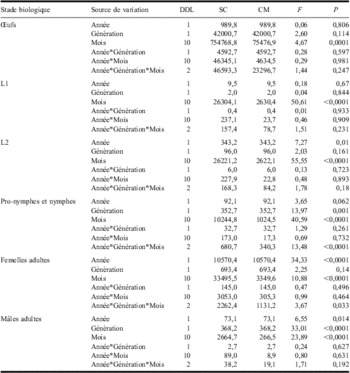
La variation des effectifs, entre les mois des deux années du suivi, est statistiquement très hautement significative pour tous les stades de développement de l'insecte (P < 0,0001). En fonction des générations, la variation du nombre d'individus est très hautement significative chez les pro-nymphes et nymphes (P < 0,0001) et hautement significative chez les mâles adultes (P < 0,001). Entre les années, le modèle statistique réalisé montre une variation significative pour les femelles adultes avec une variation très hautement significative (P < 0,0001) et pour les stades L2 et celui des mâles adultes où la variation est significative (P < 0,01). À l'exception des pro-nymphes et nymphes, où l'interaction “Année*Génération*Mois” a révélé une très haute signification (P < 0,0001), la variation des effectifs de P. oleae est statistiquement non significative en fonction de l'interaction des trois facteurs “Année*Génération*Mois” pour le reste des stades de développements (Tableau 1).
Résultats de l'analyse de la variance (ANOVA) testant l'effet des facteurs ‘année’, ‘génération’, ‘mois’ et de leurs interactions sur l’évolution des effectifs des différents stades de développement de P. oleae dans la région d'Ain Touta (Algérie).

DDL: degré de liberté; SC: somme des carrés, CM: Carré moyen; F: Fisher; P: probabilité de Fisher
Discussions
Dans la région d'Ain Touta, la cochenille violette de l'olivier présente deux générations annuelles: une génération printanière et une automnale. Un cycle presque identique s'observe en Algérie dans la région humide de Cap-Djinet sur le littoral méditerranéen, avec une différence dans les périodes d'apparition des différentes formes larvaires qui sont plus précoces sur le littoral (Biche et Sellami Reference Biche and Sellami2011). La différence majeure s'observe en première génération qui commence en début mars à Cap-Djinet, alors qu'elle ne débute à Ain Touta qu’à la première décade du mois d'avril, avec plus d'un mois de retard.
La cochenille violette présente une à quatre générations par année suivant les régions. Dans la plupart des cas, l'espèce se développe en deux générations, l'une printanière et l'autre automnale, bien que des cas de trois et de quatre générations ne soient pas rares. En Azerbaidjan, Imamkuliyev (Reference Imamkuliev1969) note une génération par année. En Grèce (Argyriou et Kourmadas Reference Argyriou and Kourmadas1979), aux États-Unis (McKenzie Reference McKenzie1952), en Italie (Laccone Reference Laccone1981) et au Maroc (Benassy Reference Benassy1967), la cochenille violette présente deux générations par an, une génération printanière et une automnale. Par contre, en Israël (Applebaum et Rosen Reference Applebaum and Rosen1964; Nestel et al. Reference Nestel, Binhassi, Reuveny, Oppenheim and Rosen1995), l'espèce peut avoir deux à trois générations, trois en Égypte (Habib et al. Reference Habib, Salama and Amin1969) et deux à quatre générations en Argentine (Holgado et Gasparini Reference Holgado and Gasparini2008).
Le cycle biologique de P. oleae dépend des conditions climatiques de la région qu'elle colonise. La vitesse de développement de l'espèce est proportionnelle aux sommes de températures cumulées au dessus de 10 °C. Cette mesure, décrite par Bodenheimer (Reference Bodenheimer1951), permet de déterminer le nombre de générations de la cochenille violette par année, dans la mesure où chaque génération exigerait un total d'environ 1300 degrés-jours. La région d'Ain Touta enregistre un total de 2448 degrés-jours en 2009 et 2387 degrés-jours en 2010. Ceci équivaudrait à deux générations. Biche et Sellami (Reference Biche and Sellami2011) ont noté, dans la zone du littoral Algérien, respectivement 2491 et 2649 degrés-jours pour les années 2001 et 2002, qui correspondent également à deux générations pour les deux années d’étude.
La période de ponte de la cochenille violette débute avec l’élévation des températures en début de printemps (10 à 12 °C), coïncidant avec la poussée de la sève et l'apparition des nouvelles pousses de l'olivier (Argyriou et Kourmadas Reference Argyriou and Kourmadas1979). Ainsi, à Cap-Djinet, Biche et Sellami (Reference Biche and Sellami2011) rapportent que la ponte débute au début du mois de mars et s'achève vers la mi-juin. En revanche, dans la région d'Ain Touta, la ponte débute un peu plus tard et s'achève aussi tardivement, notamment pour la première génération avec un décalage d'un mois entre les deux régions. Cependant, les pontes automnales se déroulent sur une période plus courte, ce qui serait dû aux hautes températures estivales comprises entre 32 °C et 38 °C. En effet, Habib et al. (Reference Habib, Salama and Amin1969) affirment que la durée de la préoviposition et des périodes d'oviposition diminuent avec l’élévation de la température.
La ponte moyenne de la cochenille violette est plus faible à Ain Touta que dans d'autres régions. Biche et Sellami (Reference Biche and Sellami2011) enregistrent une moyenne de 12,36 à 14,09 œufs par femelle. Selon Argyrion et Kouramadas (1979), la moyenne d’œufs par femelle varie de 20 à 42 œufs en Grèce. En Californie, aux États-Unis d'Amérique, elle est de 32 œufs (Huffaker et al. Reference Huffaker, Kennett and Finney1962), alors qu'en Égypte, elle est de 65 œufs (Ezzat Reference Ezzat1957).
Par ailleurs, la dynamique des populations connaît des fluctuations importantes d'une génération à une autre et d'une année à une autre, avec des différences notées entre les divers stades de développement. Les effectifs recensés lors de la première génération sont généralement plus importants par rapport à ceux de la deuxième. Cette différence serait liée aux températures plus élevées enregistrées surtout en période estivale (températures maximales de 38,3 °C en juillet 2009 et 37,4 °C en juillet 2010). Des résultats similaires sont rapportés pour la région du Cap-Djinet par Biche et Sellami (Reference Biche and Sellami2011). L'impact négatif de l’élévation de la température sur la dynamique des populations de P. oleae a également été signalé par Habib et al. (Reference Habib, Salama and Amin1969) en Égypte.
Du début novembre à la fin mars, alors que la majorité des stades de vie de P. oleae sont pratiquement absents, des larves de L2 et des pro-nymphes et nymphes subsistent, mais en faibles effectifs. Seules les femelles adultes sont observées avec des effectifs importants au cours de cette période qui correspondrait à la phase d'hivernation. Selon Biche et Sellami (Reference Biche and Sellami2011), l'espèce hiverne à Cap-Djinet à l’état de femelles adultes et rarement en femelles immatures. L'hivernation peut également toucher les larves du deuxième stade femelle mais en très faible nombre, comme l'ont signalé Argyriou et Kourmadas (Reference Argyriou and Kourmadas1979) en Grèce et Laccone (Reference Laccone1981) en Italie.
Les résultats obtenus dans ce travail dénotent de l’élasticité écologique de P. oleae vis-à-vis des facteurs environnementaux de la région qu'elle colonise, des paramètres climatiques en particulier. En zones arides, des particularités se manifestent au niveau de la phénologie des différentes phases de développement ainsi qu'au niveau de la dynamique de ces divers stades.
Ceci aurait des incidences concrètes sur les programmes de prévention et de lutte contre cette espèce ravageuse, notamment en identifiant les périodes les plus appropriées pour le déclenchement des opérations de lutte.
Remerciements
Nous tenons à remercier le staff de la direction générale de l'Institut National de la Protection des Végétaux (INPV Alger) et celui de la Station régionale d'Ain Touta pour leur précieuse aide. Mme Daniel Matile-Ferrero du muséum d'histoire naturelle de Paris est vivement remerciée pour avoir commenté une version antérieure de ce manuscrit.