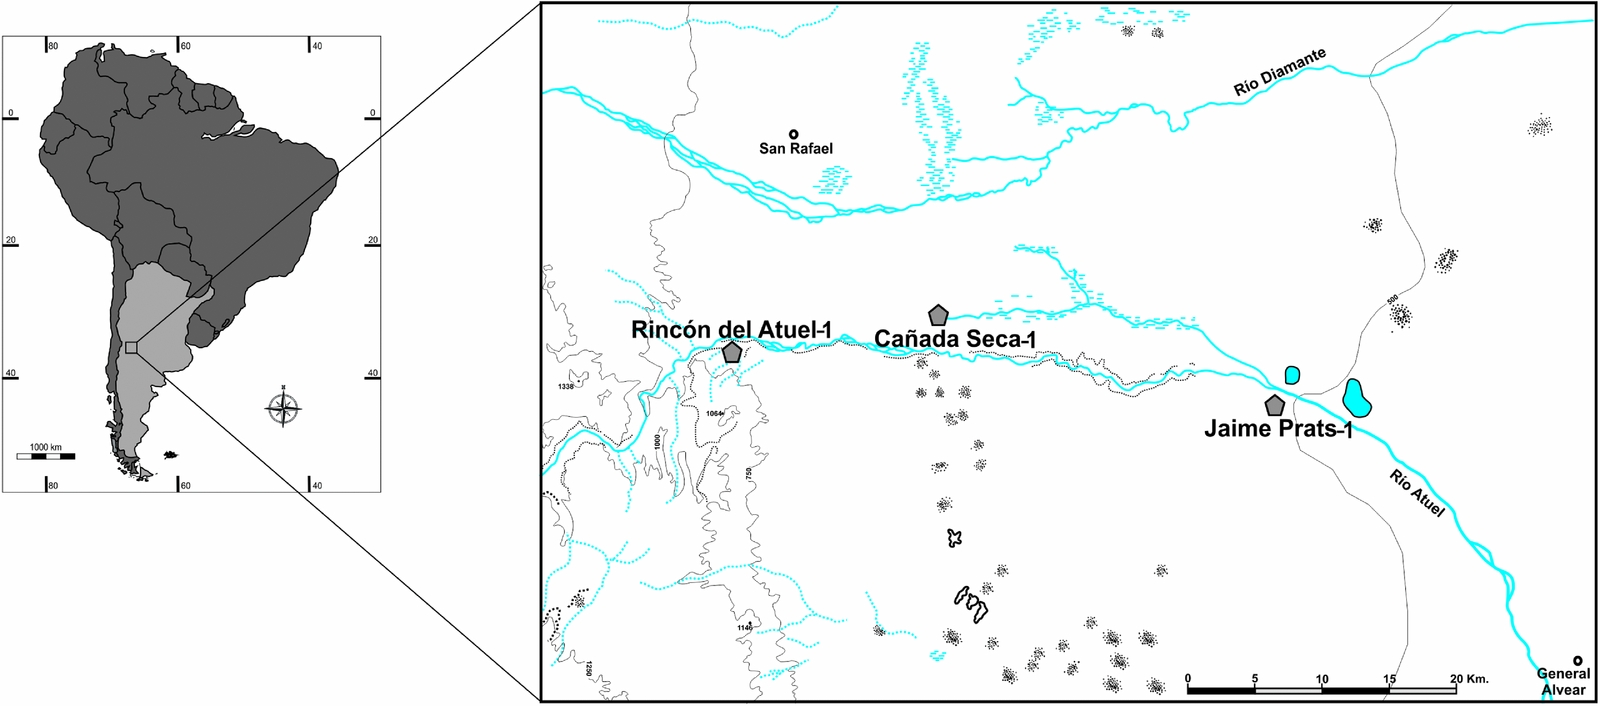


La incorporación de plantas domésticas entre poblaciones humanas ha sido clásicamente asociada a la adopción de la agricultura y a la disminución de la movilidad (Cohen Reference Cohen1977). Estudios recientes muestran que la transición no necesariamente fue abrupta, lineal e irreversible. También señalan que el registro de plantas domésticas no implica agricultura y que hay un rango de estrategias diversas entre los extremos de cazadores-recolectores y productores (Smith Reference Smith, Feinman and Douglas Price2001). Estas propuestas surgieron en áreas vinculadas al origen de la domesticación, y enfocadas en las causas de la misma. Sin embargo, se ha puesto poco esfuerzo en entender la forma y causa de su dispersión. El registro arqueológico del centro-occidente argentino permite profundizar el entendimiento de este proceso asociado a la introducción de la producción de alimentos. Esta región es presentada como el límite meridional andino en el registro de cultígenos prehispánicos en América (Gil Reference Gil1998; Gil et al. Reference Gil, Giardina, Neme and Ugan2014a; Lagiglia Reference Lagiglia1982). Específicamente, el valle del Río Atuel (Figura 1) fue propuesto como el lugar hasta el cual llegaron los primeros asentamientos de agricultores alrededor de 2200 años aP (Lagiglia Reference Lagiglia1982). La cultura Atuel II habría introducido la agricultura y como tal se habría asentado en el mencionado valle hasta hace unos 1800 años aP (Lagiglia Reference Lagiglia1982). Otras investigaciones señalaron que los cultígenos en ese momento no fueron elementos importantes en la dieta humana, aunque podrían haber tenido un valor simbólico (Gil Reference Gil2003). El primer modelo arqueológico (Lagiglia Reference Lagiglia1982) sobre el desarrollo cultural de este valle no explicitó qué estrategias de subsistencia se sucedieron entre Atuel II (2200 a 1800 años aP) y Atuel I (300 años aP) dejando de ese modo unos 1.500 años sin asignación explícita a contextos arqueológicos, ni explicaciones de los procesos ocurridos durante ese tiempo. Por eso, en base a los hallazgos, se asumió para ese lapso la presencia de ocupaciones agroalfareras de tipo Agrelo y Viluco provenientes del norte de Mendoza (Lagiglia Reference Lagiglia, Gil and Neme2002). La situación e importancia posterior a esta fase inicial de introducción de cultígenos no ha sido abordada explícitamente y aunque se asumió un incremento de los mismos en la dieta, para épocas históricas se han descripto ocupaciones de cazadores-recolectores sin mencionarse el consumo de plantas domésticas. Cuán significativos fueron los recursos vegetales domésticos en la dieta humana, y cuán estables fueron las estrategias y organización en esta zona de frontera, son los temas centrales abordados en este trabajo. Aquí se indaga el tema usando principalmente información bioarqueológica. Se seleccionaron tres sitos con entierros humanos (Jaime Prats-1, Rincón del Atuel-1 y Cañada Seca-1; Figura 1), próximos tanto en el espacio (todos en distancia inferiores a 40 km), así como en el tiempo (entre ca. 2000 y 1500 años aP). Se presenta un análisis de la variación isotópica de 13C, 15N y 18O para discutir dieta y movilidad, así como también de la variación morfológica craneofacial y dental. Finalmente, se evalúa la asociación entre la información isotópica y morfológica mediante regresiones espaciales.
Valle medio del Río Atuel y ubicación de los sitios arqueológicos estudiados.

Cultígenos y Estrategias Humanas en los Límites Prehispánicos de la Producción
El centro-occidente argentino, definido como una unidad espacial heurística, es considerado, junto a Chile central, el límite meridional de la agricultura andina americana. Específicamente, en el sector oriental los ríos Diamante y Atuel (aproximadamente 34°30’ S; Figura 1) habrían funcionado durante los últimos 2.000 años como la frontera sur de la agricultura prehispánica (Gil y Neme Reference Gil, Neme, Gascón and José Ots2013; Gil et al. Reference Gil, Neme, Ugan and Tykot2014b). Hacia el sur de dichos ríos la caza y recolección continuó como forma de vida, incluso hasta el siglo XIX (Gil y Neme Reference Gil, Neme, Gascón and José Ots2013).
Lagiglia (Reference Lagiglia1982) planteó que los primeros agricultores se establecieron en este valle sobre la base de grupos de familias que arribaron trayendo el conocimiento y los elementos para esta nueva forma de vida. Posteriormente, denominó a ese proceso como “exploradores y colonizadores agrícolas iniciales”. Estas poblaciones fueron caracterizadas como de baja densidad demográfica (Lagiglia Reference Lagiglia, Berberián and Nielsen2001). Para Lagiglia (Reference Lagiglia, Berberián and Nielsen2001) el posterior desarrollo aldeano y la incorporación de la tecnología cerámica se asociarían a incrementos demográficos de estos grupos.
Posteriores investigaciones en la región postularon el inicio de importantes cambios en la organización humana en torno a los 2000 años aP (Gil et al. Reference Gil, Giardina, Neme and Ugan2014a; Lagiglia Reference Lagiglia1982; Neme Reference Neme2007; Neme y Gil Reference Neme and Gil2008). Gil y colaboradores (Reference Gil, Giardina, Neme and Ugan2014a) señalaron que los primeros cultígenos de la región, según fechas radiocarbónicas directas, se registran entre 2200 y 2050 años 14C aP, en la Gruta del Indio. Esos primeros cultígenos no habrían tenido una contribución importante en la dieta, sino más bien habrían portado un rol simbólico (Gil Reference Gil2003). Esto se sumó a la propuesta que, en zonas de transición entre caza-recolección y producción, la sola presencia de cultígenos no necesariamente implica agricultura, y que hay distintos mecanismos que explican el registro de plantas domésticas en una región, incluyendo tanto intercambio con vecinos productores como la producción local (Gil Reference Gil1998). El registro arqueológico posterior a la denominada “fase productora inicial” fue atribuido a poblaciones agroalfareras (Lagiglia Reference Lagiglia, Gil and Neme2002), si bien se propuso que previo al contacto hispano-indígena las mismas habrían sido cazadoras-recolectoras. Esta interesante reversión temporal en los patrones de subsistencia no ha sido estudiada en detalle, como tampoco el nivel de agricultura propuesto para las ocupaciones posteriores a la fase inicial. Las evidencias arqueobotánicas sugieren que el Valle del Atuel habría sido el sector más meridional con relativamente alta densidad y diversidad de plantas domésticas prehispánicas (Gil et al. Reference Gil, Giardina, Neme and Ugan2014a).
Ambiente, Recursos y Ecología Isotópica en el Atuel Medio
La cuenca media del Río Atuel se localiza entre aproximadamente 35°4’ S, 69°36’ O y 35°16’ S, 67°31’ O (Figura 1). Fitogeográficamente, este tramo del río se desarrolla principalmente en el Monte, con un régimen de precipitación veraniego y un promedio de 250 mm anuales. Estudios arqueobotánicos destacan entre las especies silvestres el registro de Prosopis sp. y, en menor abundancia, Geoffroea decorticans y otros taxones, aunque con una notoria subrepresentación (Giardina et al. Reference Giardina, Corbat, Peralta, Cochero, Franchetti and Salgán2015; Llano y Andreoni Reference Llano, Andreoni, Neme and Gil2012). Entre las plantas domésticas, los estudios registran en forma más frecuente y abundante Zea mays, siguiendo Cucurbita sp., Phaseolus sp. y Chenopodium quinoa (Gil et al. Reference Gil, Neme, Ugan and Tykot2014b). La información zooarqueológica señala una amplia diversidad taxonómica para el Holoceno tardío (Giardina et al. Reference Giardina, Corbat, Peralta, Cochero, Franchetti and Salgán2015; Gil y Neme Reference Gil, Neme, Zárate, Gil and Neme2010). Se destacan dasipódidos, huevos de reídos, peces y roedores, aunque estos últimos sin evidencias de consumo (Fernández Reference Fernández2012), y una baja representación de reídos y camélidos.
La ecología isotópica, basada sobre recursos de la región, ofrece valores para los recursos más significativos en el registro arqueológico y en el ecosistema actual, incluyendo peces, camélidos, maíz, dasipódidos, algarrobo y puma (ver debajo). Los trabajos de Gil y colaboradores (Reference Gil, Neme, Gascón and José Ots2013) y Ugan y colaboradores (Reference Ugan, Neme, Gil, Coltrain, Tykot and Novellino2012) presentan el patrón de distribución espacial isotópica (δ18O) de las aguas para la región, marco de referencia necesario para entender los resultados de este isótopo en muestras óseas humanas. Estos datos se agrupan diferencialmente en cuatro áreas geográficas: alta cordillera de los Andes; piedemonte andino; ríos en tierras bajas (todos con aguas predominantemente de origen andino, pero con diferencia en la altitud); y un cuarto grupo constituido por Payunia-Nevado que incluye aguas de arroyos, vertientes y lagos de probable origen extra-andino (Texto Suplementario 1).
Sitios y Contextos en el Atuel Medio
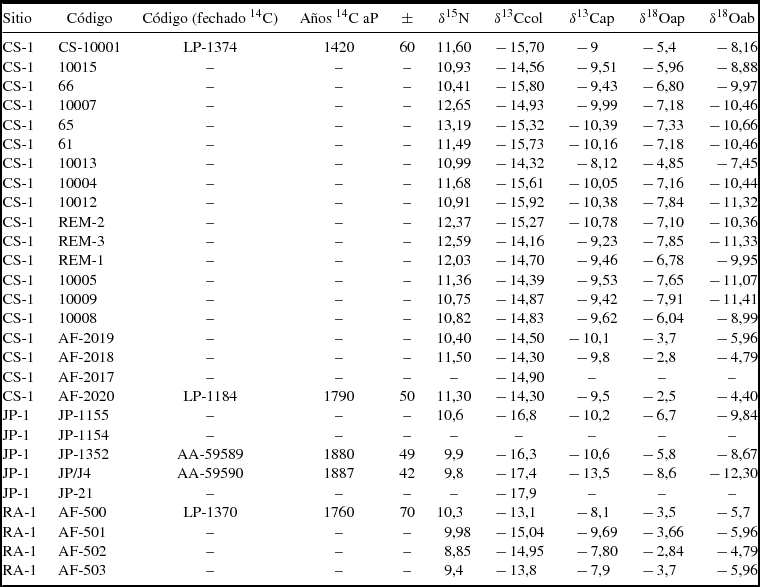
El trabajo compara y articula los resultados generados a partir del estudio de los restos óseos humanos provenientes de los sitios Rincón del Atuel-1 (RA-1), Cañada Seca-1 (CS-1) y Jaime Prats-1 (JP-1; Figura 1 y Tabla Suplementaria 1). El sitio RA-1 se emplaza sobre una terraza aluvial (34°45’31” S, 68°22’14” O, a 747 m snm; Figura 1; Gil et al. Reference Gil, Neme, Hernández, Novellino, Giardina, Salgán, Tucker and Albarrán2008). Registra ocupaciones humanas entre los ca. 1700–1000 años aP (Gil et al. Reference Gil, Neme, Hernández, Novellino, Giardina, Salgán, Tucker and Albarrán2008). Este registro muestra dos unidades ocupacionales diferentes: una entre aproximadamente 1700–1500 años aP y otra entre 1500–1000 años aP. Se recuperaron cuatro individuos, todos ellos asignados a la ocupación más antigua. Dos individuos se encontraban enterrados en forma primaria, uno al lado del otro en forma casi paralela. Los otros dos se encontraban al lado de los anteriores, pero dispuestos como entierros secundarios (Gil et al. Reference Gil, Neme, Hernández, Novellino, Giardina, Salgán, Tucker and Albarrán2008). Junto con el material óseo humano se hallaron dos puntas de hueso como acompañamiento. Aunque se detectaron ocupaciones asociadas a contextos domésticos en las inmediaciones, estas no estaban vinculadas al evento de entierro. Un fechado radiocarbónico señala para este enterratorio una edad de 1760 ± 70 14C aP (Tabla 1; Gil et al. Reference Gil, Neme, Hernández, Novellino, Giardina, Salgán, Tucker and Albarrán2008: Tabla 1).
Especímenes Óseos Humanos Adultos Analizados y sus Respectivos Isótopos (ẟ13C, ẟ15N, ẟ18O).

El sitio CS-1 se emplaza en el valle medio del Río Atuel (34°45’2.6’’ S, 69°1’18.3’’ O, a 596 m snm; Figura 1). Recientes análisis han definido a CS-1 como un enterratorio múltiple mezclado, donde la muestra se compone principalmente de elementos óseos humanos aislados semejante a un osario de tipo secundario (Peralta Reference Peralta2015). Se obtuvo un NMI de 23 individuos, que incluye adultos, juveniles y subadultos. En este sitio no se hallaron contextos domésticos, quedando su funcionalidad restringida a la funebria. Acompañando los restos humanos se hallaron adornos (cuentas de turquesa y tembetás) y ocho puntas de proyectil. Las fechas radiocarbónicas de CS-1 dieron una cronología que se extiende desde 1800 a 1400 años 14C aP (Tabla 1).
El sitio JP-1, excavado en 1988 (Lagiglia Reference Lagiglia1994), se emplaza próximo a la barranca del Río Atuel, en las proximidades de la localidad homónima (Figura 1). Se calculó un NMI de 125 individuos, de los cuales cuatro se hallaron en posición primaria (Lagiglia Reference Lagiglia1994). El resto de los individuos se encontraban mezclados y disociados, similar al contexto observado en CS-1. Este sitio también tiene una funcionalidad exclusiva de funebria, no asociada con ocupaciones domésticas. Se encontraron tres puntas de proyectil como material cultural asociado a los restos óseos humanos. Los fechados ubican estos restos entre ca. 2050 y 1750 años 14C aP (Tabla 1; Gil y Neme Reference Gil, Neme, Zárate, Gil and Neme2010).
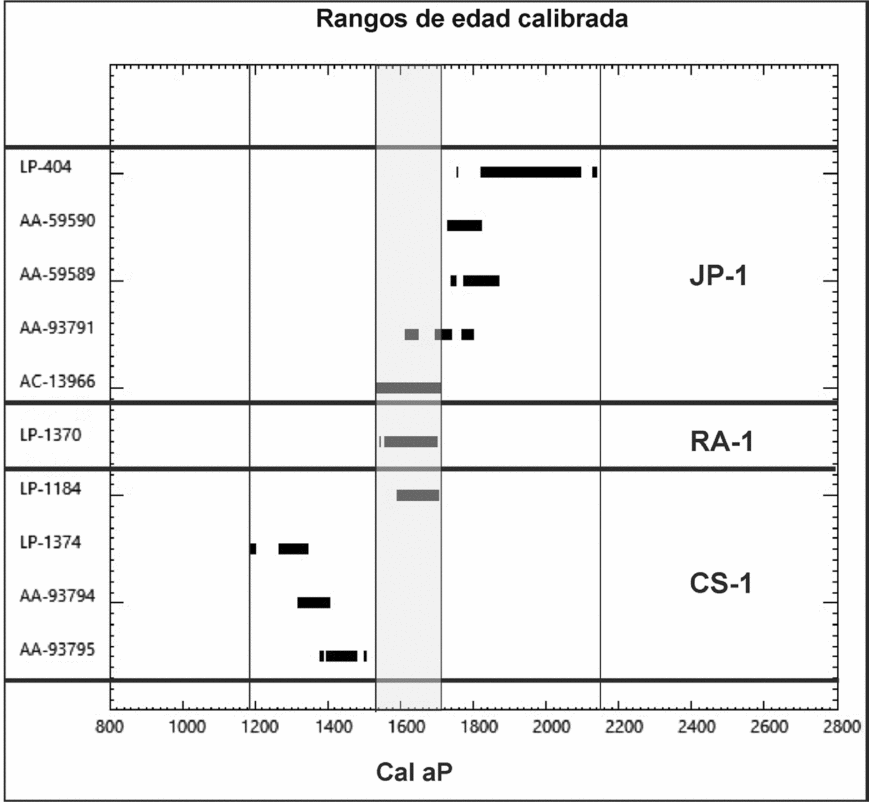
La Figura 2 señala comparativamente la estructura cronológica en años calibrados de los registros de JP-1, RA-1 y CS-1 (Tabla 1; Gil y Neme Reference Gil, Neme, Zárate, Gil and Neme2010). El más antiguo, JP-1, tiene una fecha promedio de 1836 ± 24 aP; los rangos 1 δ de los 5 fechados procedentes del sitio están comprendidos entre 2145 y 1536 años cal aP. Este registro es seguido temporalmente por RA-1, cuya única fecha es 1760 ± 70 aP, con rango 1 δ entre 1707 y 1545 años cal aP. Finalmente, CS-1 tiene fecha media de 1594 ± 24 aP; los rangos 1 δ de los 4 fechados procedentes del sitio están comprendidos entre 1701 y 1189 años cal aP. Con base en la suma de probabilidades para cada sitio, los rangos 1 δ de conjuntos se encuentran entre 1869 años cal aP y 1189 años cal aP, indicando un rango de ocupaciones de 680 años. Considerando las fechas individualmente, el rango va desde 2145 a 1189 años cal aP, lo que implica un lapso ocupacional de 956 años. También usando un desvío estándar se observa que los tres conjuntos podrían tener entierros contemporáneos, principalmente entre 1710 años cal aP y 1593 años cal aP, durante aproximadamente 117 años.
Fechados radiocarbónicos calibrados con CALIB 7.1 (Stuiver et al. Reference Stuiver, Reimer and Reimer2017) sobre restos humanos de los sitios JP-1, RA-1 y CS-1. El sector en gris indica el sobrelapamiento temporal máximo de los tres sitios.

Aspectos Metodológicos
Isótopos Estables (13C, 15N y 18O)
Se presentan resultados de los análisis de isótopos estables de 13C y 15N basados en el procesamiento de la fracción orgánica (colágeno) y de 13C y 18O obtenidos de la fracción inorgánica (hidroxiapatita o apatita). Los valores δ13C y δ18O se calcularon utilizando el estándar V-PDB, mientras que el δ15N se calculó con el estándar AIR. El colágeno y la hidroxiapatita de material óseo se obtuvieron procesando las muestras en el Laboratorio de Paleoecología Humana del IANIGLA-Grupo Vinculado San Rafael, siguiendo el protocolo descripto en Coltrain y Leavitt (Reference Coltrain and Leavitt2002). Las mediciones de los isótopos estables de δ13C, δ15N y δ18O se efectuaron en SIRFER de la University of Utah (código MSR) y en University of South Florida (código USF). Para evaluar la integridad de las muestras se analizó en cada una de ellas la relación C:N siguiendo los criterios de Ambrose (Reference Ambrose1990), aceptándose aquellas cuyos valores estén comprendidos entre 2,9 y 3,6. Para el fraccionamiento trófico se utiliza para el δ15N un enriquecimiento de 4‰, y para δ13C se estima un enriquecimiento del colágeno óseo respecto al recurso de 1‰ (Ambrose Reference Ambrose1990).
Los isótopos de oxígeno (18O/16O) se utilizan principalmente para discutir movilidad y patrones de residencia (Dupras y Schwarcz Reference Dupras and Schwarcz2001; Sponheimer y Lee-Thorp Reference Sponheimer and Lee-Thorp1999). Estos isótopos se registran en el fosfato y carbonato de la hidroxiapatita, y reflejan principalmente la composición isotópica del agua corporal, determinada básicamente por el agua ingerida, en el momento de formación de los huesos y dientes (Sponheimer y Lee-Thorp Reference Sponheimer and Lee-Thorp1999). A su vez, el agua bebida varía de modo regular en relación a la latitud, elevación, patrones de lluvia y otros factores ambientales (Dansgaard Reference Dansgaard1964; Gat Reference Gat1996). Para la región se cuenta con estudios previos que permiten comparar los valores obtenidos de hueso humano con un marco espacial de variación de δ18O en las aguas (Gil et al. Reference Gil, Giardina, Neme and Ugan2014a; Ugan et al. Reference Ugan, Neme, Gil, Coltrain, Tykot and Novellino2012).
Para entender las tendencias en las dietas humanas inferidas desde los isótopos se requiere un modelo sobre las cadenas tróficas que contemple la variabilidad isotópica de los recursos de base (Szpak et al. Reference Szpak, White, Longstaffe, Millaire and Vásquez Sánchez2013). Por ello se utilizaron los datos ecológicos disponibles en la región (Giardina et al. Reference Giardina, Neme and Gil2014; Gil et al. Reference Gil, Giardina, Neme and Ugan2014a; Tabla Suplementaria 2).
Para la interpretación de la dieta se utilizaron modelos bayesianos de mezcla de dieta. Estos modelos permiten ajustar la interpretación de las dietas profundizando el análisis bivariado mediante modelos de combinación estadística donde se explora la probabilidad de los aportes de distintos recursos (Bernal et al. Reference Bernal, González, Gordón and Iván Pérez2016; Giardina et al. Reference Giardina, Neme and Gil2014; Moore y Semmens Reference Moore and Semmens2008; Parnell et al. Reference Parnell, Phillips, Bearhop, Semmens, Ward, Moore, Jackson, Grey, Kelly and Inger2013; Phillips Reference Phillips2012; Phillips et al. Reference Phillips, Inger, Bearhop, Jackson, Moore, Parnell, Semmens and Ward2014). Para este análisis se utilizó MixSIAR (Stock y Semmens Reference Stock and Semmens2013; Texto Suplementario 2).
Morfometría Craneofacial
Se definieron 102 puntos anatómicos, 62 en el cráneo y 40 en la mandíbula. Los 62 puntos del cráneo fueron registrados como coordenadas en tres dimensiones utilizando un brazo mecánico Microscribe G2X, mientras que los 40 puntos de las mandíbulas fueron digitalizados en dos dimensiones con el programa tpsDIG 1.20, a partir de imágenes fotográficas obtenidas mediante una cámara digital Canon Power Shot SX10 IS (Texto Suplementario 2).
Morfometría Dental
El análisis de la variación odontométrica de JP-1, RA-1 y CS-1 se basó en los diámetros cervicales mesio-distal (MD) y vestíbulo-lingual (VL) de 37 individuos con dentición adulta. La toma de datos se realizó con un calibre digital de puntas finas Paleo Tech Hillson-Fitzgerald Dental Caliper (Hillson et al. Reference Hillson, FitzGerald and Flinn2005), siguiendo los criterios propuestos por Hillson y colaboradores (Reference Hillson, FitzGerald and Flinn2005) y las modificaciones propuestas por Bernal (Reference Bernal2008). Las mediciones fueron registradas empleando el método side count (Scott Reference Scott, Anne Katzenberg and Saunders2008), en primeros premolares (PM1) y primeros molares (M1) de la arcada dental superior, priorizando las piezas izquierdas cuando se encontraban presentes. Los datos faltantes fueron estimados utilizando el método de imputación múltiple propuesto por Schafer (Reference Schafer1999a, Reference Schafer1999b). Posteriormente, los datos fueron transformados para obtener variables de forma y de tamaño dental, las cuales fueron empleadas para establecer distancias biológicas (variables de forma) mediante análisis de componentes principales y análisis de conglomerados, y evaluar la existencia de relaciones significativas entre los sistemas de subsistencia de los grupos analizados y el tamaño dental de sus individuos (mediante ANOVA). En el Texto Suplementario 2 se detalla el conjunto de series craneanas estudiadas y la metodología estadística aplicada en el análisis de datos.
Asociación entre Variación Craneofacial-Dental y Diversidad Isotópica
Se realizaron regresiones espaciales entre las variables morfométricas craneofaciales y dentales (tamaño y forma del cráneo completo, forma del esqueleto facial, forma de la bóveda, forma de la base craneana, tamaño dental, forma dental). También se efectuaron estos análisis para variables isotópicas (δ15N, δ13Cap, δ13Ccol) a partir de los valores medios de cada muestra (Texto Suplementario 2).
Resultados
Tendencia Isotópica (13C, 15N)
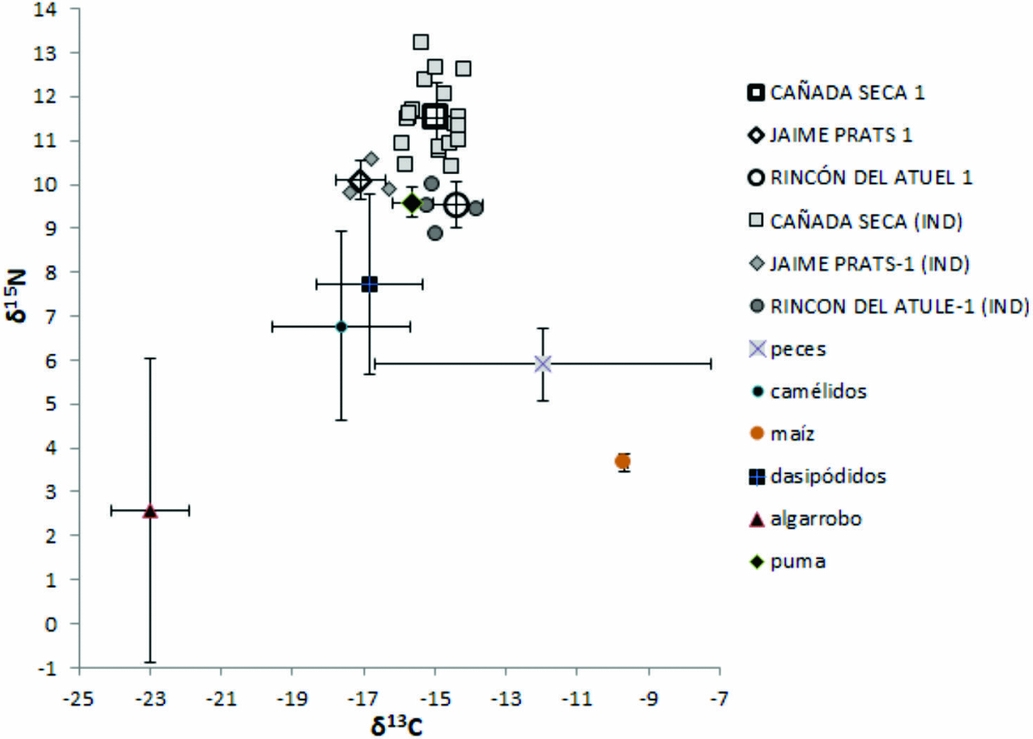
Los tres sitios arqueológicos cuentan con datos de isótopos estables (δ13C, δ15N) obtenidos sobre colágeno y apatita de huesos humanos (Gil y Neme Reference Gil, Neme, Zárate, Gil and Neme2010; Gil et al. Reference Gil, Neme and Tykot2010; datos no publicados previamente; Tabla 1). La Figura 3 se basa en los datos procedentes de individuos adultos y muestra las tendencias por sitio e individuos. Los valores medios de δ13C para CS-1 y RA-1 son similares (-14,9‰ y -14,4‰ respectivamente) y significativamente más enriquecidos que la media de JP-1 (-17,1‰). La misma tendencia se nota en el δ13Cap donde los valores medios de CS-1 y RA-1 son similares (-8,3‰ y -9‰ respectivamente) mientras que JP-1 presenta valores menores (-11,4‰). Por otra parte, los valores medios de δ15N para RA-1 y JP-1 son similares (9,5‰ y 10,1‰ respectivamente) y menores que el de CS-1 (11,5‰). Considerando la ecología isotópica (Tabla Suplementaria 2) se observan diferencias notorias entre los tres sitios. Con base en estas tendencias se propone un incremento en la proporción de recursos de alto nivel trófico en las dietas humanas de CS-1 respecto a JP-1 y RA-1, siendo éstas últimas las de valores menores. Asimismo, se nota un incremento en la proporción de recursos C4 (consumidos directa o indirectamente) en RA-1 y CS-1 respecto a JP-1. A nivel individual no se registra solapamiento entre los valores isotópicos de los sitios, lo que fortalece la diferencia entre los conjuntos. Aplicando el test de Mann-Whitney, con un límite de p = 0,05, se determinó que estas diferencias fueron significativas en todas las comparaciones, excepto en el caso de los valores de δ15N entre RA-1 y JP-1.
Tendencia por individuo y promedios por sitio en los valores de δ13C y δ15N comparados con las tendencias para los recursos, adecuando estos valores por fraccionamiento isotópico.

La Figura 3 muestra la relación en las tendencias isotópicas de los recursos potenciales más significativos que podrían haber conformado la dieta de los individuos de los tres sitios, usando como referencia el registro arqueológico del valle medio del Atuel (Giardina et al. Reference Giardina, Corbat, Peralta, Cochero, Franchetti and Salgán2015; Gil y Neme Reference Gil, Neme, Zárate, Gil and Neme2010). De este modo se comparan los valores isotópicos humanos (δ13C y δ15N; promedio por sitio e individuos segregados por sitio) con los promedios y desvío estándar de pumas, peces, camélidos, dasipódidos, algarrobo y maíz (Giardina et al. Reference Giardina, Neme and Gil2014; Gil y Neme Reference Gil, Neme, Zárate, Gil and Neme2010; Gil et al. Reference Gil, Neme and Tykot2011; Tabla Suplementaria 2). Mientras los recursos presentan valores medios de δ15N entre 2,6‰ y 9,6‰ (Tabla Suplementaria 2) los humanos de CS-1 y JP-1 presentan valores superiores a los recursos, incluyendo los carnívoros, en tanto que RA-1 presenta valores menores que los humanos de esos sitios (promedio 9,6‰ con extremos entre 8,8‰ y 9,9‰; Tabla 1), y semejantes a los de los carnívoros. Sobre el valor medio de estos últimos (los recursos con δ15N más alto), los humanos de CS-1 se incrementan hasta 3,6‰ y los de JP-1 hasta 1‰, es decir que en CS-1 se registra un nivel superior en la cadena trófica respecto de los carnívoros, de acuerdo con el promedio del “efecto del nivel trófico” generalmente aceptado (Figura 3). Respecto del promedio, el incremento es de 1,9‰ para CS-1, y de 0,5‰ en JP-1 (Figura 3).
Los valores medios de δ13C de los recursos varían entre -23‰ y -9,6‰. Este último valor corresponde al maíz, propuesto como el recurso doméstico más significativo en la dieta humana (Gil et al. Reference Gil, Neme, Ugan and Tykot2014b). Los valores δ13C para humanos adultos de CS-1 varían entre -14,1‰ y -15,9‰, con un promedio de -14,9‰. Por lo tanto, considerando los mecanismos fotosintéticos generales, estos se emplazarían en una dieta mixta de recursos C3 (ejemplificados en la figura por algarrobos) y C4 (como el maíz). Comparando con la fauna considerada, los valores son semejantes a los del carnívoro, quedando comprendidos entre los de camélidos, dasipódidos y peces (Figura 3). Por ello, también es necesario considerar el consumo de fauna que tenga enriquecido su δ13C, y no explicar el enriquecimiento de éste isótopo solamente por consumo de plantas C4 como el maíz. Una tendencia similar en este isótopo se encuentra en los individuos de RA-1 (promedio de 14,4‰), aunque el δ15N más bajo podría señalar que el enriquecimiento en ellos se debe a un mayor aporte vegetal C4 que en CS-1. Para JP-1, el valor promedio de -17‰ refleja que el aporte vegetal C4 fue muy bajo o nulo. Esta información sobre los isótopos estables de los recursos señala que, si bien el maíz pudo formar parte de la dieta, no fue un recurso cuantitativamente significativo en CS-1 y menos aún en JP-1. Esto se basa primero en las diferencias tróficas entre los vegetales y humanos en estos dos sitios, según lo señalan los valores de δ15N (8‰ de diferencia respecto a los valores medios de CS-1, 6,6‰ respecto a JP-1 y 6‰ con RA-1) y segundo en los valores significativamente menores en δ13C de estos respecto a los del maíz (diferencia de 5,2‰ con CS-1/RA-1 y 7,4‰ en JP-1). Esta discusión es retomada al mostrar los resultados de la aplicación de modelos de mezcla bayesianos para modelar la dieta humana.
Tendencia Isotópica (18O)
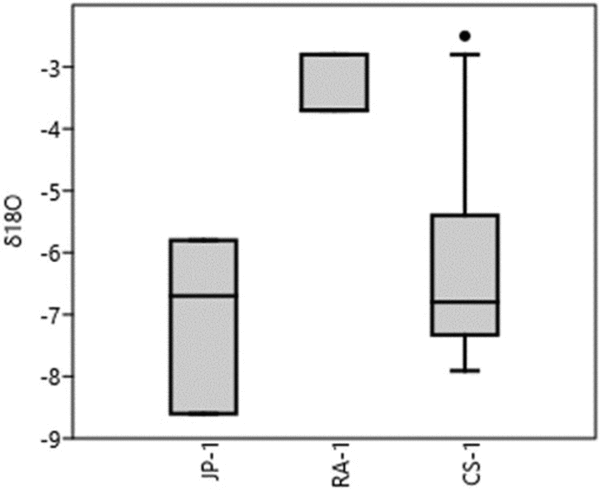
Los valores esperados para aguas bebidas de δ18O en material óseo humano varían en JP-1 entre -8,6‰ y -12,3‰, en RA-1 entre -4,8‰ y -5,7‰, mientras que en CS-1 el rango va desde -4,4‰ a -11,4‰ (Figura Suplementaria 1). La Figura 4 señala la variación de éste isótopo en cada sitio y muestra que la tendencia en RA-1 se separa significativamente respecto de las tendencias en JP-1 y CS-1, mientras estas se asemejan. Así, RA-1 muestra valores más altos y menor variabilidad entre individuos que JP-1 y CS-1, que muestran mayor variabilidad entre individuos y valores más bajos. La Figura Suplementaria 1 muestra los rangos de valores de las aguas superficiales según cada región geográfica (Gil et al. Reference Gil, Giardina, Neme and Ugan2014a; Ugan et al. Reference Ugan, Neme, Gil, Coltrain, Tykot and Novellino2012) y los valores estimados de aguas bebidas por cada individuo según su valor de δ18O. Los individuos de RA-1 señalan una semejanza con aguas de Payunia-Nevado, mientras que JP-1 y CS-1 muestran semejanza con esta región, pero también con el piedemonte. Esto indica para estos dos últimos sitios una mayor diversidad de rangos o rangos más amplios que en RA-1. Un número de muestras, principalmente de CS-1, presentan valores intermedios entre ambos sectores, lo que podría señalar un promedio en el uso de los mismos ya que no se cuenta con aguas que específicamente tengan ese patrón de δ18O (-12‰ a -9‰).
Tendencia estadística por sitio en valores de δ18O obtenidos sobre muestras óseas humanas.

Modelo de Mezcla de Dieta
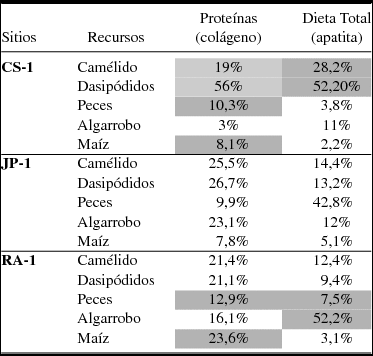
Teniendo en cuenta el registro zooarqueológico y arqueobotánico de la región (Gil y Neme Reference Gil, Neme, Zárate, Gil and Neme2010), se utilizaron los recursos más ubicuos y por ende los aceptados como más significativos a nivel regional. Sobre esta base, se comparan los aportes a la dieta humana del Atuel medio de camélidos, dasipódidos, peces, algarrobo, y maíz (Tabla Suplementaria 2). Los resultados del modelo señalan para la fracción de colágeno un aporte significativamente mayor de maíz en RA-1 (aunque tiene significativa correlación negativa con peces) respecto a JP-1 y CS-1. Por su parte, los camélidos y peces no muestran grandes variaciones entre los tres sitios, aunque estas diferencias sí son notorias en el algarrobo que habría sido menos importante para CS-1 que en los otros dos sitios (Tabla 2; Figura Suplementaria 2). Asimismo, la dieta total basada en apatita ósea presenta un patrón diferente, donde el maíz muestra valores bajos y similares entre los tres sitios, sin superar el 10%. En CS-1 se observa mayor importancia de camélidos y dasipódidos, tanto a nivel proteico como de dieta total, que en los otros dos sitios. En RA-1 se destaca una significativamente mayor frecuencia de algarrobo que en CS-1 y JP-1 (Tabla 2; Figura Suplementaria 2).
Frecuencia de Recursos en la Dieta de los Tres Sitios

Nota: Resumen estadístico que señala frecuencia, en mediana, de recursos en la dieta grupal de cada sitio. Los pares de grises señalan recursos con correlaciones negativas superiores a -0,60 que no permiten segregar significativamente los aportes entre ellos.
Variación Morfométrica Craneofacial
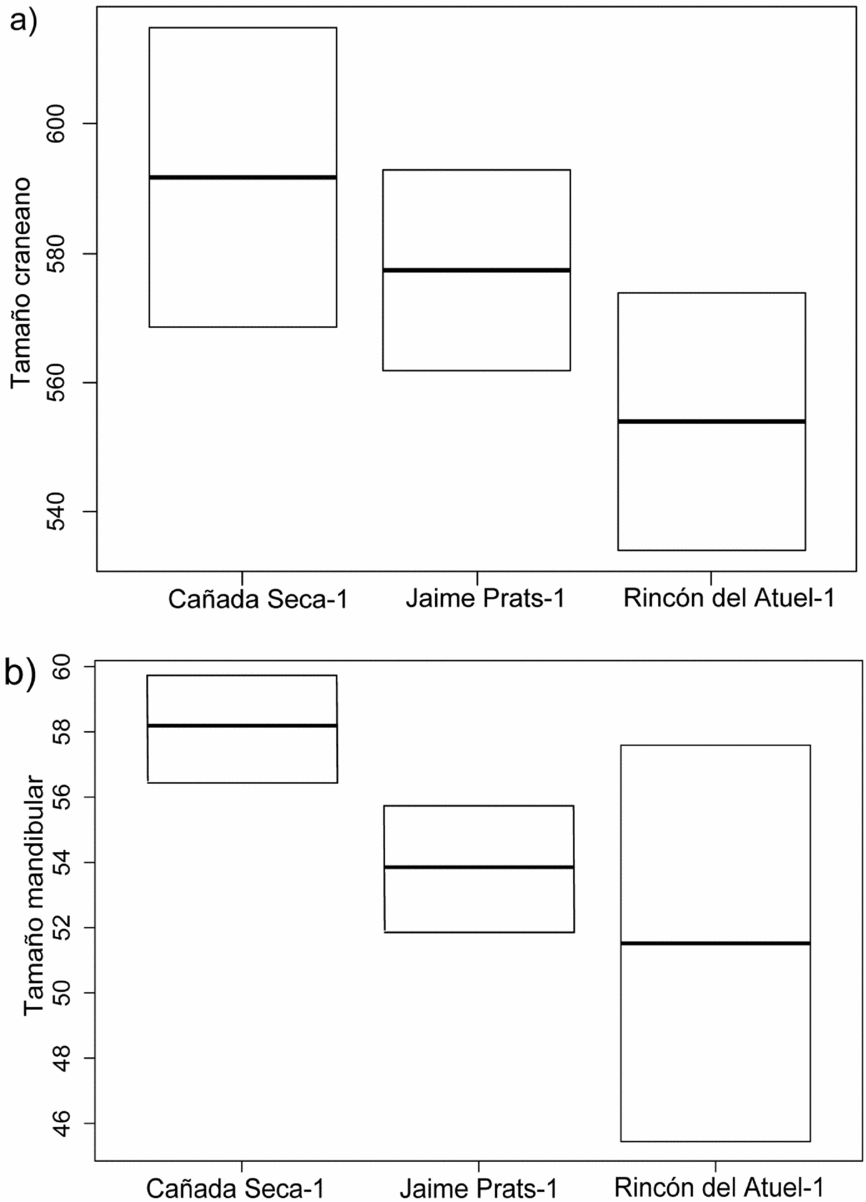
Debido a las condiciones de preservación, del total de elementos anatómicos disponibles fue posible analizar 6 cráneos y 6 mandíbulas de individuos adultos (5 masculinos y 1 femenino; Tabla Suplementaria 1) para caracterizar la variación morfológica del Atuel medio. Dado que el tamaño muestral es bajo, se presentan análisis estadísticos descriptivos para evaluar la variación de la muestra disponible, que probablemente no represente de forma significativa la variación poblacional, pero permite caracterizar la variación de los individuos disponibles y las tendencias generales entre los tres sitios arqueológicos. En la Figura 5 se puede observar la variación en tamaño del cráneo de los individuos procedentes de los tres sitios arqueológicos estudiados. En relación al tamaño del cráneo (Figura 5a), los individuos de CS-1 presentan los cráneos más grandes, mientras que los individuos de RA-1 presentan los cráneos más pequeños, y los individuos de JP-1 cráneos de tamaño intermedio. La variación en tamaño de los individuos de CS-1 y RA-1 se solapa mínimamente entre sí, representando los dos extremos de variación de la muestra. Los tamaños craneales de los individuos de JP-1 se asemejan más a los de CS-1 que a los de RA-1. Respecto al tamaño de la mandíbula (Figura 5b) se observa una tendencia de variación similar a la del cráneo, donde los individuos de CS-1 presentan las mandíbulas de mayores dimensiones, seguidos de JP-1 y finalmente las mandíbulas más pequeñas son las de RA-1. Sin embargo, a diferencia del cráneo, los tamaños de las mandíbulas de JP-1 se solapan con los de RA-1, en lugar de CS-1.
Diagramas de caja: (a) tamaño del cráneo y (b) tamaño mandibular.

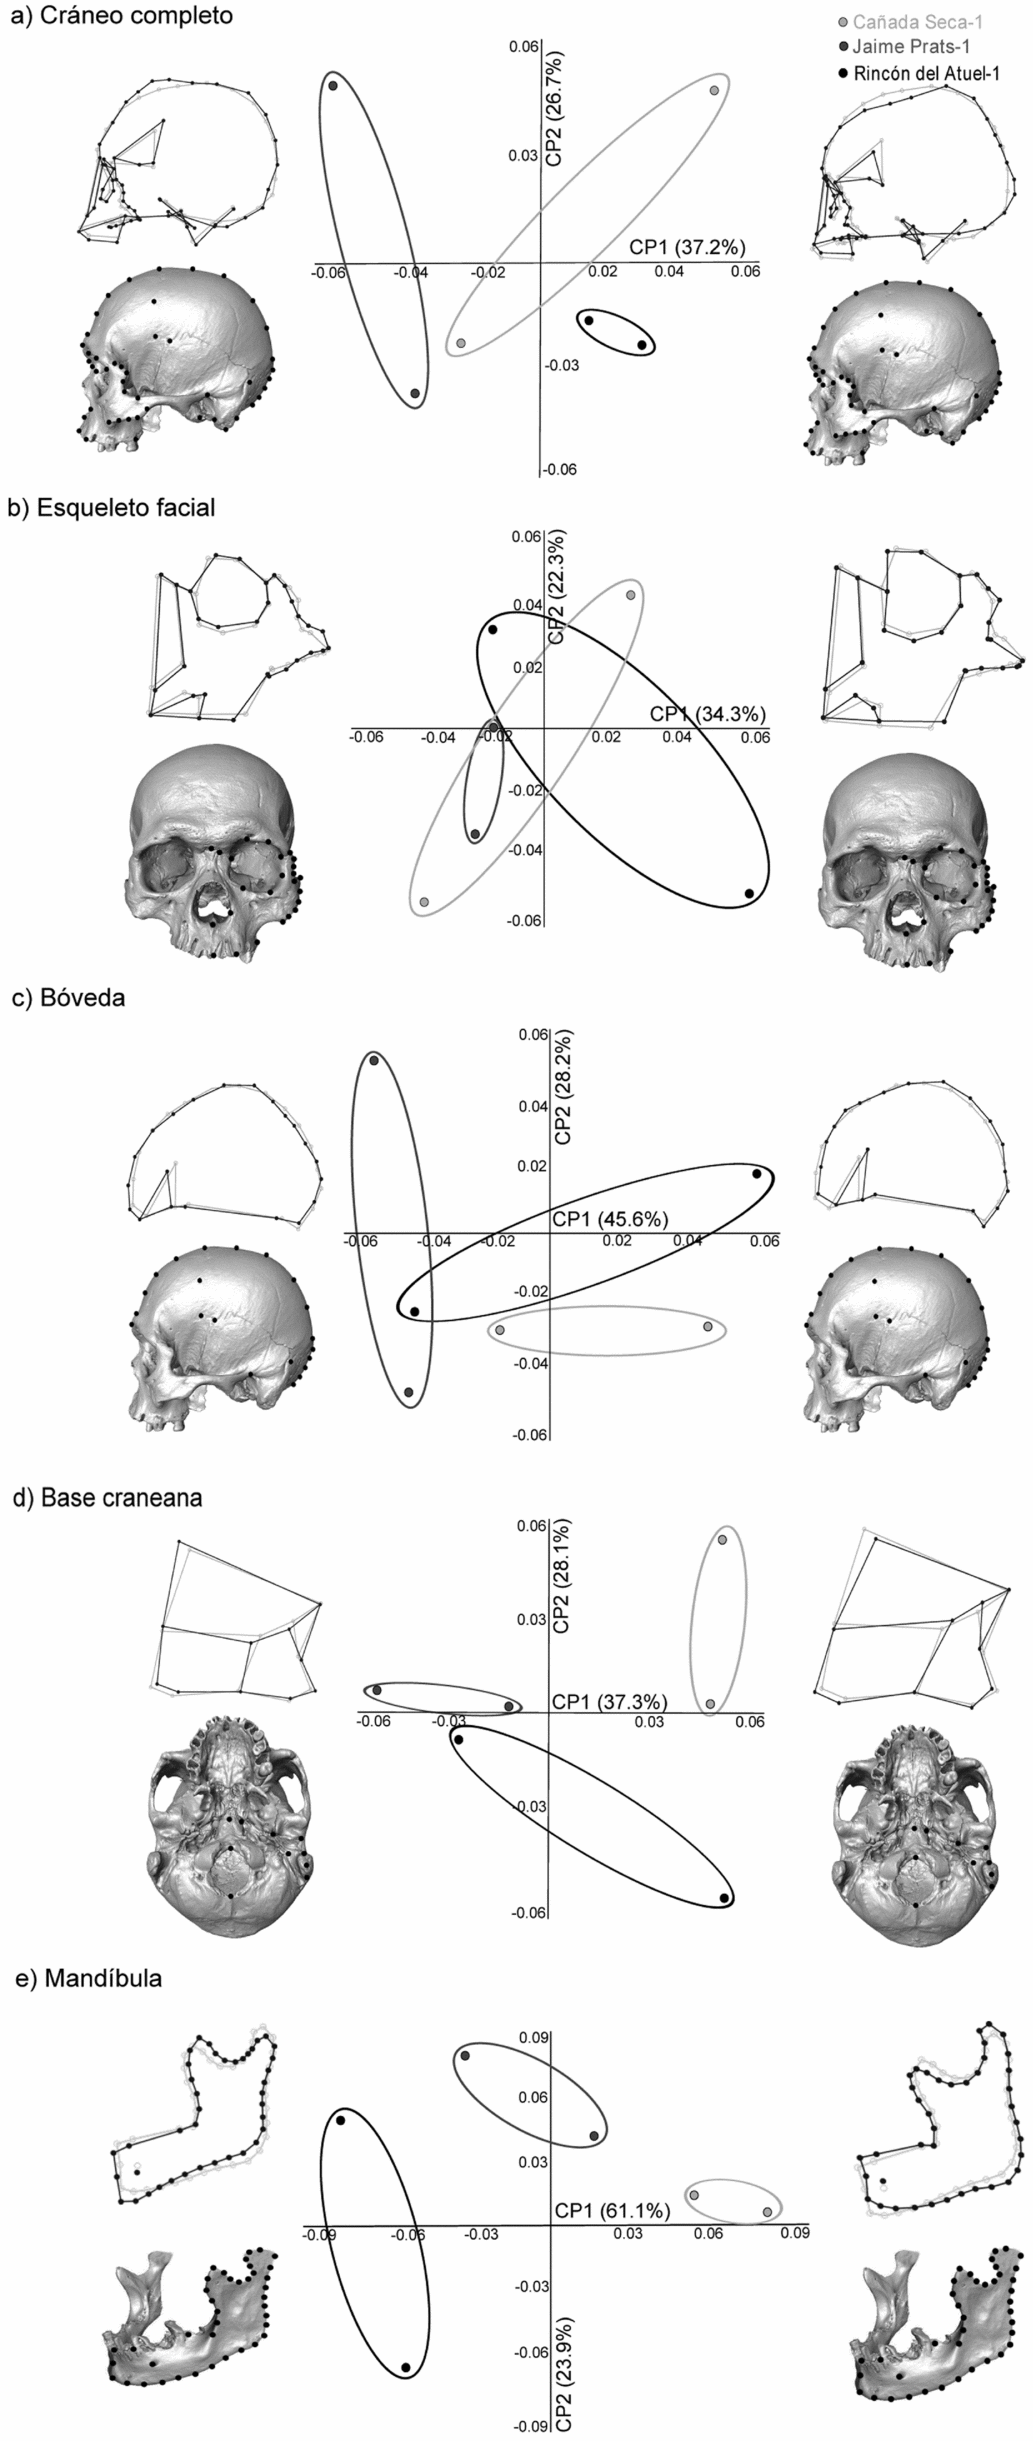
La Figura 6 muestra la variación en forma de los individuos analizados respecto al cráneo completo, esqueleto facial, bóveda, base craneana y mandíbula. A partir del análisis de componentes principales (ACP) del cráneo completo (Figura 6a) se puede ver que los individuos se agrupan por sitio arqueológico a lo largo del primer componente principal (CP). Los dos primeros CP resumen más del 60% de la variación en forma. Mientras que los individuos de JP-1 se ubican en el extremo negativo del CP1, los individuos de RA-1 se encuentran hacia el extremo positivo del CP1, y los individuos de CS-1 en una posición intermedia. Se observa una importante amplitud de variación en los individuos de CS-1, uno de los cuales se acerca a los de JP-1, mientras que el otro se acerca a los individuos de RA-1. A partir de los wireframes se puede observar los rasgos que mayormente contribuyen a diferenciar a los individuos entre sí y a generar el patrón de variación que se observa en los extremos. Mientras que los individuos de JP-1 se caracterizan por presentar cráneos redondeados, con bóvedas más altas, procesos mastoideos con mayor proyección posterior y maxilares con una mayor proyección anterior, los individuos de RA-1 presentan bóvedas más alargadas en sentido antero-posterior, procesos mastoideos y maxilares menos desarrollados, y un aplanamiento en la región lámbdica como producto de prácticas culturales que modificaron el cráneo. Cabe destacar que uno de los individuos de CS-1 (AF-2019) comparte estas características junto con los individuos de RA-1. Es decir, algunos individuos presentan modificaciones culturales del cráneo, especialmente en la región lámbdica, mientras que otros no lo presentan, lo cual, con base en trabajos previos (Menéndez y Lotto Reference Menéndez and Lotto2016), coincide con las expectativas para la región.
Análisis de Componentes Principales basados en la morfometría craneal y mandibular.

La variación del esqueleto facial señala que las muestras se encuentran en gran parte superpuestas (Figura 6b), si bien uno de los individuos de CS-1 se encuentra en el extremo negativo, y uno de los individuos de RA-1 en el extremo positivo del primer componente principal. Las muestras de JP-1 se encuentran en el extremo negativo del primer componente principal, junto con las de CS-1. La variación de la bóveda craneana (Figura 6c) muestra que los individuos se distribuyen de acuerdo a la presencia o ausencia de modificaciones culturales del cráneo. Los individuos de JP-1 se encuentran en el extremo negativo del primer componente principal; los mismos se caracterizan por no presentar modificaciones culturales del cráneo. Por otro lado, los individuos de RA-1 y CS-1 presentan modificaciones culturales del cráneo y se encuentran hacia el extremo positivo del primer componente principal. La base craneana (Figura 6d), al igual que el ACP del cráneo completo, muestra que los individuos se agrupan de acuerdo al sitio arqueológico de proveniencia, de manera que hacia el extremo negativo del primer componente principal se encuentran los individuos de JP-1, los individuos de RA-1 se localizan en una posición intermedia y hacia el extremo negativo del primer componente principal se ubican los individuos de CS-1. La Figura 6e muestra la variación en forma de la mandíbula mediante un análisis de componentes principales junto a los wireframes que muestran la variación a lo largo de los extremos positivo y negativo del primer componente principal. Los dos primeros componentes principales explican el 84% de la variación en forma mandibular. Se puede observar que las muestras se distribuyen geográficamente, es decir agrupándose de acuerdo con los sitios arqueológicos de procedencia. Los individuos de RA-1 se ubican en el extremo negativo del CP1, presentando un cuerpo mandibular más delgado y alargado antero-posteriormente, y una rama mandibular inclinada posteriormente, que forma un ángulo obtuso con el cuerpo mandibular. Las muestras de JP-1 se encuentran en una posición intermedia y las muestras de CS-1 en el extremo positivo del CP1, caracterizadas por presentar un cuerpo mandibular más grueso y una rama mandibular más alargada en sentido dorso-ventral, que forma un ángulo recto con el cuerpo mandibular.
Variación Odontométrica
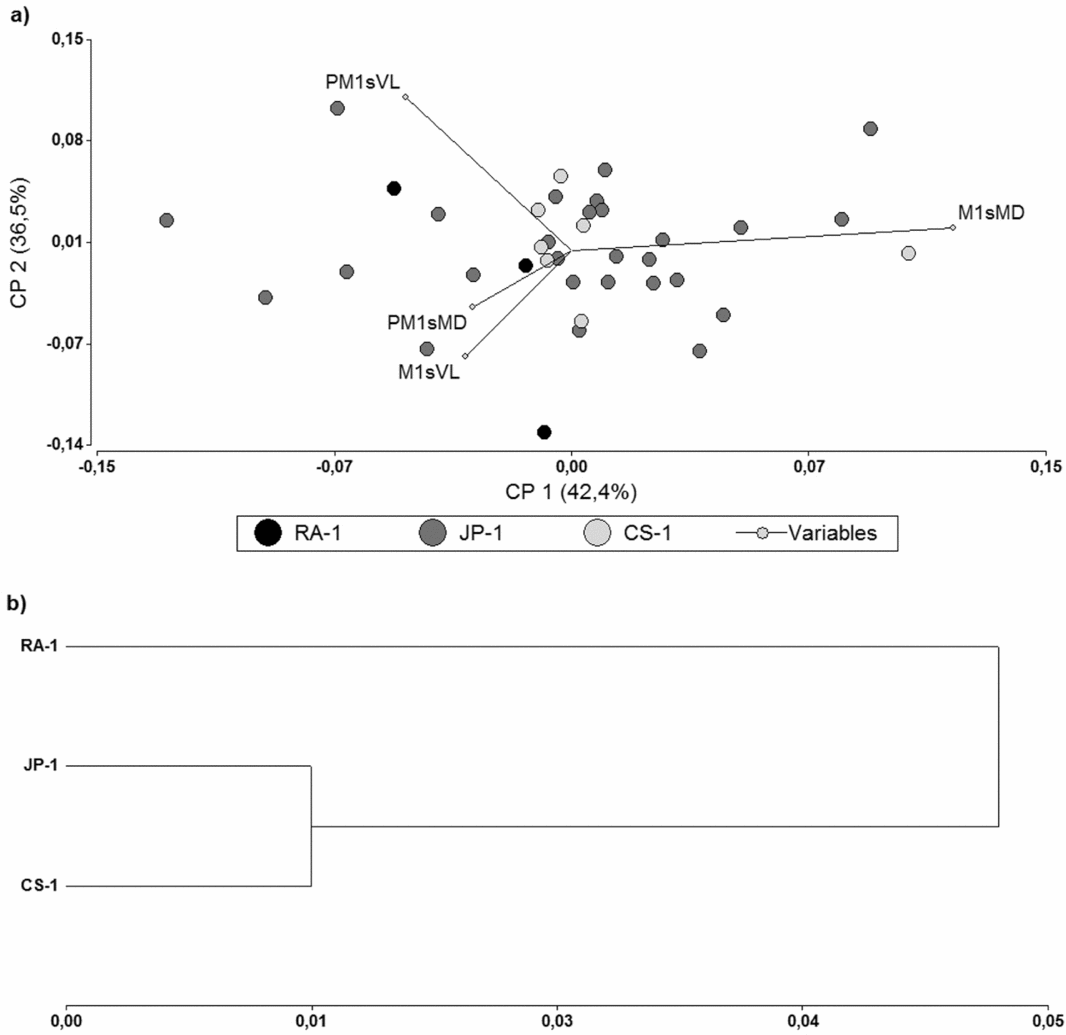
El ACP realizado con las variables de forma de los individuos de los sitios JP-1, RA-1 y CS-1 permitió establecer que los dos primeros componentes principales (CP) dan cuenta del 79% de la variación observada (Figura 7a). Los coeficientes de ponderación obtenidos para las variables de forma (Tabla Suplementaria 3), permiten establecer que el diámetro mesio-distal del M1 es la variable que más contribuye a diferenciar las muestras en el CP1, y que los diámetros vestíbulo-linguales del PM1 y el M1 hacen lo propio para el CP2; esto se ve claramente en el diagrama de dispersión biespacial (Figura 7a). Dicha figura también permite observar una mayor dispersión de los individuos de JP-1 en el CP1, mientras que los individuos de CS-1 y RA-1 se disponen en torno al origen de coordenadas para dicho componente, con la excepción de uno de CS-1 que se ubica en el extremo positivo del CP1 y uno de RA-1 que presenta valores negativos intermedios. En el CP2 los individuos de JP-1 varían entre los valores positivos y negativos medios, mientras que los individuos de CS-1 presentan valores positivos y negativos más próximos al origen de coordenadas. Los individuos de RA-1 son los que presentan mayor dispersión sobre el CP2, ubicándose entre los valores positivos medios y el extremo negativo del CP2.
(a) Diagrama de dispersión biespacial del ACP para individuos de CS-1, JP-1 y RA-1. CP: Componente principal; PM: premolar; M: molar; s: superior; MD: diámetro mesio-distal; VL: diámetro vestíbulo lingual. (b) Dendrograma que describe el agrupamiento de JP-1, RA-1 y CS-1 en función de las variables de forma dental de sus individuos.

El análisis de conglomerados elaborado a partir de los valores obtenidos para CP1 y CP2 (Figura 7b) permitió agrupar a los individuos de CS-1 y JP-1 en una misma concentración, diferenciándolos de los individuos de RA-1. Por su parte, el coeficiente de correlación cofenética presentó un valor de 0,966, reflejando una alta correlación entre las distancias evidenciadas en el dendrograma y las distancias originales calculadas entre individuos (ACP).
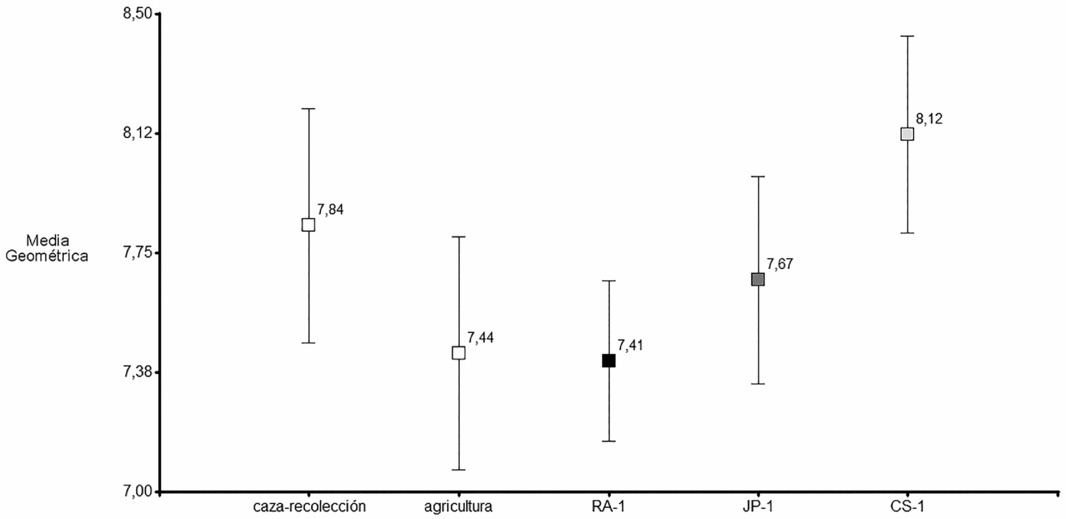
El análisis del factor tamaño dental mediante ANOVA de una vía dio un F = 14,76 y un p < 0,0001 (Tabla Suplementaria 4). La prueba post hoc de Di Rienzo, Guzmán, Casanoves (DGC) permitió definir que CS-1 se diferencia del resto de las muestras (Tabla Suplementaria 4), presentando los mayores tamaños dentales. Por su parte, el resto de las series, si bien se agrupan entre sí, se ordenan de forma decreciente en función de sus medias en cazadores-recolectores, JP-1, agricultores, RA-1.
Estos resultados permitieron considerar que los elevados tamaños dentales presentados por los individuos de CS-1 (Figura 8) podrían enmascarar diferencias entre el resto de las muestras. A fin de evaluar tal hipótesis se procedió a repetir el ANOVA, excluyendo del mismo a los individuos de CS-1. Como resultado se obtuvo un F = 15,76 y un valor de p inferior a 0,0001 (Tabla Suplementaria 5), constatando la existencia de diferencias altamente significativas entre las muestras analizadas. Por su parte la prueba DGC permitió diferenciar dos agrupamientos, uno conformado por las muestras de cazadores-recolectores y JP-1, y el otro definido por la muestra de agricultores y RA-1.
Variación del tamaño dental en JP-1, RA-1, CS-1 y grupos con estrategias de caza-recolección y agricultura.

Asociación entre Variación Morfológica e Isotópica
Los resultados de las regresiones espaciales indican que la dieta isotópica explica gran parte de los patrones morfométricos observados tanto en cráneo como en dientes. Los valores de δ13Ccol y δ13Cap muestran una alta correlación con la forma del cráneo completo (84–98%) y de la bóveda (92–99%), a pesar de que esta última refleja variaciones como producto de la presencia de modificaciones culturales del cráneo (Tabla Suplementaria 6). Asimismo, la diversidad de valores de δ15N se corresponde significativamente con la variación del tamaño del cráneo completo (98%), la mandíbula (78%) y los dientes (82%), y con la forma de la base craneana (84%), la mandíbula (84%) y los dientes (99%). Al contrario de lo esperado, el esqueleto facial, que es la estructura craneana que presenta mayor influencia del ambiente debido a su crecimiento más lento (Atchley y Hall Reference Atchley and Hall1991), no puede ser explicada por la diversidad isotópica. Sin embargo, tanto la variación en tamaño como de la forma de la mandíbula son explicados (entre un 78% y un 85%) por los valores de δ15N, lo cual coincide con las expectativas. Finalmente, la forma de los dientes, que se espera varíe según procesos aleatorios (Hillson Reference Hillson1996), presenta una asociación alta con la diversidad en los valores de δ15N.
Cultígenos y Variabilidad Humana en la Frontera Agrícola Prehispánica
Estos resultados señalan para el sector límite de la agricultura tendencias heterogéneas y variables en la dieta, movilidad humana y morfometría craneofacial y dental. Dicha heterogeneidad habría tenido lugar durante el período que abarca los primeros ca. 500 años posteriores a la incorporación de plantas domésticas. Al comparar sitios cercanos geográficamente, se controla la variación ambiental, pudiendo enfocarse en la variabilidad espacial. Asimismo, la continuidad temporal de los conjuntos permite visualizar cambios ocurridos en un lapso de tiempo relativamente corto y cercano al momento de la aparición de cultígenos.
Las tendencias isotópicas en la fracción proteica mostraron que los valores de δ13C más elevados, que reflejan un mayor (aunque nunca elevado) consumo directo o indirecto de plantas C4, se encuentran en RA-1 mientras que los más negativos se observaron en JP-1. Por su parte, los valores de δ15N más elevados, asociados a un incremento en el nivel trófico (importancia de carnes en la dieta, por ejemplo), se registran en CS-1 y luego JP-1. Los valores más bajos de esta relación isotópica se encuentran en RA-1, lo que implicaría para estos individuos dietas principalmente basadas en vegetales, aunque las diferencias no son significativas entre este sitio y JP-1. La aplicación de modelos bayesianos confirma estas tendencias tanto para la fracción proteica como para la dieta total (Figura Suplementaria 2). Los resultados coinciden con estudios previos respecto a la importancia del maíz (Bernal et al. Reference Bernal, González, Gordón and Iván Pérez2016; Gil et al. Reference Gil, Neme and Tykot2010, Reference Gil, Neme and Tykot2011), a pesar de que Bernal y colaboradores (Reference Bernal, González, Gordón and Iván Pérez2016) proponen un alto consumo de vegetales entre las poblaciones del sur de Mendoza, lo que no se corrobora con los resultados aquí presentados para JP-1 y CS-1.
El estudio de la variación en la forma del cráneo completo, el esqueleto facial y las piezas dentales permitió diferenciar los individuos de RA-1 de los de CS-1 y JP-1. Estos últimos muestran mayores similitudes entre sí. Este patrón coincide con las diferencias observadas en las dietas inferidas para los tres sitios. Cuando se observa la variación en forma de la base craneana (Figura 6d) se nota otra tendencia, ubicándose en los extremos los individuos de JP-1 y CS-1 y quedando los de RA-1 con una posición intermedia. Esto a su vez coincide con la secuencia cronológica de los sitios.
La variación de tamaño en cráneo y mandíbula muestra un patrón común para ambas unidades anatómicas y coincidente con la tendencia en los isótopos δ13C y ẟ15N. Los individuos de CS-1 presentan las mayores dimensiones, seguidos por los de JP-1 y los de RA-1 con los tamaños más reducidos. Resulta significativo que dicho ordenamiento coincide con el que se obtiene al analizar los resultados del modelo de mezcla de dieta, que establece a CS-1 como el sitio con mayor consumo de recursos de alto nivel trófico (e.g., camélidos y dasipódidos) y asocia a RA-1 con un mayor consumo de recursos vegetales (maíz y algarrobo), mientras que JP-1 presenta una disposición intermedia. El análisis comparativo de los tamaños dentales permitió establecer que CS-1 se diferencia significativamente del resto de las muestras consideradas, presentando los mayores tamaños. Por su parte, hay diferencias significativas entre los tamaños dentales de JP-1, los cuales se asocian a los de grupos cazadores-recolectores, y RA-1, que se agrupan con los de grupos agricultores. Dichos resultados son consistentes con análisis previos (Bernal et al. Reference Bernal, Iván Pérez, González, Sardi and Pucciarelli2010; Sardi et al. Reference Sardi, Novellino and Pucciarelli2006) que establecen relaciones entre la variación en tamaño de las estructuras biológicas (cráneo y las piezas dentales) y variaciones en factores relacionados a la dieta y los patrones de actividad producto de diferentes sistemas de subsistencia.
A partir de los resultados obtenidos se plantean dos escenarios posibles que expliquen la variación registrada y los resultados obtenidos para las regresiones espaciales. La primera alternativa considera que la variación morfológica registrada para los individuos de los tres sitios analizados es producto de dos conjuntos poblacionales con diferentes patrones de variación heredable. Las similitudes observadas entre JP-1 y CS-1 responderían a una relación evolutiva más estrecha entre estas poblaciones (posiblemente relaciones de ancestría común), y su diferenciación respecto de los individuos de RA-1 sería el resultado de la acción diferencial de procesos microevolutivos (e.g., deriva, flujo génico, selección natural) y los acontecimientos históricos que modelaron la diferenciación biológica de dichas poblaciones a nivel intra e inter-poblacional (e.g., expansión poblacional, extinción poblacional, efecto fundador). En este contexto la relación entre dieta (e.g., δ15N) y variación morfológica (e.g., base craneal y piezas dentales) evidenciada por las regresiones espaciales es explicada en función de una correlación entre los conjuntos poblacionales (JP-1/CS-1 y RA-1) y los sistemas de subsistencia empleados por los mismos (caza-recolección y agricultura, respectivamente), una tendencia similar a la notada en otras regiones límite de la agricultura (Bollongino et al. Reference Bollongino, Nehlich, Richards, Orschiedt, Thomas, Sell, Fajkošová, Powell and Burger2013). En este escenario la variación morfológica de los conjuntos poblacionales, y su diferenciación unos de otros, respondería a las historias evolutivas particulares de los mismos y los valores de la dieta asociados a tal variación serían el producto de modelos de subsistencia diferenciales empleados por dichos conjuntos. Apoyando esta consideración se destacan los patrones de entierro en estos sitios: tanto JP-1 como CS-1 son osarios con alto número de individuos, mientras que en RA-1 se registra un bajo número de individuos con igual predominio de entierros primarios y secundarios (Gil et al. Reference Gil, Neme, Hernández, Novellino, Giardina, Salgán, Tucker and Albarrán2008; Lagiglia Reference Lagiglia1991, Reference Lagiglia1994; Peralta Reference Peralta2015).
El segundo escenario establece que las diferencias en la dieta habrían determinado la diversificación de las poblaciones estudiadas, considerando que el cambio fenotípico persiste y se transmite lo suficientemente rápido a través de las generaciones como para alterar la trayectoria de un proceso ecológico que se encuentra aún en progreso. La existencia de dietas diferentes habría impactado sobre la plasticidad fenotípica de estas poblaciones durante el transcurso de las trayectorias ontogénicas de los individuos que la componen, dando lugar a la variabilidad morfológica observada. De esta manera RA-1, que presentaría morfologías y valores isotópicos esperables para grupos con una alta proporción de cultígenos en su dieta, se diferencia más claramente de JP-1 y CS-1, que a su vez se parecen entre sí, caracterizados por una proporción mayor de proteínas de distinto origen en su dieta.
Diversos trabajos han propuesto un incremento de la demografía humana en esta región alrededor de 2000 años aP, lo que habría impulsado un proceso de intensificación como una forma de adecuar la presión sobre los recursos (Gil et al. Reference Gil, Neme, Ugan and Tykot2014b; Johnson et al. Reference Johnson, Gil, Neme and Freeman2015; Neme Reference Neme2007). En su primera formulación esta intensificación implicó un aumento en la amplitud de la dieta, disminución de la movilidad y la demarcación de territorios (Neme Reference Neme2007). Como parte de esos cambios se habrían incorporado plantas domésticas en la dieta de las poblaciones. Aunque el proceso de intensificación no ha sido claramente registrado en el sur de Mendoza (Otaola Reference Otaola2012), las evidencias señalan el registro de macro-restos de plantas domésticas desde ca. 2000/2200 años aP y contemporáneamente un aumento demográfico inferido en la tendencia de frecuencias radiocarbónicas (Gil et al. Reference Gil, Neme, Ugan and Tykot2014b). Las variaciones en la demografía humana, así como en la abundancia y variación de los recursos silvestres, explicarían la importancia que habrían tenido los recursos domésticos en estas poblaciones (Barlow Reference Barlow2002). Si bien se ha observado la incorporación de plantas domésticas a la dieta humana de la región hace ca. 2200 años cal aP, las mismas no habrían sido la base de la alimentación. La evidencia presentada en este trabajo sugiere que no existe una profundización temporalmente continua en la importancia de los cultígenos, ni tampoco señala un sistema de subsistencia estable durante el tiempo aquí comprendido. Por el contrario, se destaca un flujo de avances y retrocesos de estrategias o poblaciones (demes), caracterizados por pulsos donde dominan unas más orientadas a la explotación de recursos silvestres y otras más vinculadas con la explotación de recursos domésticos. Los cambios no fueron lineales en el tiempo ya que JP-1, el más antiguo de los sitios, se diferencia significativamente de RA-1, que es el sitio que cronológicamente lo continúa, mientras que se asemeja a CS-1, con el que tiene baja probabilidad de contemporaneidad. Estas disrupciones temporales señalarían un sistema en equilibrio oscilante manteniendo la importancia de los recursos domésticos por debajo de umbrales de no retorno (Freeman et al. Reference Freeman, Peeples and Anderies2015).
Si se asume que las dietas de los sitios JP-1 y CS-1 corresponden a poblaciones que basaron su subsistencia en recursos silvestres, especialmente animales, y que tendrían diferencias significativas en la proporción de plantas C4 consumidas en relación con los individuos de RA-1, entonces el enriquecimiento que muestran los valores de δ13C en los individuos de CS-1 respecto de JP-1 debería ser atribuido al mayor consumo de recursos animales con valores de δ13C enriquecidos como los dasipódidos. Como ya se mencionó, los altos valores de δ15N que muestran los individuos de CS-1 refuerzan la idea de un alto consumo de recursos animales, y no así de vegetales, debilitando la posibilidad de un enriquecimiento causado por el consumo de plantas C4 como el maíz. Los resultados de los modelos de mezcla de dieta también sugieren un mayor consumo de animales con valores de δ13C y δ15N enriquecido como los dasipódidos.
Conclusión
La arqueología del centro-occidente asumió que una vez establecidos los primeros grupos de agricultores, los mismos habrían continuado en la región profundizando su dependencia agrícola, incorporando la tecnología cerámica y disminuyendo la movilidad. Nuestros resultados basados en el registro de los tres sitios presentados indican que en el límite de la agricultura prehispánica la organización de los sistemas humanos, principalmente señalados por su dieta y su movilidad, fue altamente variable entre ca. 1900 y 1200 años cal aP. Esta variabilidad se asocia con diferenciaciones en la morfometría craneofacial y dental, que señalan patrones compatibles con poblaciones con un fuerte énfasis en la explotación de recursos silvestres (JP-1 y CS-1), intercalados con otros donde el consumo de alimentos domésticos pudo ser más significativo (RA-1). En ningún caso los estudios de isótopos señalan un fuerte énfasis en el maíz, aunque para RA-1 este podría haber sido más significativo que para el resto de los sitios analizados. Estos resultados no confirman una progresiva profundización en la articulación de recursos domésticos y sedentarismo. Por el contrario, señalan una oscilación en la importancia de los mismos, la cual se refleja en una alta variabilidad en la organización de los sistemas humanos, una vez que los recursos domésticos llegaron a la región. Esta oscilación en la organización de los sistemas pudo continuar hasta tiempos históricos, donde la información escrita señala ocupaciones de cazadores-recolectores en este valle, que 2.200 años atrás habría sido posiblemente el límite de grupos agricultores. Esta variabilidad propuesta en el trabajo es difícilmente detectada cuando el registro arqueológico es ordenado y articulado considerando unidades culturales definidas sobre la base de uno o varios rasgos diagnósticos. Dado el tamaño de la muestra creemos que este trabajo tiene un sentido exploratorio, señalando un patrón no detectado previamente con el potencial de ser corroborado o desestimado en futuras investigaciones.
Agradecimientos
Este trabajo se realizó en el marco de los proyectos PICT 2013-0881, PICT 2016–2667 y PIP-CONICET 0342. Agradecemos al Laboratorio de Isótopos Estables en Ciencias Ambientales (LIECA). Tres evaluadores señalaron aspectos que ayudaron a mejorar sustancialmente nuestra primera versión de este trabajo. Agradecemos a Miguel Giardina por ayudarnos con la preparación de figuras y discutir algunas ideas. Al Museo de Historia Natural de San Rafael por permitir el estudio de estos materiales.
Declaración de Disponibilidad de Datos
Los datos físicos y digitales sobre los cuales se basa la investigación se encuentran disponibles en el Museo de Historia Natural de San Rafael. Para consultarlos, pueden contactarse con cualquiera de los autores.
Materiales Suplementarios
Para acceder a los materiales suplementarios que acompañan este artículo visitar https://doi.org/10.1017/laq.2017.59
Figura Suplementaria 1. Rangos esperados para valores de δ18O en muestras óseas humanas según la distribución espacial de aguas y valores obtenidos.
Figura Suplementaria 2. Tendencia y variabilidad de la dieta según el colágeno (proteínas) y apatita (dieta total).
Tabla Suplementaria 1. Número Mínimo de Individuos por sitio y Tamaño de la Muestra para cada Variable Analizada.
Tabla Suplementaria 2. Tendencias en los Isótopos Estables (δ13C y δ15N) en los Taxones Vegetales y Animales de la Región.
Tabla Suplementaria 3. Coeficientes de Ponderación de las Variables de Forma para CP1 y CP2.
Tabla Suplementaria 4. Resultados del ANOVA y Test DGC para Medias Geométricas de CS-1, JP-1, RA-1, y Grupos Cazadores-Recolectores y Agricultores.
Tabla Suplementaria 5. Resultados del ANOVA y Test DGC para Medias Geométricas de JP-1, RA-1, y Grupos Cazadores-Recolectores y Agricultores.
Tabla Suplementaria 6. Resultados de Regresiones Espaciales a partir de los Valores de R2.
Texto Suplementario 1. Variación Isotópica (ẟ18O) espacial de las aguas superficiales.
Texto Suplementario 2. Metodología.