Para las poblaciones que habitaron el Valle de Ambato, Catamarca, Argentina, en tiempos de la sociedad Aguada, la principal fuente de proteína animal provenía de los camélidos sudamericanos (Dantas Reference Dantas2010). Asimismo, estos animales no sólo tuvieron un rol relevante desde lo económico, sino también en lo social e ideológico. De este modo, dentro de los sitios arqueológicos, se recuperaron desde restos fragmentados con evidencias de consumo en basureros y pisos de ocupación, hasta carcasas prácticamente completas en contextos ceremoniales (Dantas Reference Dantas2010; Eguia Reference Eguia2012; Gordillo Reference Gordillo2004; Laguens Reference Laguens2004). En el presente no se crían rebaños de llamas (Lama glama) en la zona, no obstante, los trabajos llevados a cabo en los últimos años permiten plantear la existencia de animales criados localmente (Dantas y Figueroa Reference Dantas and Figueroa2018; Dantas y Knudson Reference Dantas and Knudson2016; Dantas, Figueroa y Laguens Reference Dantas, Germán and Andrés2014; Figueroa y Dantas Reference Figueroa and Dantas2020).
La familia Camelidae está compuesta actualmente por cuatro especies: dos silvestres, Lama guanicoe (guanaco) y Vicugna vicugna (vicuña), y dos domesticadas, Lama glama y Vicugna pacos (alpaca). En los Andes centro sur tienen un gradiente de tamaño corporal que comienza por la llama, que es la de mayor tamaño, posteriormente se encuentran el guanaco, la alpaca y, por último, la vicuña, que es la más pequeña (Mengoni Goñalons Reference Mengoni and Guillermo2008; Olivera y Elkin Reference Olivera and Elkin1994). Lama guanicoe se distribuye por toda el área andina sudamericana y la Patagonia argentina. En el noroeste argentino, en la actualidad se encuentra restringida a algunas zonas de la Puna catamarqueña, la Sierra del Aconquija y la Sierra del Cajón (Mares et al. Reference Mares, Ojeda, Braun, Bárquez, Yates, Gannon and Don1997). La distribución actual de Vicugna vicugna en Argentina corresponde a los ecosistemas puneños y altoandinos, por arriba de los 3.000 m snm (Laker et al. Reference Laker, Jorge, Yanina and Hugo2006; Wheeler Reference Wheeler2006). Lama glama se encuentra desde Ecuador hasta el centro de Chile y noroeste de Argentina. Es el camélido más adaptable, ya que su presencia se ha registrado en ambientes de altura, valles y zonas costeras. Las llamas difieren en tamaño, registrando las más pequeñas una superposición en tamaño con los guanacos del noroeste argentino (Mengoni Goñalons Reference Mengoni and Guillermo2008). Por último, en territorio argentino la presencia de Vicugna pacos en tiempos previos a la conquista española ha sido puesta en duda por varios autores (Elkin Reference Elkin1996; Yacobaccio et al. Reference Yacobaccio, Madero, Malmierca and Reigadas1997–1998, entre otros). Los guanacos y llamas son bebedores periódicos, en tanto que la vicuña necesita beber diariamente (González et al. Reference González, Eduardo Palmas, Zapata and Marín2006; Wheeler Reference Wheeler2006).
En cuanto a la cultura Aguada (sensu González Reference González1961–1964), pobló el valle desde el siglo sexto al undécimo dC y se caracterizó por ser heterogénea e internamente diferenciada (Laguens Reference Laguens2004). La mayor concentración de sitios registrados se halla en el sector central del valle, donde se identificaron unidades de vivienda de diversos tamaños y unidades ceremoniales, distribuidas a la manera de aldeas (Assandri Reference Assandri2007). En los piedemontes y faldeos montañosos, entre los 1.122 y los 1.580 m snm, se desarrolló un espacio especializado de producción agropastoril, que incluyó la presencia de viviendas, estructuras agrícolas e hidráulicas y corrales. Lo agrícola y lo pastoril se habrían integrado en un único sistema productivo, que habría incluido y relacionado simultáneamente la cría de plantas y animales en un mismo espacio y con una única infraestructura (Dantas, Figueroa y Laguens Reference Dantas, Germán and Andrés2014; Figueroa Reference Figueroa2010; Figueroa y Dantas Reference Figueroa and Dantas2020).
El estudio de los conjuntos faunísticos procedentes de los sitios arqueológicos excavados en sectores de fondo de valle permitió identificar que hubo un amplio predominio de los camélidos (entre 78,1% y 94,0%), respecto a los otros taxones identificados (por ejemplo, dasipódidos, carnívoros, roedores, aves; Dantas Reference Dantas2010). Los estudios osteométricos posibilitaron discriminar tres grupos dentro de los camélidos, uno que se agrupa con las vicuñas, otro con las llamas y un tercero con los guanacos de referencia.Footnote 1 López (Reference López2003), y Olivera y Grant (Reference Olivera and Grant.2009), entre otros, consideran que corresponde asignar a este último grupo dentro de una categoría denominada “llama/guanaco”, debido a la superposición existente en el tamaño de los guanacos del noroeste argentino con el de las llamas más pequeñas. No obstante, para el caso del Valle de Ambato, el entrecruzamiento de los resultados osteométricos con el de isótopos estables de carbono en colágeno (δ13Ccolágeno (VPDB)) permite plantear que la mayor parte de los animales agrupados dentro de este grupo fueron animales domésticos de menor porte, es decir, llamas pequeñas (Dantas Reference Dantas2010).
Sobre la base del análisis de δ13Ccolágeno (VPDB), se logró identificar la presencia de dos clases de manejo de los rebaños. El primero, vinculado a los sitios de elite, se habría caracterizado por alimentar primordialmente a los camélidos con una dieta basada en plantas C4, con altas proporciones de maíz (Zea mays); el segundo, correspondiente a sitios de pequeñas y medianas dimensiones, habría permitido a los animales alimentarse a campo abierto, por lo que habría incluido una amplia variedad de plantas locales (Dantas y Figueroa Reference Dantas and Figueroa2018; Dantas, Figueroa y Laguens Reference Dantas, Germán and Andrés2014; Dantas, Figueroa et al. Reference Dantas, Germán G., Andrés and Andrés2014).
Por su parte, los estudios de isótopos radiogénicos de estroncio (87Sr/86Sr) permitieron distinguir la existencia de camélidos de tamaño llama y llama/guanaco, tanto locales como provenientes de otras regiones (Dantas y Knudson Reference Dantas and Knudson2016). Asimismo, los camélidos de menor porte (i.e., Vicugna vicugna) presentan valores de 87Sr/86Sr que coinciden con una señal isotópica local y de sectores aledaños, o no tan distantes al valle. Esto suma mayores interrogantes ya que, a pesar de no existir en el presente individuos vivos en la región (Laker et al. Reference Laker, Jorge, Yanina and Hugo2006) y que los restos arqueológicos disponibles corroboran que en el pasado tuvieron la misma distribución altitudinal (Wheeler Reference Wheeler2006), se hallan referencias históricas que mencionan su presencia para el siglo diecisiete en Singuil, una pampa de altura ubicada al norte del valle (Larrouy Reference Larrouy1914).
Por consiguiente, el objetivo de este trabajo es indagar en torno a los nuevos interrogantes que surgieron y aquellos que aún permanecen sin responder acerca de las formas de acceso y manejo de los camélidos —tanto domesticados como silvestres— recuperados en los sitios arqueológicos del Valle de Ambato, y a los cuales se espera abordar mediante el estudio de isótopos estables de oxígeno (δ18O).
Esta técnica se viene usando en arqueología desde hace alrededor de cuatro décadas, con el fin de indagar sobre la movilidad de personas, alimentos y animales, ya que refleja variaciones vinculadas con factores geográficos y climáticos. En el ambiente, las proporciones de isótopos de oxígeno varían debido a que las moléculas de agua que contienen 18O se condensan y precipitan más fácilmente que 16O. A su vez, el isótopo de agua más liviano se evapora más rápido que las moléculas que contienen el isótopo más pesado. De este modo, los valores de δ18O en agua meteórica disminuyen a medida que aumentan la altitud y la distancia a la costa, y que baja la temperatura (Craig Reference Craig1961; Dansgaard Reference Dansgaard1954, Reference Dansgaard1964). Por su parte, la composición isotópica de los tejidos mineralizados de un organismo presenta una fuerte correlación lineal con el agua ingerida, la cual refleja la composición del agua disponible localmente, que se vincula principalmente con las precipitaciones (Knudson Reference Knudson2009; Knudson y Price Reference Knudson and Douglas Price2007; Serna Reference Serna2018). Por lo tanto, es posible inferir el origen geográfico y la movilidad de un organismo, si se conoce la distribución regional de los valores de δ18O del agua y los valores isotópicos de alguno de sus tejidos (Knudson Reference Knudson2009; Serna Reference Serna2018).
El Valle de Ambato: Caracterización hidrológica y climatológica
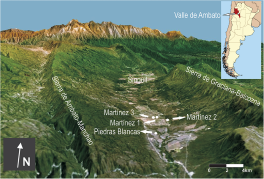
El Valle de Ambato conforma la porción norte del Valle de Catamarca (Figura 1). Está constituido por la Sierra de Humaya al oeste (2.278 m snm), que forma parte del cordón montañoso de Ambato o Manchao, y por la Sierra de Graciana-Balcozna hacia el este (1.850 m snm; Ardissone Reference Ardissone1941). El colector principal de la cuenca es el río Los Puestos, que nace en los Altos de Singuil a 1.250 m snm, escurre a lo largo del valle en dirección norte–sur y desemboca en el embalse Las Pirquitas. Sus afluentes son todos de régimen torrencial con fuertes pendientes y gran arrastre de sedimentos. Constituye una red hidrográfica de carácter endorreico (Nogués et al. Reference Nogués, M., Sotomayor and López2002). Hacia el norte de los Altos de Singuil, las aguas escurren hacia el río Singuil que desemboca en el Dique Escaba, en Tucumán (Morláns Reference Morláns and Morláns2007).
Mapa del Valle de Ambato, Catamarca, con la ubicación de los sitios estudiados. (Color en la versión electrónica)

El clima en el valle es continental cálido, variando en función de la topografía, la altura y la exposición al sol. Las condiciones climáticas son subtropicales, con temperaturas elevadas y precipitaciones tormentosas en verano (Ardissone Reference Ardissone1941). La humedad que traen los vientos alisios, que provienen del Atlántico ecuatorial y de la Amazonia, es retenida por el conjunto de cordones montañosos que delimitan longitudinalmente al valle y actúan como una divisoria climática importante (Ardissone Reference Ardissone1941; Rohrmann et al. Reference Rohrmann, Strecker, Bookhagen, Mulch, Sachse, Pingel, Alonso, Schildgen and Montero2014). Las precipitaciones promedian los 479,0 mm anuales, mientras que el período de lluvias se concentra en los meses de diciembre, enero, febrero y marzo (Palmieri et al. Reference Palmieri, Olmos, Quiroga, de la Orden and Carma2005). Las temperaturas medias en los meses más calurosos (diciembre/enero) varían entre 21,7°C y 28,3°C, y en los meses más fríos (junio/julio) entre 8,9°C y 13,7°C (Figueroa Reference Figueroa2010).
Hasta el momento no hay una caracterización de la composición isotópica de las precipitaciones y/o fuentes de agua en el valle. Para zonas próximas, son muy escasos los datos disponibles de δ18O(VSMOW) de aguas superficiales. Los trabajos de Ratto y equipo (Garrido et al. Reference Garrido, Ratto, Morales, De Stéfano, Aranda and Luna2022; Ostera et al. Reference Ostera, Laprida, Dapeña and Ratto2005; Ratto et al. Reference Ratto, Luna, Aranda and Gil2019, Reference Ratto, Luna, Aranda, Pablo Miyano, Takigami, Yoneda, Matsuzaki, Tokanai, Lantos and Gil2020) realizados en distintos ambientes de las regiones de Fiambalá y Chaschuil, Catamarca, analizaron muestras de agua de cursos permanentes y temporarios, aguas termales, vegas y lagunas de altura, a los fines de compararlas con datos obtenidos de restos humanos. Las muestras procedentes de cotas mayores a 3.500 m snm (puna transicional y alta cordillera) presentan un valor de δ18O(VSMOW) máximo de +7,4‰ y mínimo de −12,9‰, con una mediana de −4,7‰. En tanto, las muestras ubicadas entre 1.200 y 3.500 m snm (valle mesotérmico y precordillera) tienen un valor máximo de +2,4‰ y mínimo de −6,2‰, con una mediana de −4,9‰. En base a estos resultados, Ostera y colaboradores (2005) consideran que son aguas hidroquímicamente heterogéneas, resultantes de procesos diferenciales de evaporación y aporte meteórico en un ambiente en el cual la evapotranspiración supera ampliamente a las precipitaciones.
Por su parte, Rohrmann y colaboradores (2014) muestrearon distintos cursos de agua en los Andes centro sur. La transecta más austral que realizaron comprende distintos lugares entre los 26° y 28° sur, y desde aproximadamente 300 m snm, hasta alrededor de 4.100 m snm. Los valores δ18O(VSMOW) que obtuvieron para toda la transecta varían entre −2,3‰ y −6,9‰. Los puntos más próximos a nuestra zona de estudio de los que obtuvieron muestras son Hualfín y el río Aconquija.
Hacia el este, hay datos disponibles para el río Dulce (media de −4,15‰), el arroyo Saladillo (sus valores varían entre +2,00‰ y −5,00‰, media de −2,43‰) y lagunas de la Salina de Ambargasta (valor máximo de +3,45‰ y mínimo de −2,10‰, media de +0,95‰). Estos datos indican que la evaporación es uno de los mecanismos más importantes que controlan la composición isotópica del sistema salino de Ambargasta (Zanor et al. Reference Zanor, Piovano, Ariztegui and Vallet-Coulomb2012).
Materiales
Los sitios de los cuales proceden los materiales analizados son Piedras Blancas (PB), Martínez 1 (M1), Martínez 2 (M2) y Martínez 3 (M3), todos emplazados en sectores de fondo de valle (Figura 1). El sitio PB presenta un montículo y un sector con construcciones, el cual fue definido como complejo (muy grande sensu Assandri Reference Assandri2007), en función de su tamaño y su división en sectores. Posiblemente, este haya sido una residencia de elite multifuncional, donde se realizaron tareas comunales o se alojó a más de una familia (Assandri Reference Assandri2007). En PB se realizaron 16 fechados radiocarbónicos, que permiten situar su período de ocupación entre los años 574 y 1225 (1σ) dC (Tabla suplementaria 1; Marconetto et al. Reference Marconetto, Gastaldi, Lindskoug and Laguens2014:Tabla 1).
El sitio M1 consta de una unidad-habitación y un montículo basurero. Habría sido ocupado por grupos domésticos reducidos, que habrían desarrollado diversas actividades artesanales, entre las cuales predominó la alfarería, aunque no se descarta el trabajo del cuero, el hueso y la tejeduría (Assandri Reference Assandri1991). Este sitio cuenta con un fechado radiocarbónico de 1770 ± 90 años 14C aP (LP461; carbón; Tabla suplementaria 1; Bonnin y Laguens Reference Bonnin and Laguens1997).
M2 es un sitio de forma trapezoidal, rodeado por un muro perimetral de pirca doble, con dos sectores de habitaciones separados por un patio central y galerías adosadas (Juez Reference Juez1991). Fue definido por Assandri (Reference Assandri2007) como una unidad grande. En este sitio se habrían realizado tareas vinculadas con la cocción de vegetales y animales, el almacenaje de vasijas, herramientas y materias primas, la molienda y almacenaje de granos, así como con la confección de alfarería (Juez Reference Juez1991). Los fechados realizados señalaron una antigüedad de 990 ± 70 años aP (LP; carbón), 1510 ± 70 años aP (LP558; carbón) y 1690 ± 80 años aP (LP444; carbón; Tabla suplementaria 1; Bonnin y Laguens Reference Bonnin and Laguens1997; Marconetto et al. Reference Marconetto, Gastaldi, Lindskoug and Laguens2014:Tabla 1).
Por último, M3 fue caracterizado como un sitio al aire libre monticular aislado (Assandri Reference Assandri2007), compuesto por una acumulación de materiales arqueológicos. Ávila y Herrero (Reference Ávila and Herrero1991) identificaron dos momentos en la conformación del sitio: los niveles inferiores corresponden a ocupaciones pre-Aguada (1700 ± 60 aP, LP553, carbón; Bonnin y Laguens Reference Bonnin and Laguens1997) y los superiores a Aguada (1458 ± 44 aP, AA93889, hueso de camélido; Tabla suplementaria 1; Marconetto et al. Reference Marconetto, Gastaldi, Lindskoug and Laguens2014:Tabla 1). Las características del registro de este sitio dificultan establecer si se trató de un montículo basurero, un montículo ceremonial o ambos, por lo que es considerado como un sitio donde se halla una mezcla de lo doméstico con lo ritual (Pérez Gollán et al. Reference Pérez, José, Mirta, Andrés, Susana, Leonor, Mónica, José and Sofía1996–1997).
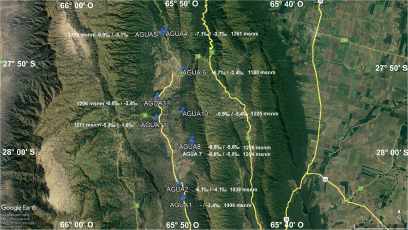
A los fines de tener un marco de referencia con el cual comparar los resultados de los análisis de las muestras de camélidos realizadas en este trabajo, se tomaron muestras del río Los Puestos y algunos de sus afluentes permanentes. Asimismo, se tomaron muestras en el río Singuil y dos de sus afluentes principales. En total se muestrearon 10 lugares, obteniéndose 19 muestras (Figura 2). Serna (Reference Serna2018) y Serna y colaboradores (Reference Serna, Prates, Valenzuela and Salazar-García2020) remarcan la importancia de usar marcos de referencia basados en muestras actuales de agua superficial, debido a que no siempre concuerdan con las predicciones de agua meteórica realizadas por Online Isotope in Precipitation Calculator (Bowen Reference Bowen2018), que son el resultado de modelos probabilísticos dependientes del número de mediciones reales que exista para un área determinada.
Mapa con la ubicación de los distintos puntos de muestreo. Notas: El primer valor es de mayo y el segundo de septiembre; AGUA 1: Camping Ayosa, Colpes; AGUA 2: vado, Colpes; AGUA 3: Arroyo Las Pircas, El Bolsón; AGUA 4: Arroyo Tabeque, Singuil; AGUA 5: Arroyo Navarro, Singuil; AGUA 6: Río Singuil; AGUA 7: Los Escobales, La Aguada; AGUA 8: La Aguada; AGUA 10: acequia, Chuchucaruana; AGUA 11: Los Varela. (Color en la versión electrónica)

Métodos
Para la determinación de los valores de referencia de δ18O(VSMOW) del Valle de Ambato se tomaron 19 muestras, obtenidas en los meses de septiembre de 2014 y mayo de 2017 en distintos cursos de agua permanentes. La toma de muestras en primavera y otoño se debe al interés de registrar la variabilidad estacional de estos valores, ya que el valle presenta concentración de lluvias en los meses de verano y deficiencia hídrica anual (Palmieri et al. Reference Palmieri, Olmos, Quiroga, de la Orden and Carma2005), lo cual se vio reflejado en la primera toma de aguas.
Las muestras tomadas en 2014 fueron analizadas en el Laboratorio de Isotopos Estables (INGEIS, CONICET-UBA) mediante espectroscopia láser (OA-ICOS: off-axis integrated cavity output spectroscopy) con un liquid-water analyzer Los Gatos Research (model year 2009). En tanto que los análisis de las muestras tomadas en 2017 se realizaron en el laboratorio del Grupo de Estudios Ambientales, IMASL (CONICET – Universidad Nacional de San Luis), mediante un analizador de isótopos de agua de espectroscopía de anillo de cavidad (CRDS) L2120-i (Picarro, Estados Unidos) acoplado a un módulo de vaporizador (A0211 high-precision vaporizer).
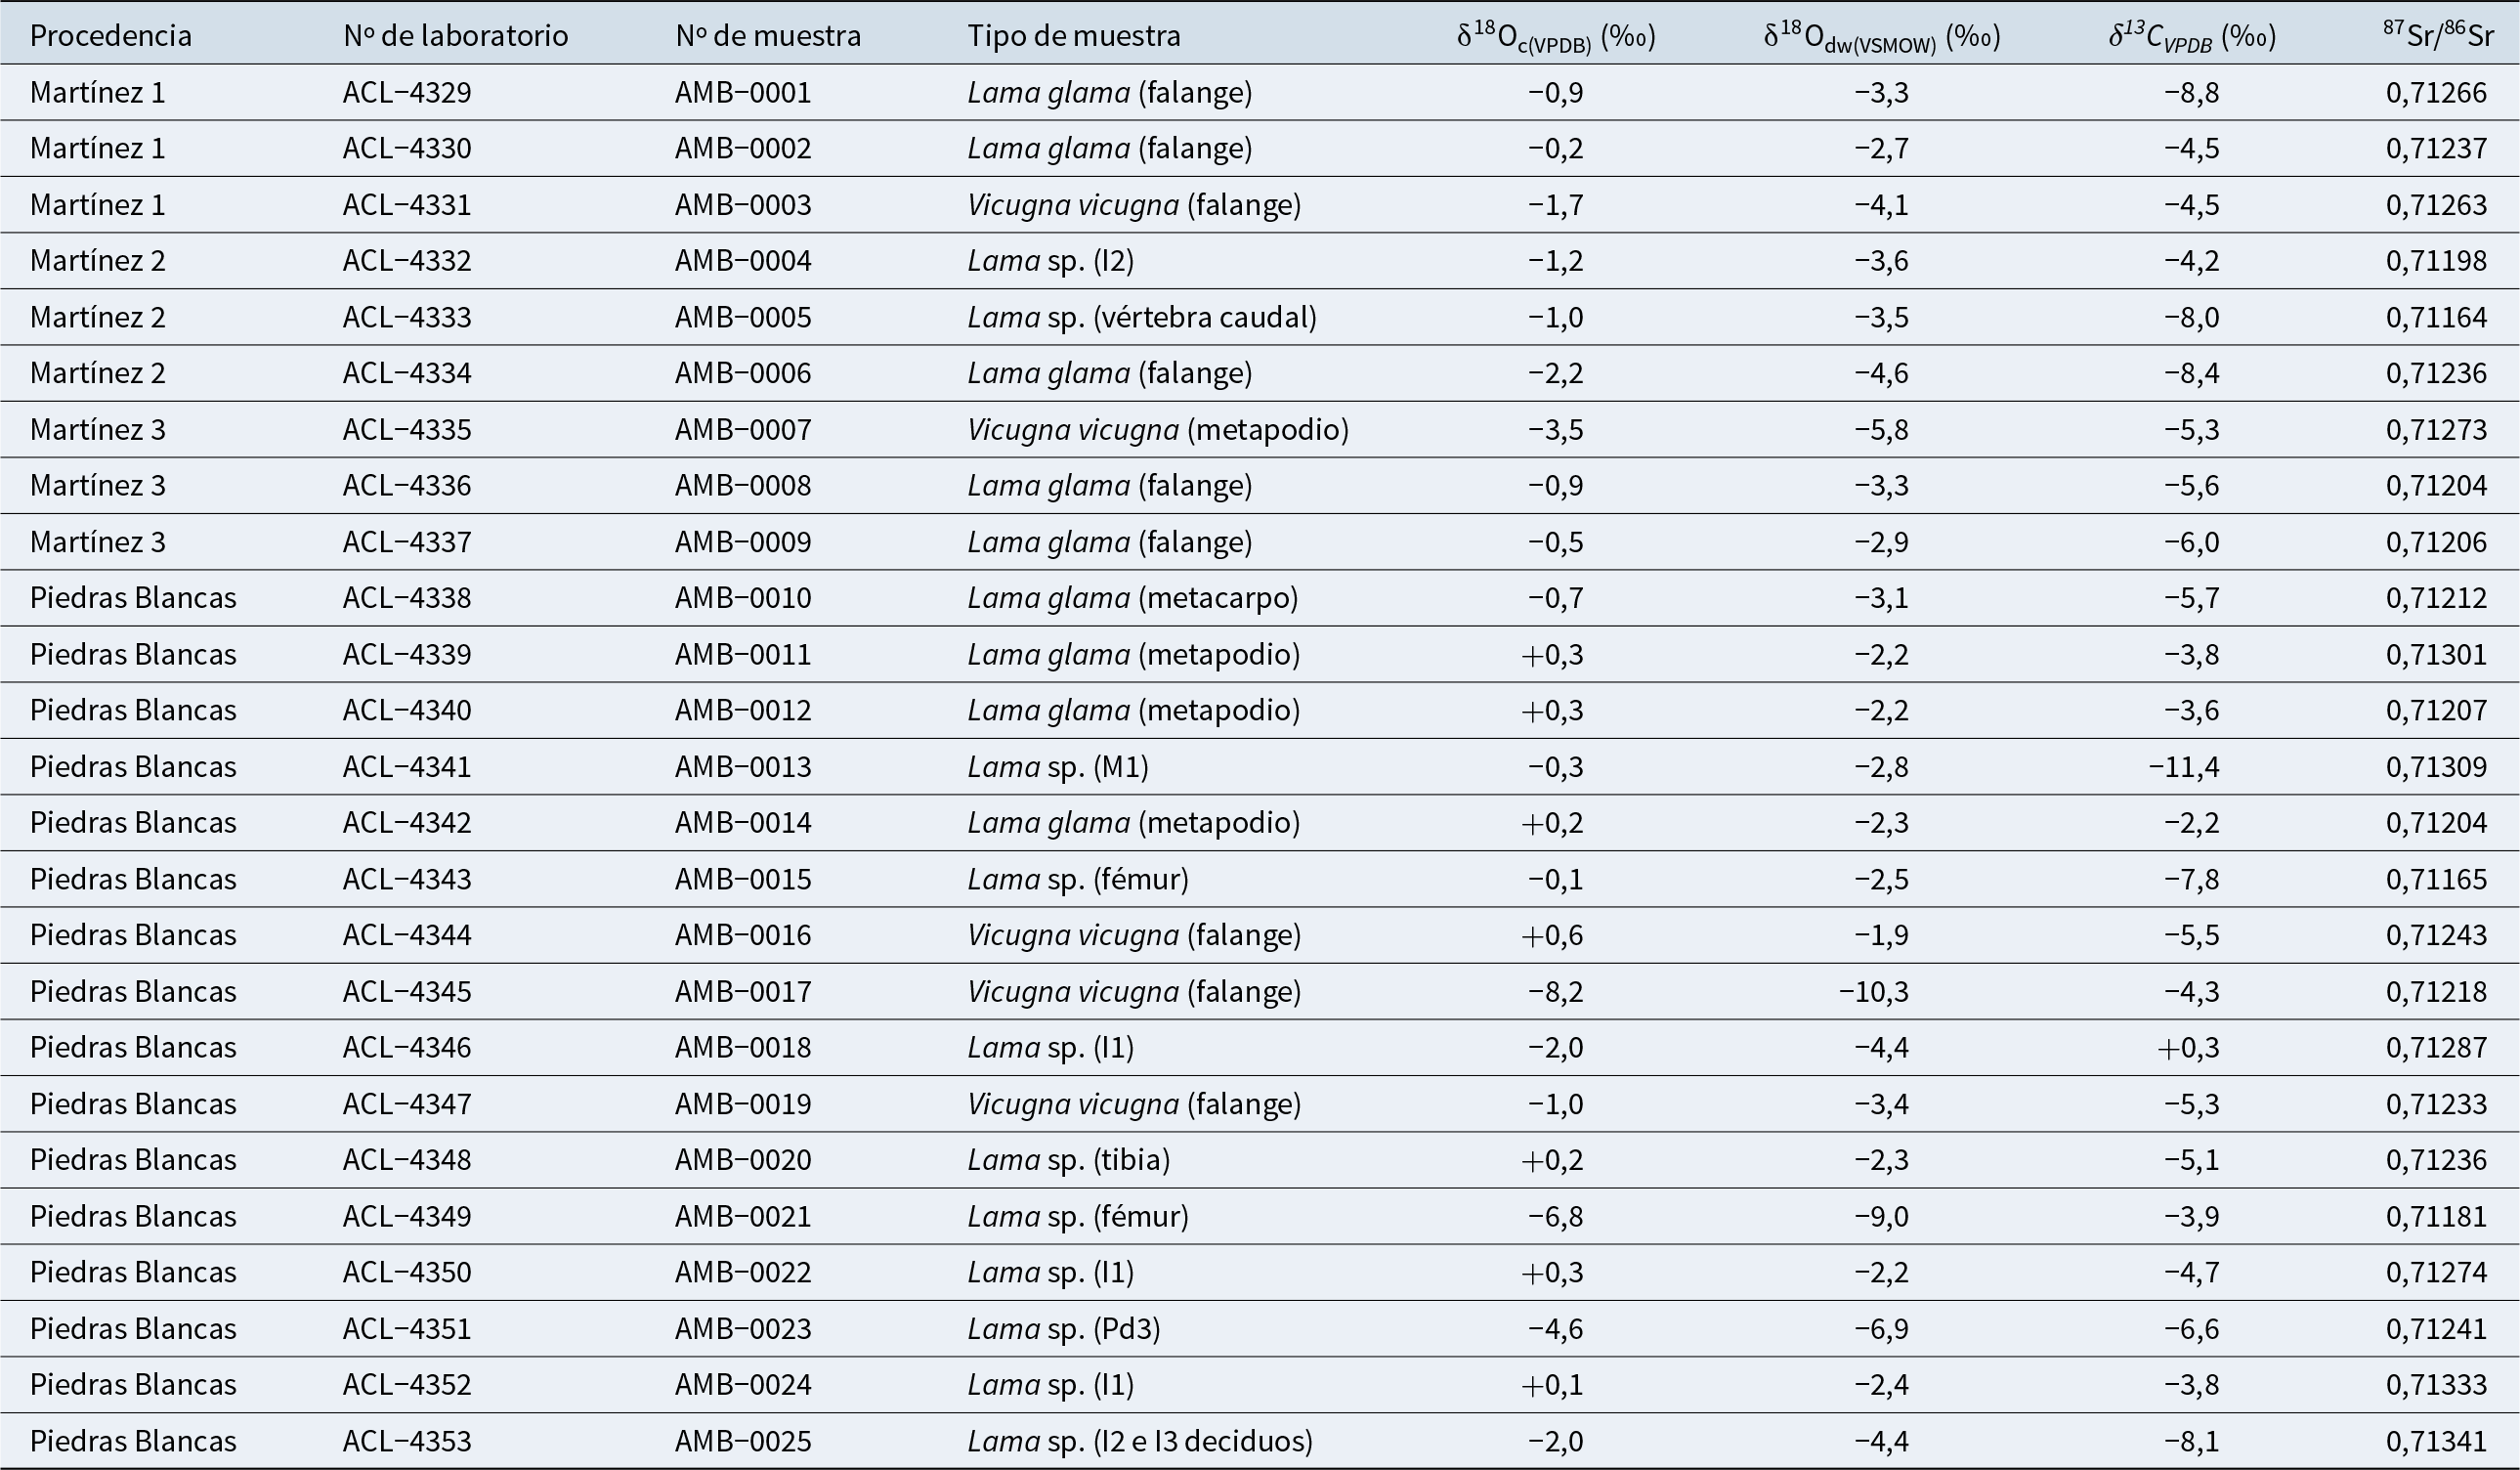
Las muestras arqueológicas estudiadas consisten en 25 especímenes de camélidos (PB: 16; M1: 3; M2: 3; M3: 3; que representan un 33% del total de individuos identificados en cada uno de los sitios): siete dientes y 18 fragmentos de huesos. Los dientes, por su morfología, corresponden exclusivamente al grupo de camélidos grandes (Lama sp.).Footnote 2 En el caso de los restos óseos se seleccionaron preferentemente aquellos especímenes que representasen a los distintos grupos de camélidos, tanto silvestres (i.e., Vicugna vicugna) como domésticos (i.e., Lama glama). Con este motivo, se realizaron estudios osteométricos que permitieron su identificación interespecífica. Las mediciones se realizaron en especímenes fusionados, con buen estado de conservación y que presentaban los puntos de medición necesarios (Elkin Reference Elkin1996; Izeta Reference Izeta, Gutiérrez, Miotti, Barrientos, Goñalons and Salemme2007; Kent Reference Kent1982). Además, se analizaron unos pocos especímenes de tamaño grande que no pudieron ser asignados dentro de estos dos grupos y fueron categorizados como Lama sp. Las muestras fueron recolectadas por la Dra. Dantas en el Laboratorio Ambato del Instituto de Antropología de Córdoba – Museo de Antropologías, FFyH, CONICET-UNC.
Estas muestras son huesos y dientes que se formaron en períodos diferentes. Mientras el esmalte dental se forma temprano en la vida, las muestras de hueso reflejan valores isotópicos de fuentes de alimentos y agua de momentos posteriores en la vida. El esmalte dental que se formó antes del destete se encuentra enriquecido en 18O (Roberts et al. Reference Roberts, Coward, Ewing, Savage, Cole and Lucas1988). Los camélidos generalmente amamantan durante unos seis meses, por lo que se espera que los primeros molares permanentes, que se forman en los primeros meses de vida, muestren un enriquecimiento en 18O. Sin embargo, también se observó que el esmalte de formación más temprana está desgastado y generalmente no está presente en los primeros molares muestreados aquí (véase también Dufour et al. Reference Dufour, Goepfert, Gutiérrez León, Chauchat, Franco Jordán and Vásquez Sánchez2014). Se recogieron muestras de esmalte a lo largo de la superficie vestibular o lingual de toda la corona, lo que representa años de formación del esmalte con la excepción del desgaste de los dientes durante la vida. Por el contrario, las muestras óseas analizadas aquí incluyen huesos con tiempos de renovación prolongados, como huesos largos, así como huesos con tasas de remodelación más cortas. Por lo tanto, se infiere, de manera conservadora, que representan la movilidad y la dieta a lo largo de la vida de los camélidos adultos, mientras que las muestras de esmalte reflejan momentos previos en la vida, durante la formación de la corona.
En el Archaeological Chemistry Laboratory del Arizona State Laboratory, las muestras de hueso y esmalte fueron fotografiadas y limpiadas mecánicamente por abrasión con un taladro Dremel Minimite-750 o un taladro de velocidad variable MultiPro Dremel 3956-02, equipados con un cortador de grabado. Esto eliminó cualquier materia orgánica o contaminante adherida, así como las capas más externas del diente, que son más susceptibles a la contaminación diagenética (Budd et al. Reference Budd, Janet, Barbara and Richard G.2000; Montgomery et al. Reference Montgomery, Paul Budd, Krause, Richard, Suzanne M., Young, Pollard and Robert1999; Waldron Reference Waldron1981, Reference Waldron1983; Waldron et al. Reference Waldron, Khera, Walker, Wibberly and Christopher1979). Luego, se removieron aproximadamente 20 mg de esmalte dental con un taladro Dremel Minimite-750 o un taladro de velocidad variable MultiPro Dremel 3956-02, equipados con un cortador de grabado. Como indicador de la contaminación diagenética en hidroxiapatita, se utilizaron datos de concentración elemental de las mismas muestras de esmalte y hueso. Todas las muestras de esmalte y hueso incluidas en este estudio exhibieron concentraciones mayores, menores y de oligoelementos consistentes con hidroxiapatita biogénica (véase Dantas y Knudson [Reference Dantas and Knudson2016] para mayor detalle).
La preparación de muestras para el análisis de isótopos de oxígeno y carbono del carbonato de hidroxiapatita arqueológica (δ18Oc, δ13Cc) se realizó en el Archaeological Chemistry Laboratory, bajo la dirección de la Dra. Knudson, de acuerdo con metodologías establecidas (Koch et al. Reference Koch, Tuross and Fogel1997). Para cada muestra de esmalte, se trataron aproximadamente 15 mg de esmalte dental en polvo con 0,60 ml de NaOCl al 2% y luego con 0,60 ml de CH3COOH 0,1 M. Para cada muestra de hueso, se trataron 20 mg de hueso en polvo con 0,80 ml de NaOCl al 2% y luego con 0,80 ml de CH3COOH 0,1 M.
Posteriormente, el análisis de las muestras preparadas se realizó en el Colorado Plateau Stable Isotope Laboratory (ahora llamado Arizona Climate and Ecosystems Isotope Laboratory) en la Northern Arizona University, bajo la dirección del Dr. Hungate, utilizando un espectrómetro de masas de relación isotópica Delta V Advantage (Delta V Advantage isotope ratio mass spectrometer) equipado con Gas Bench II. Se utilizaron los estándares internacionales NBS-18 y NBS-19 para crear la curva de calibración. Los estándares de laboratorio externos e internos (NBS-18, NBS-19, calcita Joplin (CC) y un estándar interno del laboratorio de carbonato de calcio [CaCO3]) fueron reproducibles dentro de un ± 0,2‰ para los valores de δ18Oc(VPDB) y δ13Cc(VPDB). La precisión estuvo dentro de ± 0,2‰ para los valores de δ18Oc(VPDB) en todos los estándares externos e internos analizados. Más específicamente, los análisis del estándar de trabajo de calcita Joplin (CC) arrojaron un valor medio de δ18Oc(VPDB) = −23,33 ± 0,09‰ (n = 15, 1σ) y δ13Cc(VPDB) = −5,09 ± 0,11‰ (n = 15, 1σ) el 9 de agosto de 2019; la reproducibilidad a largo plazo de Joplin (CC) en el Colorado Plateau Stable Isotope Laboratory es de aproximadamente ± 0,16‰ para δ18O. Además, la media es de δ18Oc(VPDB) = −13,12 ± 0,17‰ (n = 11, 1σ) y δ13Cc(VPDB) = −9,83 ± 0,11‰ (n = 15, 1σ) para un estándar interno de laboratorio de carbonato de calcio (CaCO3). Los valores de isótopos de oxígeno y carbono se informan en relación con el estándar de carbonato V-PDB (Vienna PeeDee Belemnite) y se expresan en partes por mil (‰) usando la siguiente fórmula estándar: δ18O = (([18O/16Omuestra]/[18O/16Oestándar]) − 1) × 1.000 (Coplen Reference Coplen1994; Craig Reference Craig1961).
Para comparar los valores obtenidos de las muestras de agua superficial con los obtenidos de las muestras arqueológicas, empleamos las ecuaciones de conversión presentadas a continuación:
• δ18Oc(VSMOW) = (1,03091 × δ18Oc(VPDB)) + 30,91 (Coplen et al. Reference Coplen, Kendall and Hopple1983)
• δ18Ofostato(VSMOW) = (δ18Oc(VSMOW) – 8,33)/1.035 (Lécuyer et al. Reference Lécuyer Christophe, Martineau, Fourel, Bernard, Amiot and Gardien2010)
• δ18Odrinking water(VSMOW) = 1,113 × δ18Ofosfato (VSMOW) – 26,411 (Amiot et al. Reference Amiot, Christophe, Eric, Frédéric, Serge and François2004)
Estamos conscientes de que estas ecuaciones pueden introducir errores (Daux et al. Reference Daux, Christophe, Marie-Anne, Romain, François, François, Niels, Hervé, Laurent and Gilles2008; Pollard et al. Reference Pollard, Pellegrini and Julia2011); no obstante, es la forma de inferir las posibles fuentes de agua bebida para de este modo poder comprender mejor los orígenes geográficos de los animales aquí estudiados (Knudson y Torres Reference Knudson, Torres, Beasley and Andrew2023).
Siguiendo a Dufour y colaboradores (2014; véase también Webb y Miller 2014), se aplicó una corrección del −1,5‰ a los valores de δ18Oc(VPDB) obtenidos del esmalte dental, con el fin de compararlos con los obtenidos del carbonato estructural del hueso.
Resultados
Muestras de agua del Valle de Ambato
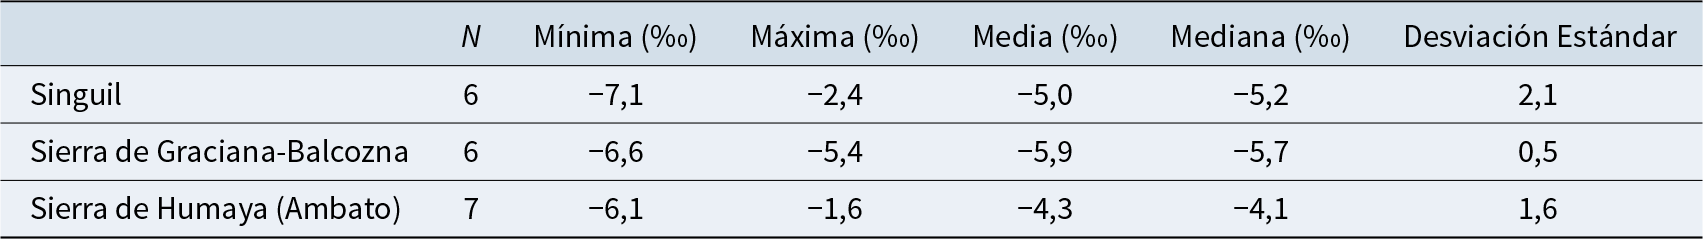
Considerando los datos de las muestras actuales por sectores, en la ladera del Ambato la media es de δ18O(VSMOW) = −4,3‰ ± 1,6‰ (n = 7, 1σ), en Singuil es de δ18O(VSMOW) = −5,2‰ ± 2,1‰ (n = 6, 1σ) y en la sierra Graciana-Balcozna es de δ18O(VSMOW) = −5,7‰ ± 0,5‰ (n = 6, 1σ). Así, en la vertiente oriental del valle (sierra Graciana-Balcozna) la variabilidad de las muestras es menor, con una menor desviación estándar y un valor promedio más bajo. No obstante, los valores de los otros dos sectores se superponen con los de esta sierra y entre sí, por lo que no es posible distinguirlos. Sólo se puede observar una leve tendencia en Singuil a valores más bajos (con mayor desviación estándar) y en la ladera del Ambato, a más altos (Tabla 1; Figura 2; Tabla suplementaria 2). El test Welch F confirma que las diferencias entre los distintos grupos no son significativas (F = 2,222, df = 7,58, p = 0,174, test Levene para homogeneidad de varianzas p = 0,001).
Estadística descriptiva de las muestras actuales de aguas superficiales.

Al analizar los valores obtenidos en primavera y otoño por separado se identifica una marcada variación estacional en la cuenca del río Los Puestos (ladera del Ambato septiembre δ18O(VSMOW) = −3,0‰ ± 1,3‰; ladera del Ambato mayo δ18O(VSMOW) = −5,8‰ ± 0,4‰; ladera Graciana septiembre δ18O(VSMOW) = −5,5‰ ± 0,1‰; ladera Graciana mayo δ18O(VSMOW) = −6,3‰ ± 0,4‰) y en la cuenca de Singuil (septiembre δ18O(VSMOW) = −3,1‰ ± 0,6‰; mayo δ18O(VSMOW) = −6,9‰ ± 0,2‰). En este caso, esta observación es estadísticamente significativa (test Welch F: F = 23,85, df = 5,112, p = 0,002, test Levene para homogeneidad de varianzas p = 0,03). En la ladera oriental esta variabilidad es menor, lo cual podría estar vinculado a una mayor disponibilidad de agua a lo largo del año. En cambio, el lado occidental es más árido, lo que se refleja en la actualidad en que ambos sectores tienen variaciones en su vegetación (de la Orden y Quiroga Reference la Orden, Eduardo and Quiroga1997). Además, esto se manifiesta en que en la ladera del Ambato algunos arroyos se secan durante el invierno y el caudal de los arroyos permanentes baja drásticamente, principalmente durante la primavera antes del inicio de las lluvias, llegando al extremo de tener que racionar la distribución del agua para las viviendas. Esta situación no se suele dar de igual modo en la ladera este del valle.
Estas diferencias en los distintos sectores se dan principalmente en septiembre, cuyos valores representan otoño e invierno cuando no hay lluvias. Por el otro lado, los valores de mayo son el resultado de finales de la época de lluvias en verano. Esta información podría señalar, en concordancia con lo mencionado por Fritz (Reference Fritz, Gat y and Gonfiantini1981) y Mook (Reference Mook2000), que los valores registrados son un reflejo de los valores del agua de lluvia, lo cual es característico de cuencas endorreicas que presentan un reservorio muy limitado de aguas subterráneas almacenadas, por lo que su aporte al caudal de los ríos es escaso o nulo y, en consecuencia, el aporte primordial habría provenido del agua de la lluvia caída durante el verano.
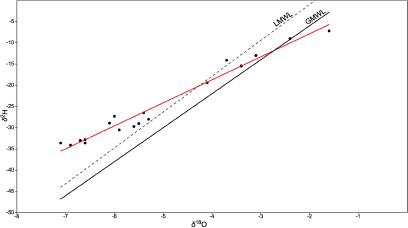
En la Figura 3 se presentan los valores de δ18O(VSMOW) y de δ2H(VSMOW), la línea meteórica global (GMWL, global meteoric water line) y la línea meteórica local (LMWL, local meteoric water line), calculada en base a los valores presentados en Rohrmann y colaboradores (2014) para los Andes centro sur. La línea de regresión presenta una pendiente de 5,4, lo cual es coherente con una recta de evaporación como la que se da en zonas semi-áridas con suelos pesados (Craig Reference Craig1961; Gat Reference Gat1996) y con lo señalado en el párrafo anterior sobre las cuencas endorreicas.
Valores de δ18O(VSMOW) y δ2H(VSMOW), línea meteórica global y línea meteórica local para los Andes centro sur (Rohrmann et al. Reference Rohrmann, Strecker, Bookhagen, Mulch, Sachse, Pingel, Alonso, Schildgen and Montero2014). Notas: GMWL = global meteoric water line/línea meteórica global; LMWL = local meteoric water line/ línea meteórica local. (Color en la versión electrónica)

Muestras arqueológicas
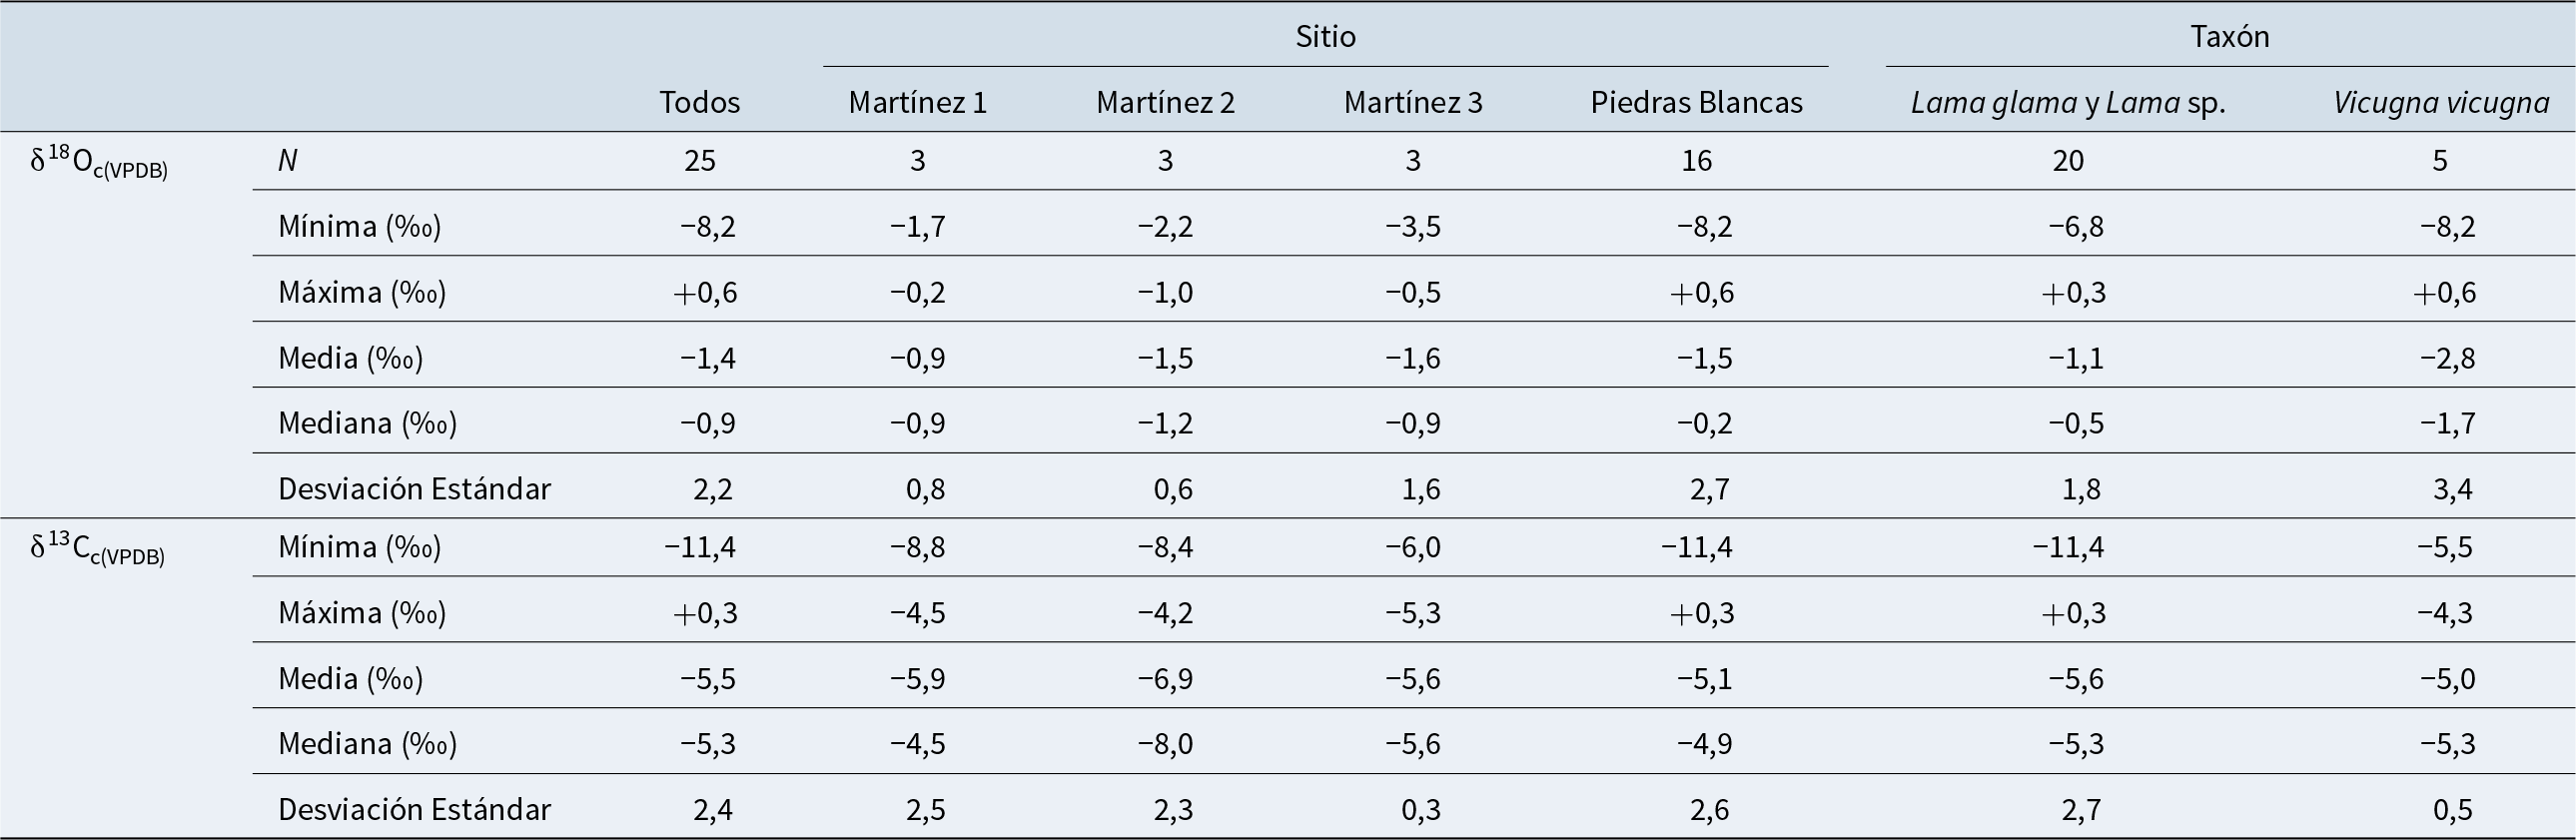
Los resultados de los análisis de los huesos y dientes de camélido varían entre δ18Oc(VPDB) = + 0,6‰ y −8,2‰, con una media de δ18Oc(VPDB) = −1,4‰ ± 2,2‰ (n = 25, 1σ) y δ13Cc(VPDB) = + 0,3‰ y −11,4‰, con una media de δ18Oc(VPDB) = −5,5‰ ± 2,4‰ (n = 25, 1σ; Tablas 2 y 3).
Resultados de las muestras arqueológicas.

Nota: Los valores radiogénicos de estroncio fueron publicados previamente en Dantas y Knudson (Reference Dantas and Knudson2016).
Estadística descriptiva de los valores de δ18Oc(VPDB) y δ13Cc(VPDB) de camélidos.

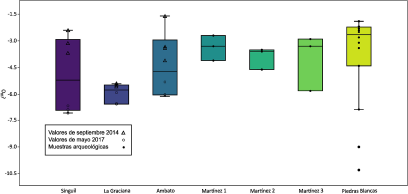
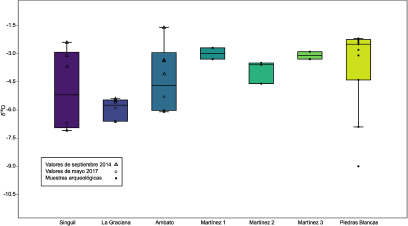
En la Figura 4 se comparan los datos convertidos en δ18Odw(VSMOW) con la composición isotópica del agua superficial actual (δ18O(VSMOW)). Si bien las medianas de las muestras arqueológicas son más altas, hay superposición con los valores actuales, en especial con los de la ladera del Ambato y la cuenca de Singuil. En el gráfico los valores de PB presentan menor variabilidad que en el análisis estadístico (Tabla 3); esto se debe a que hay dos especímenes que son discriminados como outliers. No obstante, es el sitio que tiene los valores más altos y bajos de la muestra analizada. M2 es el sitio que presenta menor variación en sus resultados.
Valores de δ18Odw(VSMOW) de cada sitio por separado y del agua superficial agrupada por zonas geográficas. (Color en la versión electrónica)

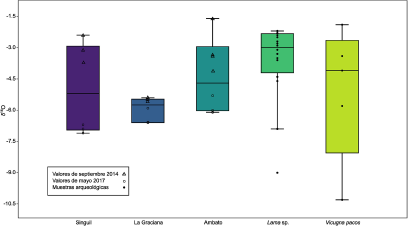
Si se consideran por separado, los valores de las muestras de Vicugna vicugna son mucho más variables que los de Lama sp., que en general son más altos y presentan menor dispersión (Figura 5). Al eliminar los especímenes de vicuña, se puede observar que la variabilidad dentro de M1 y M3 disminuye. En el caso de PB, si bien la mediana se vuelve más alta y disminuye su variabilidad, sigue siendo el sitio que presenta la mayor desviación estándar (PB = 2,2‰; M1 = 0,5‰; M2 = 0,6‰; M3 = 0,3‰), con los especímenes con valores más altos y bajos (Figura 6).
Valores de δ18Odw(VSMOW) de los especímenes identificados como Vicugna pacos y Lama sp. (Lama glama y Lama sp.) por separado, y del agua superficial agrupada por zonas geográficas. (Color en la versión electrónica)

Valores de δ18Odw(VSMOW) de Lama sp. y Lama glama de cada sitio por separado, y del agua superficial agrupada por zonas geográficas. (Color en la versión electrónica)

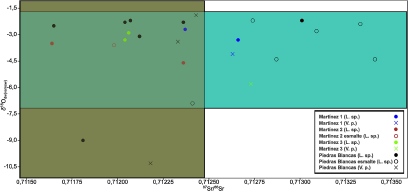
En la Figura 7 se comparan los datos de δ18Odw(VSMOW) y 87Sr/86Sr en referencia a la línea base de agua superficial (δ18O(VSMOW) = −1,6‰/−7,1‰) y el rango local para estroncio (87Sr/86Sr = 0,71025/0,71249; Dantas y Knudson Reference Dantas and Knudson2016). Esto permite observar que 24 especímenes se encuentran dentro del rango local de oxígeno. Los únicos dos especímenes que están fuera de este rango proceden de PB y presentan valores de δ18Odw(VSMOW) más bajos. Dentro de los especímenes que presentan valores dentro del rango local se encuentran huesos y dientes del grupo de camélidos grandes. En cuanto a los especímenes identificados como vicuñas (n = 5), si bien presentan una amplia variabilidad, cuatro se agrupan dentro del rango local y uno con valores más negativos (Figuras 5 y 7). Por su parte, de acuerdo a los resultados de 87Sr/86Sr, nueve especímenes serían foráneos y 16 locales. Al entrecruzar ambos isótopos, 14 especímenes se incluyen plenamente dentro del rango local, entre los cuales se incluyen todos los especímenes de M2, ambos Lama glama de M3, un espécimen de Lama glama de M1, cinco Lama glama, dos dientes Lama sp. y dos falanges identificadas como Vicugna vicugna de PB.
Resultado de los valores de δ18Odw(VSMOW) y de 87Sr/86Sr. Notas: El área sombreada horizontal corresponde a la línea base del agua superficial del Valle de Ambato; el área sombreada vertical indica el rango local para estroncio disponible biológicamente; L. sp. = Lama sp.; V. p. = Vicugna pacos. (Color en la versión electrónica)

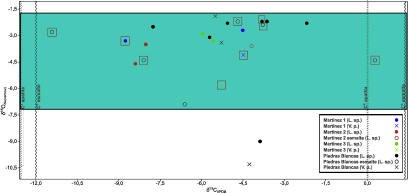
Finalmente, los valores de δ18Odw(VSMOW) y δ13Cc(VPDB) se relacionan en la Figura 8. Las líneas verticales marcan las predicciones para apatita y para esmalte dental, tomadas de Dufour y colaboradores (2014),Footnote 3 para camélidos con una alimentación C3 y C4. El rectángulo indica la línea base de agua superficial. Se puede distinguir que sólo un incisivo de PB presenta un valor de +0,28‰ próximo a una alimentación C4 pura y otro incisivo con un valor de −11,42‰ muy cercano a una alimentación exclusiva C3. Dentro de los especímenes con dieta mixta, en su mayoría indican una mayor ingesta de plantas C4, incluyendo aquellos especímenes identificados como vicuñas. Al incorporar los especímenes que presentaron valores no locales en los isótopos de estroncio (marcados con un recuadro rojo) resalta, por un lado, que los dos especímenes de PB señalados, con los valores más positivos y negativos de δ13Cc(VPDB), son foráneos según sus valores de estroncio. Por el otro, que los especímenes de Vicugna vicugna presentan escasa variación en sus valores de δ13Cc(VPDB) (DE = 0,5; Tabla 3), independientemente de su sitio de procedencia y valores de δ18Odw(VSMOW) y 87Sr/86Sr, en contraposición a los especímenes de Lama glama y Lama sp. que tienen una amplitud de valores mucho mayor (DE = 2,7; Tabla 3). Además, los camélidos de PB son los que registran los valores más positivos de δ13Cc(VPDB), llegando las plantas con fotosíntesis tipo C4 a comprender casi un 75% de su dieta o más, tanto en el caso de dos especímenes que se encuentran dentro de los rangos locales de δ18O(VSMOW) y 87Sr/86Sr, como de aquellos que dan foráneos en alguno de estos isótopos.
Resultado de los valores de δ18Odw(VSMOW) y de δ13CVPDB. Notas: El área sombreada horizontal corresponde a la línea base del agua superficial del Valle de Ambato; las líneas verticales representan las predicciones para apatita y para esmalte dental, para camélidos con una alimentación C3 y C4 (Dufour et al. Reference Dufour, Goepfert, Gutiérrez León, Chauchat, Franco Jordán and Vásquez Sánchez2014); los cuadrados rojos marcan los especímenes con valores de estroncio no locales; L. sp., = Lama sp.; V. p., = Vicugna pacos. (Color en la versión electrónica)

Discusión y consideraciones finales
Mediante los análisis realizados en este trabajo buscamos indagar en torno a la movilidad de los camélidos dentro del Valle de Ambato. A los fines de abordar este objetivo, en primer lugar, llevamos a cabo tomas de muestras de aguas superficiales actuales con el propósito de caracterizar los valores locales de δ18O(VSMOW); en segundo lugar, analizamos muestras de especímenes óseos de camélidos que representan distintos orígenes y/o manejos posibles, es decir, domesticados y silvestres, de diversos sitios dentro del valle.
En cuanto a las muestras de agua actuales, se registró una variación estacional significativa en los valores de δ18O(VSMOW). La línea meteórica local es concordante con una recta de evaporación característica de zonas semi-áridas, con cuencas endorreicas cuyo aporte de agua principal habría provenido del agua de la lluvia estival. Rohrmann y colaboradores (2014) plantean que en las cuencas intermontanas de los Andes, entre los 26° y 28° S, la presencia de tormentas convectivas profundas genera relaciones no sistemáticas entre isótopos estables y elevación, lo que enmascararía o reduciría el fraccionamiento isotópico vinculado con el aumento de altitud y el enfriamiento de las masas de aire. Por su parte, los análisis realizados en Fiambalá y Chaschuil (Ostera et al. Reference Ostera, Laprida, Dapeña and Ratto2005; Ratto et al. Reference Ratto, Luna, Aranda and Gil2019) presentan gran variabilidad, así como en la cuenca de la Salina de Ambargasta (Zanor et al. Reference Zanor, Piovano, Ariztegui and Vallet-Coulomb2012), en especial en las zonas de altitudes más elevadas donde se registran valores más extremos, tanto negativos, como positivos. La amplitud de valores es tan grande que estos no sólo se superponen con los datos obtenidos para el Valle de Ambato, sino que presentan un enriquecimiento en 18O notablemente más elevado.
Respecto a los estudios realizados a los especímenes de camélidos, resalta la amplia variabilidad de los valores de δ18Oc(VPDB), yendo entre +0,6‰ y −8,2‰, con una media de −1,4‰ ± 2,2‰. Un número importante de los mismos concuerda con la línea base de aguas locales (92%), entre los cuales se encuentran tanto huesos de los cuatro sitios, como dientes de PB y M2. Ahora bien, a pesar de que la mayoría de los datos obtenidos para los isótopos de oxígeno son concordantes con los valores locales, no permiten corroborar por sí mismos el lugar de origen de estos camélidos, debido al bajo nivel de especificidad observado hasta el momento para este isótopo en la región.
Sin embargo, si se integran estos resultados con los valores de 87Sr/86Sr obtenidos para los mismos especímenes, este panorama cambia, ya que los isótopos de oxígeno ayudarían a corroborar y/o refutar la localía de algunos especímenes y viceversa. Por ejemplo, en el caso de las muestras que concuerdan con los valores locales de oxígeno, pero que tienen valores que se encuentran fuera del rango de estroncio disponible biológicamente; asimismo, en cuanto a los dos especímenes que presentan valores más bajos de δ18Odw(VSMOW) y locales de 87Sr/86Sr, lo que indica que pudieron proceder de alguna región de mayor altitud que el Valle de Ambato, aunque dentro de un rango no tan distante (Figura 7).
Acerca de los especímenes adscriptos a vicuña, llama la atención que los valores de dos de ellos coinciden con la línea de base de agua superficial y el estroncio local (Tablas 2 y 3; Figuras 7 y 8). Estos individuos generan el interrogante de la causa de estos valores, ya que las vicuñas no se encuentran actualmente en altitudes tan bajas, sino que habitan por arriba de los 3.000 m snm. ¿Estas muestras corresponden a animales traídos de alguna región que presenta naturalmente estos valores? ¿Proceden de individuos que fueron traídos como crías y mantenidos en cautiverio? O ¿eran animales que tenían alguna enfermedad que generó alteraciones en su metabolismo, causando estos valores? Lamentablemente, no se recuperaron dentro de los sitios arqueológicos dientes que pudieran ser adscriptos a vicuña, como para comenzar a responder a estas incógnitas. Tampoco los valores de agua actuales obtenidos en Singuil se diferencian de los registrados en la ladera del Ambato o la sierra de Graciana-Balcozna, como para poder discriminar entre los especímenes procedentes de cada una de ellas y, de este modo, corroborar o refutar lo planteado en las referencias históricas sobre la presencia de vicuñas en Singuil (Larrouy Reference Larrouy1914).
Un aspecto que sí es posible considerar es que, dada la amplia dispersión en los valores de δ18Oc(VPDB) de estos cinco especímenes de camélidos chicos (DE = 3,4; Tabla 3; Figura 7), muy probablemente no tuvieron un mismo lugar de proveniencia, es decir, que procedieron de regiones que presentan distinta composición isotópica de oxígeno. La vicuña tiene una organización social que corresponde a grupos no migratorios y territoriales (Wheeler Reference Wheeler2006), lo cual daría valores más uniformes (Samec y Yacobaccio Reference Samec and Yacobaccio2021), en contraposición a lo aquí observado. No obstante, desde el análisis de los isótopos radiogénicos de estroncio, realizado a las mismas muestras, sus valores no varían tanto entre si (tienen una DE = 0,00022, menor que las muestras actuales de referencia [0,00056]) y no difieren en demasía de los valores locales (Dantas y Knudson Reference Dantas and Knudson2016:246). Por este motivo, Dantas y Knudson (Reference Dantas and Knudson2016) consideraron que pudieron provenir de sectores aledaños o no tan distantes al valle, como la cima de la Sierra de Ambato-Manchao o la Sierra del Aconquija que corresponden a la misma formación geológica de las Sierras Pampeanas Noroccidentales y podrían tener valores no tan disímiles a los del Valle de Ambato.
Otra particularidad que resalta de estos especímenes es que independientemente de su posible lugar de origen, su alimentación fue semejante, con una dieta mixta cuyos valores de δ13Cc(VPDB) habrían variado entre −5,5‰ y −4,3‰ (Tabla 3; Figura 8). Esto habría representado una composición aproximada de entre un 60% y 69% de plantas con fotosíntesis C4. Una proporción notoriamente disímil a la registrada, por ejemplo, por Samec y Yacobaccio (Reference Samec and Yacobaccio2021) para animales de tamaño pequeño procedentes de Cueva Chayal en Jujuy a 3.700 m snm (−10,6‰ a −9,1‰, media −9,7‰). Desde los valores de δ13Ccolágeno(VPDB), también se registró una mayor proporción de ingesta de plantas C3, tanto en muestras arqueológicas como en muestras actuales. Así, en especímenes arqueológicos procedentes del oeste de Tinogasta (Catamarca), Miyano (Reference Miyano2020) observó una oscilación entre −18,7‰ y −15,6‰; mientras que, en la Puna Septentrional Argentina, Samec y colaboradores (2018) registraron una variación entre −19,1‰ y −13,1‰ y, para la Puna Meridional de Argentina, Grant (Reference Grant2017) identificó una dieta comprendida entre los valores de −19,8‰ y −12,5‰.
Con referencia a los camélidos de tamaño grande, la mayor parte, tanto de los individuos que habrían sido criados dentro del valle, como los procedentes de zonas externas, mantuvieron un patrón de alimentación que varió entre mixta y con mayores proporciones de plantas tipo C4. Esto remarca lo que se viene observando desde δ13Ccolágeno(VPDB) para el valle sobre la presencia de dos tipos de rebaños. Uno con una práctica de rebaños a campo abierto y una movilidad amplia, que se habría identificado principalmente en los sitios M1, M2 y M3 (Dantas y Figueroa Reference Dantas and Figueroa2018; Dantas, Figueroa y Laguens Reference Dantas, Germán and Andrés2014; Dantas, Figueroa et al. Reference Dantas, Germán G., Andrés and Andrés2014). El segundo tipo de rebaños se habría identificado en PB, donde los resultados de δ13Ccolágeno(VPDB) arrojaron la presencia de llamas que tuvieron una movilidad mayormente restringida, en torno a los corrales localizados entre los campos de cultivo, y recibieron una alimentación controlada en base a maíz (Dantas y Figueroa Reference Dantas and Figueroa2018; Dantas, Figueroa y Laguens Reference Dantas, Germán and Andrés2014; Dantas, Figueroa et al. Reference Dantas, Germán G., Andrés and Andrés2014). Los valores de δ13Cc(VPDB) también indican la presencia en PB de individuos con ingesta elevada de plantas C4. Respecto a los patrones de consumo de los camélidos, de acuerdo a la especie y en función de diferentes consumidores, lo local o foráneo puede haber constituido una categoría de diferenciación social o de prestigio, debido a que se observan ciertas diferencias entre los tipos de camélidos que habrían ingresado en los sitios estudiados. Por un lado, si se consideran sólo los animales silvestres en los sitios M3 y M1, serían foráneos, mientras que, en PB, dos especímenes serían locales y uno posiblemente foráneo, desde el δ18O. Por otro lado, los camélidos domesticados que tienen valores de isótopos de oxígeno y estroncio no locales proceden principalmente de PB. En tanto que, en los tres sitios restantes, donde los valores de δ13Ccolágeno(VPDB) permiten inferir una práctica de manejo de los animales con pastoreo a campo abierto, los valores de oxígeno y estroncio son predominantemente locales.
Como ya fue observado por Dantas y Knudson (Reference Dantas and Knudson2016), esto puede estar vinculado con la existencia de circuitos diferenciados de circulación de algunos bienes específicos a los que tuvieron acceso casi exclusivo los habitantes de PB, y donde habrían ingresado mayor cantidad y variedad de bienes. Así, en cuanto a los animales domésticos, no sólo se habrían consumido animales provenientes de los rebaños locales, sino también camélidos obtenidos por intercambio.
A modo de cierre, cabe mencionar que resultó valiosa la adición de análisis de otros tipos de isótopos a los ya disponibles para las muestras de camélidos bajo investigación, ya que su combinación posibilitó profundizar algunos interrogantes que guiaron este estudio. Asimismo, se puede decir que los resultados alcanzados permiten observar la presencia de animales domésticos y silvestres con patrones locales y foráneos, lo que posibilita confirmar la existencia de distintos lugares de crianza para los camélidos consumidos dentro del Valle de Ambato. Entre estos, un grupo de animales de rebaño habría sido criado localmente, en tanto que otro habría ingresado al valle por intercambio o acceso directo, más allá de que todavía no está claro su lugar de origen.
Agradecimientos
A Germán Figueroa, a los compañeros del Laboratorio Ambato Norte del IDACOR – Museo de Antropologías (CONICET-UNC) y al pueblo de Los Varela, Catamarca, Argentina. A la Dirección Provincial de Antropología, Ministerio de Cultura y Turismo, Provincia de Catamarca, por otorgarnos la autorización de exportar las muestras arqueológicas para su análisis. También, queremos expresar nuestro agradecimiento a los técnicos de laboratorio del Archaeological Chemistry Laboratory de la Arizona State University y del Arizona Climate and Ecosytems Isotope Laboratory de la Northern Arizona University.
Declaración de financiamiento
Este estudio fue financiado por subsidios de la Agencia Nacional de Promoción Científica y Tecnológica (PICT 2011-1945, PICT 2017-2756) y la Secretaría de Ciencia y Tecnología de la Universidad Nacional de Córdoba.
Declaración de disponibilidad de datos
Los datos utilizados en el presente artículo están disponibles en la Tabla 2 y la Tabla suplementaria 2.
Conflicto de intereses
Las autoras declaran que no hay ningún conflicto de intereses.
Materiales suplementarios
Para acceder a los materiales suplementarios que acompañan este artículo, visitar https://doi.org/10.1017/laq.2025.8.
Tabla suplementaria 1. Fechados radiocarbónicos de los sitios Martínez 1, Martínez 2, Martínez 3 y Piedras Blancas (datos tomados de Bonnin y Laguens Reference Bonnin and Laguens1997; Marconetto et al. Reference Marconetto, Gastaldi, Lindskoug and Laguens2014:Tabla 1).
Tabla suplementaria 2. Resultados de las muestras de agua superficiales.