Durante las últimas décadas, el análisis de restos óseos de vertebrados recuperados en contextos arqueológicos ha cobrado un creciente interés y tanto los estudios zooarqueológicos como tafonómicos se han convertido en importantes herramientas para entender los procesos y agentes involucrados en la formación del registro arqueológico (Behrensmeyer et al. Reference Behrensmeyer, Kidwell and Gastaldo2000; Fernández-Jalvo y Andrews Reference Fernández-Jalvo and Andrews2016). Las investigaciones sobre restos óseos de micromamíferos recuperados en sitios arqueológicos han crecido considerablemente en los últimos veinte años en el extremo meridional de Sudamérica (Fernández, Teta y Pardiñas Reference Fernández, Teta and Pardiñas2017; Frontini y Escosteguy Reference Frontini and Escosteguy2015 y referencias allí citadas). El desarrollo de estos estudios ha contribuido a mejorar el conocimiento acerca de los sistemas humanos y ambientales regionales en el pasado. Desde una perspectiva tafonómica y paleoambiental, estas investigaciones han contribuido a distinguir tanto los posibles agentes acumuladores de dichos restos óseos (naturales y antrópicos), así como las variaciones ambientales a nivel regional y local a través del tiempo. Recientemente, el estudio de micromamíferos recuperados en sitios arqueológicos del Centro-Occidente Argentino (COA), también se integró en la discusión sobre las estrategias humanas de subsistencia de los grupos cazadores-recolectores a nivel regional y su variación a través del tiempo (López et al. Reference López, Neme and Gil2019).
Los micromamíferos, por lo general, poseen requerimientos ecológicos acotados. El estudio de sus restos óseos recuperados en sitios arqueológicos permite realizar inferencias sobre los ambientes del pasado con base en el conocimiento de los requerimientos ambientales y la comparación con la distribución actual de los taxa (Andrews Reference Andrews1995; Fernández-Jalvo et al. Reference Fernández-Jalvo, Scott and Andrews2011).
Estos pequeños animales son frecuentemente detectados en la dieta de diferentes depredadores, tanto aves rapaces como mamíferos carnívoros (Andrews Reference Andrews1990; Bellocq Reference Bellocq2000). Estos depredadores, a través de la deposición de sus egagrópilas o heces y de restos no ingeridos producto de la depredación, han contribuido a la acumulación de considerables cantidades de restos óseos de micromamíferos en sitios arqueológicos y paleontológicos de diversas partes del mundo, incluyendo muchos sitios de Argentina (Andrews Reference Andrews1990; Fernández y Montalvo Reference Fernández and Montalvo2017; Pardiñas Reference Pardiñas1999 y referencias allí citadas).
A pesar de la valiosa información que provee este tipo de restos recuperados en contextos arqueológicos, los estudios zooarqueológicos en el COA sobre restos óseos de micromamíferos son escasos, y la mayoría se han realizado al sur del Río Diamante (Fernández Reference Fernández2012; Fernández y Pardiñas Reference Fernández and Pardiñas2018; Fernández et al. Reference Fernández, Moreira, Neme and De Santis2009; Fernández, Neme y De Santis Reference Fernández, Neme and De Santis2015; Fernández, Rudzik et al. Reference Fernández, Martín Rudzik, Neme and De Santis2015). Por el contrario, en el norte de Mendoza este tipo de estudios comenzó a realizarse recientemente (Castillo et al. Reference Castillo, López and Chiavazza2018; López y Chiavazza Reference López and Chiavazza2019; López et al. Reference López, Chiavazza and Rosi2016). Generalmente, las investigaciones zooarqueológicas en esta última área no han abordado el registro óseo de micromamíferos, o han aplicado metodologías inespecíficas. Asimismo, en el área se han realizado algunos estudios tafonómicos actualísticos para evaluar las señales tafonómicas que generan distintos depredadores sobre los restos de sus presas, aumentando el conocimiento tafonómico sobre sus potenciales agentes acumuladores (López et al. Reference López, Fernández, Castillo and Pereyra-Lobos2018; López, Fernández et al. Reference López, Fernández, Montalvo, Chiavazza and De Santis2017; López, Rosi et al. Reference López, Rosi, Tabeni, Bender and Chiavazza2017).
Sobre la base de diferentes índices paleoclimáticos (e.g., polen, glaciares) se ha observado una estabilidad climática general para los últimos 4.000 años en el COA (Navarro et al. Reference Navarro, Rojo, De Francesco, Hassan, Gil and Neme2012 y referencias allí citadas). Sin embargo, en el norte de Mendoza hay pocos estudios que exploren, a partir de distintos tipos de evidencia arqueológica, las fluctuaciones ambientales dentro de este período climático general (López et al. Reference López, Chiavazza and Rosi2016; Mafferra Reference Mafferra2017; Mafferra et al. Reference Mafferra, Chiavazza and Juñent2018).
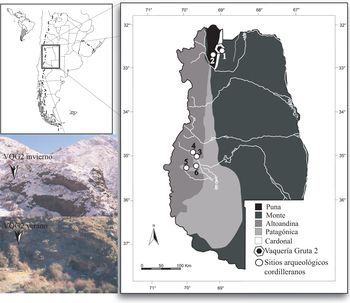
En el presente trabajo se presentan y discuten los resultados del análisis de restos óseos de micromamíferos recuperados en Vaquería Gruta 2 (VQG2), un sitio arqueológico localizado en el piedemonte alto de la precordillera en el noroeste de Mendoza (Figura 1). Con el objetivo de aproximarse a los posibles agentes acumuladores de los restos óseos, se realiza un análisis tafonómico. También, se estudia la composición taxonómica del ensamble. Con la intención de contribuir al conocimiento de las condiciones paleoambientales en la región, la estructura taxonómica del conjunto arqueológico se compara con las reportadas para los ensambles de micromamíferos actuales que habitan el área de estudio. Para evaluar los resultados desde una perspectiva regional, las tendencias detectadas en VQG2 se comparan con aquellas reportadas para acumulaciones óseas y dentarias de micromamíferos recuperadas en sitios arqueológicos de altura en el COA.
Mapa del área de estudio, localización y fotografías del sitio arqueológico de Vaquería Gruta 2 en un marco fitogeográfico y sitios arqueológicos cordilleranos del Centro-Occidente Argentino mencionados en el texto: (1) Vaquería Gruta 1; (2) Rincón de los Helados (López et al. Reference López, Chiavazza and Rosi2016); (3) Arroyo Malo 3; (4) Laguna El Sosneado 3; (5) Cueva Arroyo Colorado; (6) Cueva Palulo (Fernández Reference Fernández2012). (Color en la versión electrónica)

Área de estudio y contexto arqueológico
El COA se caracteriza por una significativa diversidad ambiental, arqueológica y etnográfica. Constituye un área periférica y transicional entre las áreas culturales del Noroeste Argentino al norte y Patagonia al sur. El sitio de VQG2 se encuentra en la Reserva Natural Villavicencio (620 km2) en la parte meridional de la precordillera andina (Dalmasso et al. Reference Dalmasso, Carretero, Videla, Puig and Candia1999), en el sector norte del COA (Figura 1). El clima del área es frío y seco, con temperaturas altamente variables, precipitaciones escasas (entre 100 y 300 mm anuales), estivales y marcadas diferencias climáticas estacionales. Los suelos superficiales, inmaduros y de alta infiltración, sumados a una elevada evapotranspiración, contribuyen a la existencia de un ambiente de desierto andino. Una gran heliofanía y los vientos secos y cálidos tipo föhn se suman a esta configuración ambiental semiárida (Capitanelli Reference Capitanelli1971; Dalmasso et al. Reference Dalmasso, Carretero, Videla, Puig and Candia1999).
En esta reserva se distinguen tres provincias fitogeográficas (Ambrosetti et al. Reference Ambrosetti, Vitto and Roig1986; Dalmasso et al. Reference Dalmasso, Carretero, Videla, Puig and Candia1999): la Puna, el Cardonal y el Monte. Esta última, en la que se encuentra VQG2, se distribuye desde el piedemonte de la precordillera y comprende altitudes entre 750 y 1.700 m snm aproximadamente. Los principales depredadores que habitan el área corresponden a la fauna de montañas que frecuenta formaciones rocosas (sensu Roig Reference Roig and Roig1972; Videla et al. Reference Videla, Rosi, Puig and Cona1997) y son mamíferos carnívoros grandes (puma [Puma concolor]) medianos (zorro colorado [Lycalopex culpaeus], zorro gris [Licalopex griseus]) y pequeños (gato montés [Leopardus geoffroyi], gato del pajonal [Leopardus colocolo]), así como aves rapaces diurnas, tales como el águila mora (Geranoaetus melanoleucus) y el aguilucho común (Geranoaetus polyosoma), y nocturnas, como el ñacurutú (Bubo virginianus nacurutu) y la lechuza del campanario (Tyto alba).
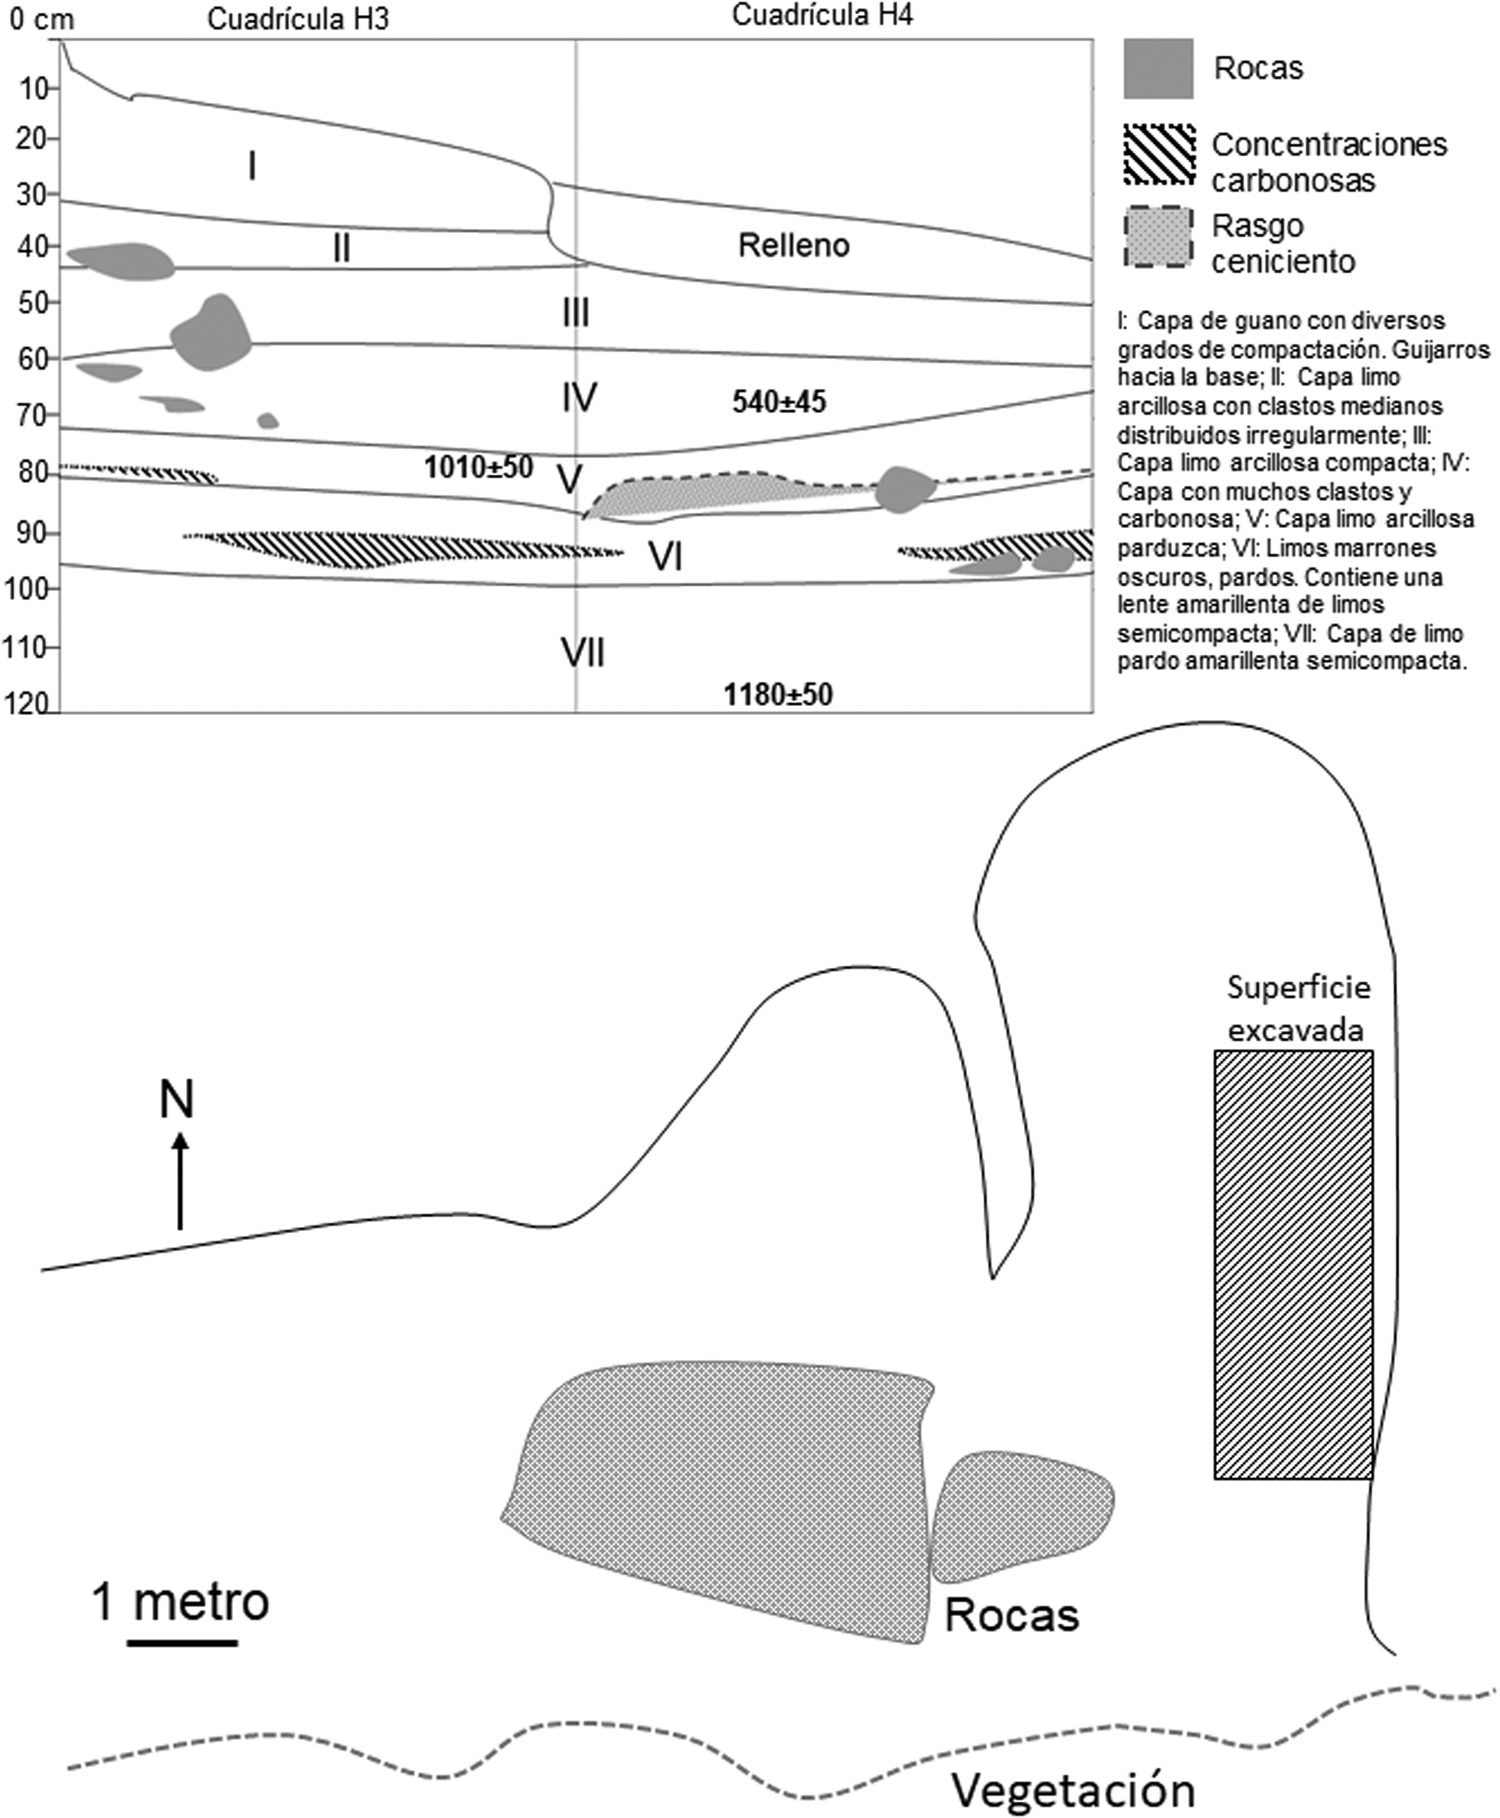
VQG2 es un alero rocoso localizado en la Quebrada de Villavicencio, a 1.650 m snm. Su entrada está orientada hacia el sur (Chiavazza Reference Chiavazza2010). El sitio se localiza en la provincia fitogeográfica del Monte, en una zona de transición con el Cardonal. La vegetación circundante está dominada por un matorral denso, dominado por especies de los géneros Larrea, Acantholippia y Junellia, acompañadas por pastos del género Stipa (Ambrosetti et al. Reference Ambrosetti, Vitto and Roig1986; Dalmasso et al. Reference Dalmasso, Carretero, Videla, Puig and Candia1999). El sitio ha sido interpretado como un espacio intermedio estratégico que habría permitido conectar tierras altas (precordillera) con tierras bajas (piedemonte bajo y planicie), lo que reviste importancia en términos de las estrategias humanas de subsistencia durante el Holoceno tardío en el norte de Mendoza (Chiavazza Reference Chiavazza2010). Se han obtenido tres dataciones radiocarbónicas sobre carbón vegetal para VQG2: 540 ± 45 aP, 1010 ± 50 aP y 1180 ± 50 aP (URU 0076, URU 0061 y URU 0080, respectivamente; Chiavazza et al. Reference Chiavazza, Cortegoso and Puebla2003:95; Figura 2). En trabajos previos se identificaron siete componentes arqueológicos sobre la base de asociaciones de materiales arqueológicos (óseos y líticos principalmente) con rasgos carbonosos. Sin embargo, con la intención de obtener resultados y tendencias tafonómicos y taxonómicos más confiables, en este trabajo el registro de micromamíferos del sitio fue analizado en conjunto, considerando que incluye cronologías radiocarbónicas entre aproximadamente 500 y 1200 aP.
Arriba: Perfil estratigráfico de dos cuadrículas excavadas en el sitio arqueológico de Vaquería Gruta 2. Abajo: Esbozo de planta de Vaquería Gruta 2.

La gruta se ha considerado como un espacio de actividades específicas relacionadas con la producción de armas de caza y el consumo de presas grandes. El material lítico recuperado evidencia actividades de talla relacionadas con estadios avanzados de reducción (puntas de proyectil, raspadores, raederas), mientras que el registro zooarqueológico de fauna mediana y grande está dominado por huesos de camélidos que indican faenas de desposte y procesamiento (Chiavazza et al. Reference Chiavazza, Cortegoso and Puebla2003). A esto se suma el hallazgo de fogones que denotan un uso intensivo del espacio (Chiavazza Reference Chiavazza2010; Chiavazza et al. Reference Chiavazza, Cortegoso and Puebla2003).
El área en la que se encuentra el sitio ha estado sometida a considerables impactos antrópicos desde la llegada de los conquistadores europeos a mediados del siglo dieciséis. Así, el Camino Real a Chile la atravesó durante más de 300 años, mientras que la minería desarrollada en áreas de Puna y Cardonal, sumada al desmonte, al pastoreo de caprinos y bovinos y a fuegos intencionales en áreas más bajas del Cardonal y el Monte, ha afectado profundamente el paisaje (Chiavazza y Prieto Olavarría Reference Chiavazza and Olavarría2012; Mafferra et al. Reference Mafferra, Chiavazza and Juñent2018; Sironi et al. Reference Sironi, Araujo, López and Quiroga2013).
Materiales y métodos
En VQG2 se excavaron 8 cuadrículas de 1 m2 cada una entre los años 1994 y 2010. Se establecieron niveles artificiales de 3 cm, detectando una potencia estratigráfica de 1,20 m aproximadamente. Los suelos variaron entre limosos, arcillosos y arenosos. El proceso sedimentario del alero cubrió y preservó rápidamente los materiales depositados (Figura 2; Chiavazza et al. Reference Chiavazza, Cortegoso and Puebla2003, Reference Chiavazza, Acosta, Quiroga, Castillo, Tobar, Frías, Castañar, Puebla, Anzorena, Puebla, Giannotti, Guajardo, Romera, Hernández, Bárcena and Chiavazza2010).
Los restos óseos de micromamíferos analizados provienen de las ocho cuadrículas excavadas y se examinaron bajo lupa binocular estereoscópica. Las identificaciones taxonómicas se realizaron a partir de elementos craneales y dentarios, por medio de comparaciones con especímenes actuales depositados en la colección mastozoológica del Instituto Argentino de Investigaciones de las Zonas Áridas (IADIZA, CCT Mendoza) y mediante literatura específica (Fernández, Ballejo et al. Reference Fernández, Ballejo, Moreira, Tonni and De Santis2011; Patton et al. Reference Patton, Pardiñas and D'Elía2015). La nomenclatura taxonómica utilizada siguió los criterios establecidos por Patton y colaboradores (Reference Patton, Pardiñas and D'Elía2015). Para conocer los ensambles de micromamíferos actuales existentes en el área de estudio se recurrió a estudios previos donde se reportó este tipo de información (Gonnet y Ojeda Reference Gonnet and Ojeda1998; López et al. Reference López, Chiavazza and Rosi2016; Novillo et al. Reference Novillo, Cuevas, Ojeda, Ovejero, Mosca-Torres and Ojeda2017).
La frecuencia relativa para cada especie fue calculada usando el número mínimo de individuos (MNI, por sus siglas en inglés), basado en el elemento craneal homólogo mejor representado. También se calcularon el número de especímenes identificados por taxón (NISP, por sus siglas en inglés) y el número mínimo de elementos (MNE, por sus siglas en inglés; Lyman Reference Lyman2008). El índice de diversidad de Shannon-Wiener (H’) fue calculado sobre la base del MNI. Además, fue estimado un índice de equitatividad J’ = H’ / Hmax, donde Hmax es igual al logaritmo natural de la riqueza específica (S). Los valores de J’ varían de 0 a 1. Mientras más se acercan a la unidad, más heterogénea o equitativamente están representadas las especies, respectivamente (Krebs Reference Krebs1989). También se calcularon el índice de predictabilidad y el índice de tamaño (Pardiñas Reference Pardiñas1999). La aplicación del primer índice se relaciona con que la mayoría de los roedores caviomorfos son coloniales, gregarios o viven agrupados, incrementando así su densidad. Por el contrario, la mayoría de las especies de cricétidos son solitarias y crípticas. De esta manera, el índice de predictabilidad refleja la relación entre proporciones de las especies agrupadas y no agrupadas, calculándose de la siguiente forma: (MNIcoloniales + MNIgregarios + MNIagrupados) / (MNIcrípticos + MNIsolitarios). Valores menores a 1 corresponden a concentraciones producidas por aves rapaces nocturnas (mostrando mayores abundancias de especies crípticas o solitarias), mientras que valores mayores a la unidad se refieren a otro tipo de agregados —naturales o antrópicos— (Pardiñas Reference Pardiñas1999:286). El índice de tamaño contribuye a distinguir entre las acumulaciones óseas de micromamíferos formadas por la acción de aves rapaces nocturnas (e.g., T. alba o B. virginianus) y aquellas generadas tanto por la acción de rapaces diurnas (e.g., G. melanoleucus o G. polyosoma) como de mamíferos carnívoros y seres humanos (Pardiñas Reference Pardiñas1999). Este índice se calculó de la siguiente manera: (MNIpequeños (≤50 g) + MNImedianos (50–150 g)) / MNIgrandes (≥150 g) (adaptado de Pardiñas [1999]). Las acumulaciones óseas producto de egagrópilas de aves rapaces nocturnas generalmente resultan en valores mayores que 1, mientras que aquellas generadas por rapaces diurnas, mamíferos carnívoros o seres humanos obtienen valores menores que la unidad, evidenciando mayor proporción de micromamíferos de tamaño grande.
El análisis tafonómico fue realizado siguiendo la metodología propuesta por Andrews (Reference Andrews1990) y Fernández, Montalvo, Fernández-Jalvo, Andrews y López (Reference Fernández, Montalvo, Fernández-Jalvo, Andrews and López2017). Las abundancias relativas de elementos esqueletarios fueron evaluadas considerando la representación de cada elemento en la muestra completa (MNEi), sobre la base del número esperado de cada elemento en un individuo (Ei) y el MNI, usando la siguiente fórmula: MNEi = Ei × MNI. Para evaluar las relaciones entre elementos craneales y poscraneales se calcularon dos índices: poscráneo/cráneo (pc/c) = [(fémur + tibia + húmero + radio + ulna) × 8 / (mandíbula + maxilar + molar) × 5]; f + h / md + mx = (fémur + húmero / mandíbula + maxilar). Para evaluar la relación entre la representación de elementos distales y proximales se calculó el índice t + u / f + h = (tibia + ulna / fémur + húmero). Por otro lado, se calcularon dos índices para evaluar la pérdida dentaria: alv/m = (alvéolos mandibulares + alvéolos maxilares / molares) × 100 y alv/i = (alvéolos mandibulares + alvéolos premaxilares / incisivos). Los didélfidos no fueron considerados en estos dos últimos cálculos, debido a su fórmula dentaria, muy diferente a la de los roedores.
Los patrones de fractura y el grado de fragmentación sobre elementos craneales (cráneo, mandíbula, dientes) y poscraneales (fémur, húmero, tibia, ulna) fueron analizados considerando el grado de completitud de cada elemento, de los cuales el porcentaje de fractura también fue calculado (sensu Andrews Reference Andrews1990; Fernández-Jalvo et al. Reference Fernández-Jalvo, Andrews, Denys, Sesé, Stoetzel, Monfort and Pesquero2016).
Las modificaciones por digestión fueron evaluadas sobre elementos diagnósticos (incisivos, molares, fémures y húmeros), distinguiendo cuatro grados de corrosión digestiva (ligera, moderada, fuerte, extrema). La digestión es una variable tafonómica muy confiable para aproximarse a los posibles agentes acumuladores de restos óseos de micromamíferos en sitios arqueológicos, ya que sus efectos sobre los huesos no poseen un “duplicado” y se los puede distinguir de otros procesos tafonómicos (Andrews Reference Andrews1990; Fernández, Montalvo et al. Reference Fernández, Montalvo, Fernández-Jalvo, Andrews and López2017; Fernández-Jalvo y Andrews Reference Fernández-Jalvo and Andrews2016).
Además, se evaluaron señales específicas de actividad antrópica sobre los restos óseos, tales como huellas de corte, termoalteraciones y abundancia de especies de tamaño grande y gregarias (Medina et al. Reference Medina, Teta and Rivero2012; Pardiñas Reference Pardiñas1999; Quintana Reference Quintana2005). También, con la intención de distinguir procesos antemortem de aquellos postmortem, se analizaron modificaciones por procesos posdepositacionales, tales como meteorización, pisoteo, acción de raíces y manchas de óxido de manganeso (Andrews Reference Andrews1990).
Para evaluar aspectos referidos tanto a las variables tafonómicas analizadas para aproximarse a los posibles agentes acumuladores, como también aspectos relacionados con la composición taxonómica y cuestiones paleoambientales, se incorporó de forma complementaria un análisis de componentes principales (ACP), para explorar la distribución de las muestras en un espacio multivariado. En el ACP referido a los agentes acumuladores se consideraron las siguientes variables: promedio de abundancia relativa de elementos; índice pc/c; índice f + h / md + mx; índice t + u / f + h; porcentaje de molares digeridos; porcentaje de incisivos digeridos; porcentaje de elementos poscraneales digeridos; porcentaje de fractura en elementos craneales; y porcentaje de fractura sobre elementos poscraneales. Para el ACP referido a la composición taxonómica se consideraron el índice de diversidad H’, el índice de equitatividad y el de riqueza. Estos análisis fueron realizados en el software libre PAST versión 3.12 (Hammer et al. Reference Hammer, Harper and Ryan2001).
Resultados: Micromamíferos recuperados en el sitio arqueológico VQG2
Análisis tafonómico
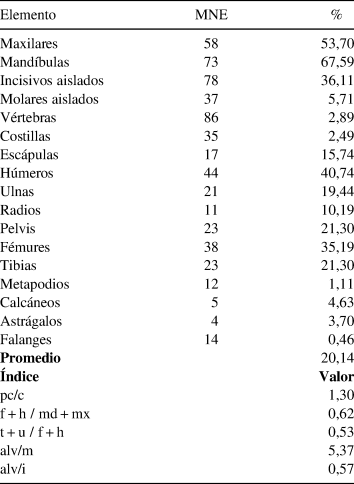
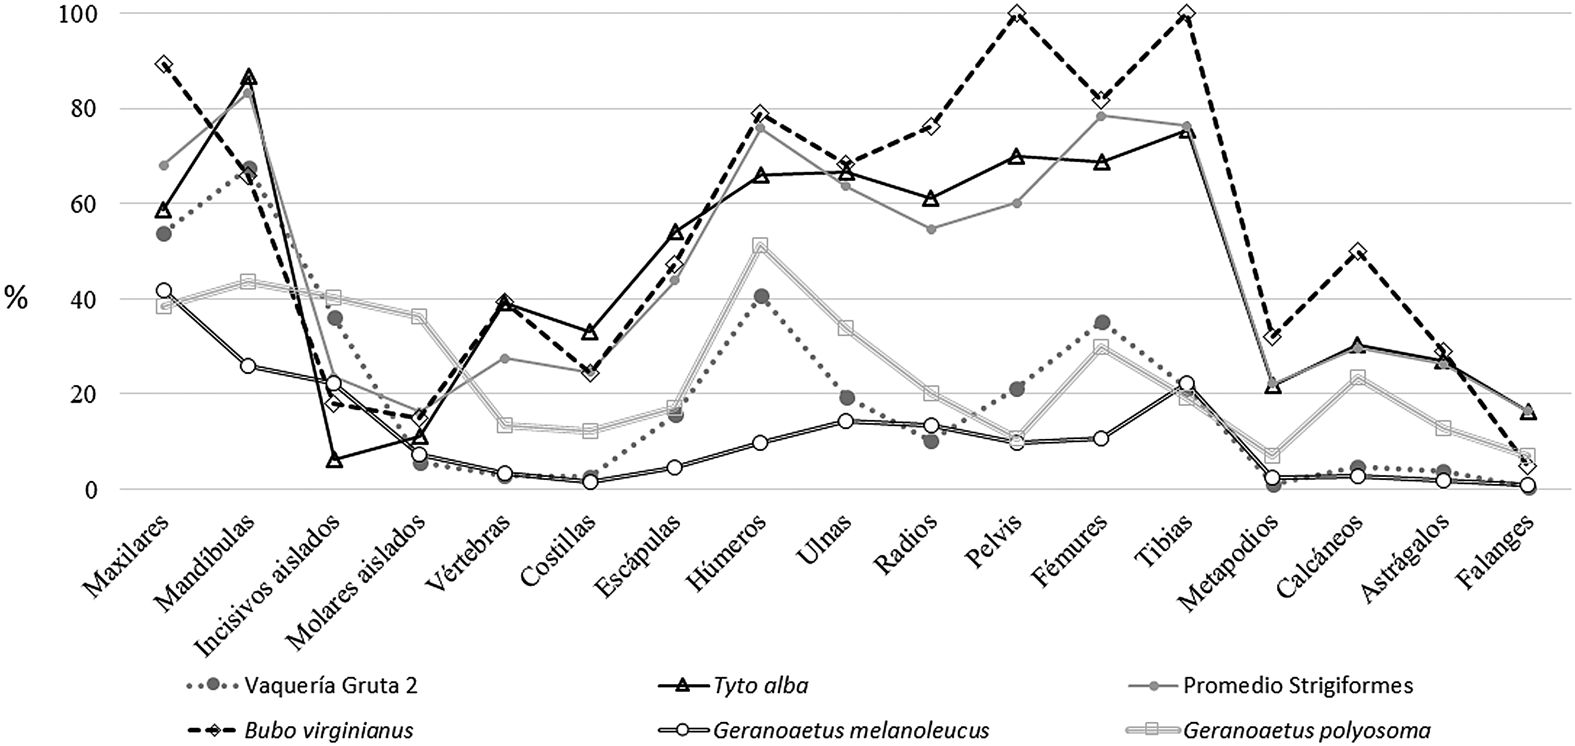
En el total de la acumulación ósea recuperada en VQG2 para toda la secuencia, con cronologías radiocarbónicas entre aproximadamente 1200 y 500 aP, se recuperaron 655 restos óseos de micromamíferos, de los cuales 292 correspondieron a restos craneales, mientras que el resto fueron poscraneales. El MNE para el total de la muestra fue de 579. Con relación a éste, los elementos craneales sumaron 246, excluyendo premaxilares y porciones menores de cráneos y hemimandíbulas para evitar sobrerrepresentación y favorecer la comparación con otras muestras evaluadas con la misma metodología, mientras que el resto fueron poscraneales. Todos los elementos del esqueleto fueron detectados. Mandíbulas (68%), maxilares (54%), húmeros (41%), incisivos aislados (36%) y fémures fueron los elementos más representados (Tabla 1; Figura 3). Por el contrario, los elementos menos representados fueron metapodios, astrágalos, falanges, calcáneos, costillas y vértebras, con valores inferiores a 5%. El promedio de abundancia relativa fue de alrededor del 20%.
Abundancia relativa (MNE y %), promedio e índices de abundancia relativa calculados para el conjunto óseo analizado del sitio arqueológico de Vaquería Gruta 2.

Notas: pc = poscráneo; c = cráneo; f = fémur; h = húmero; md = mandíbula; mx = maxilar; t = tibia; u = ulna; alv = alvéolos; m = molares; i = incisivos.
Abundancia relativa de elementos en la acumulación ósea de micromamíferos recuperada en el sitio arqueológico de Vaquería Gruta 2 y comparación con abundancias relativas reportadas para otros depredadores. Promedio Tyto alba y Strigiformes (Andrews Reference Andrews1990); Bubo virginianus (Gómez Reference Gómez2005); Geranoaetus melanoleucus y Geranoaetus polyosoma (López, Fernández et al. Reference López, Fernández, Montalvo, Chiavazza and De Santis2017).

En cuanto a la relación entre elementos craneales y poscraneales, el valor de pc/c (1,30) mostró una ligera mejor representación de los segundos, mientras que el resultado obtenido para f + h / md + mx (0,62) reflejó una mejor representación de elementos craneales comparados con los poscraneales. El índice t + u / f + h (0,53) evidenció mejor preservación de elementos proximales del esqueleto comparados con los distales. Con relación a los índices calculados para evaluar la pérdida dentaria, el valor obtenido de alv/m (5,37) reflejó una considerable pérdida de molares, mientras que el resultado de alv/i (0,57) indicó pérdida de mandíbulas y premaxilares en la muestra (Tabla 1).
Respecto a los patrones de fractura, una alta cantidad de elementos craneales y poscraneales se detectaron fracturados (96,5 y 65,8%, respectivamente). Alrededor del 98% de estos últimos mostraron sus bordes ásperos y angulosos, producto del pisoteo. Sólo un cráneo se preservó de forma completa (1%), mientras que poco más del 93% de las mandíbulas estaba fracturado. La categoría de fractura más representada para cráneos correspondió a maxilares con proceso zigomático (51%), mientras que, para mandíbulas, la más abundante fue sin rama ascendente (60%).
Los huesos largos también evidenciaron un alto nivel de fracturación. Así, la ulna fue el elemento que se detectó con mayor porcentaje de completitud (62%), mientras que fémures, húmeros y tibias reflejaron un bajo nivel de completitud (22,22%, 33,93% y 21,21%, respectivamente). Las porciones proximales fueron más abundantes en fémures, tibias y ulnas, mientras que los segmentos distales estuvieron más representados en húmeros. El 16,70% (n = 33) de los molares y el 10% (n = 5) de los incisivos in situ, además del 37,83% (n = 14) de los molares y el 20,51% (n = 16) de los incisivos aislados, se detectaron fracturados.
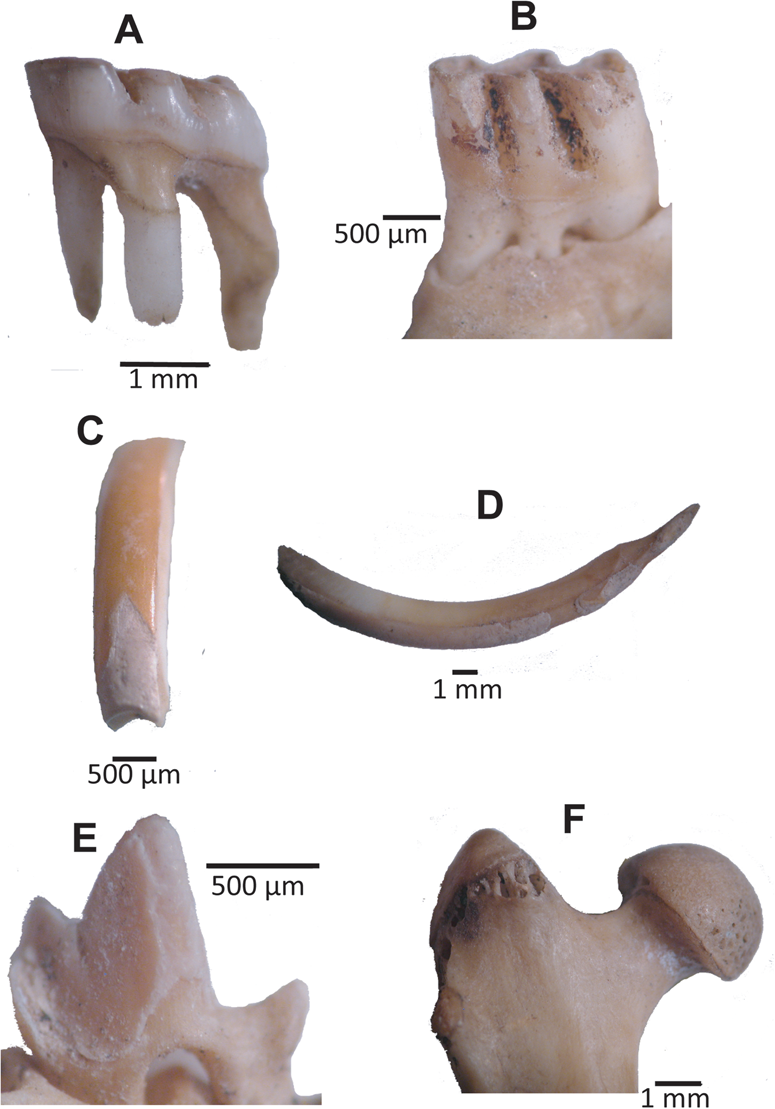
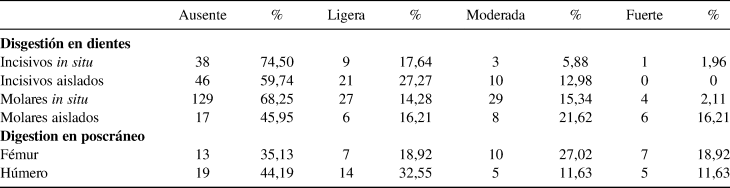
En relación con las evidencias de digestión (Tabla 2; Figura 4), alrededor del 35% de incisivos y molares mostraron trazas de digestión sobre su superficie, mientras que esta modificación fue detectada en el 60% de los huesos poscraneales diagnósticos (Tabla 2). Predominaron las categorías ligera y moderada, aunque algunos elementos fueron asignados a la categoría fuerte. Generalmente los restos óseos con evidencias de digestión ligera estaban completos, mientras que los restos óseos fracturados con evidencias de digestión presentaron categorías de modificación más intensas (e.g., moderadas o fuertes).
Ejemplos de digestión sobre restos óseos de micromamíferos recuperados en el sitio arqueológico de Vaquería Gruta 2: (a) digestión moderada sobre molar de cricétido, en vista lateral; (b) digestión fuerte sobre molar de cricétido, en vista lateral; (c) digestión ligera sobre incisivo de cricétido, en vista frontal; (d) digestión moderada sobre incisivo de cricétido, en vista lateral; (e) digestión moderada sobre molar de didélfido, en vista lateral; (f) digestión ligera sobre fémur de cricétido. (Color en la versión electrónica)

Número y porcentajes de elementos craneales y poscraneales diagnósticos afectados por corrosión digestiva en el sitio arqueológico de Vaquería Gruta 2.

Dos huesos mostraron evidencias de termoalteración (hemimandíbulas de sigmodontino de tamaño chico-mediano quemadas completamente), mientras que ningún elemento presentó huellas de corte sobre su superficie. El 5,5% de los restos óseos (n = 36) estaba afectado por un grado leve de meteorización y el 6,4% de los huesos (n = 42) presentó manchas de óxido de manganeso. La acción de raíces fue registrada en el 7% de la muestra (n = 46), mientras que no se observaron alteraciones por abrasión o por corrosión sedimentaria.
Composición taxonómica
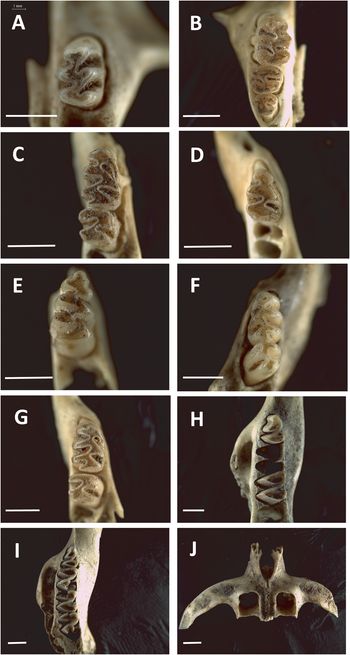
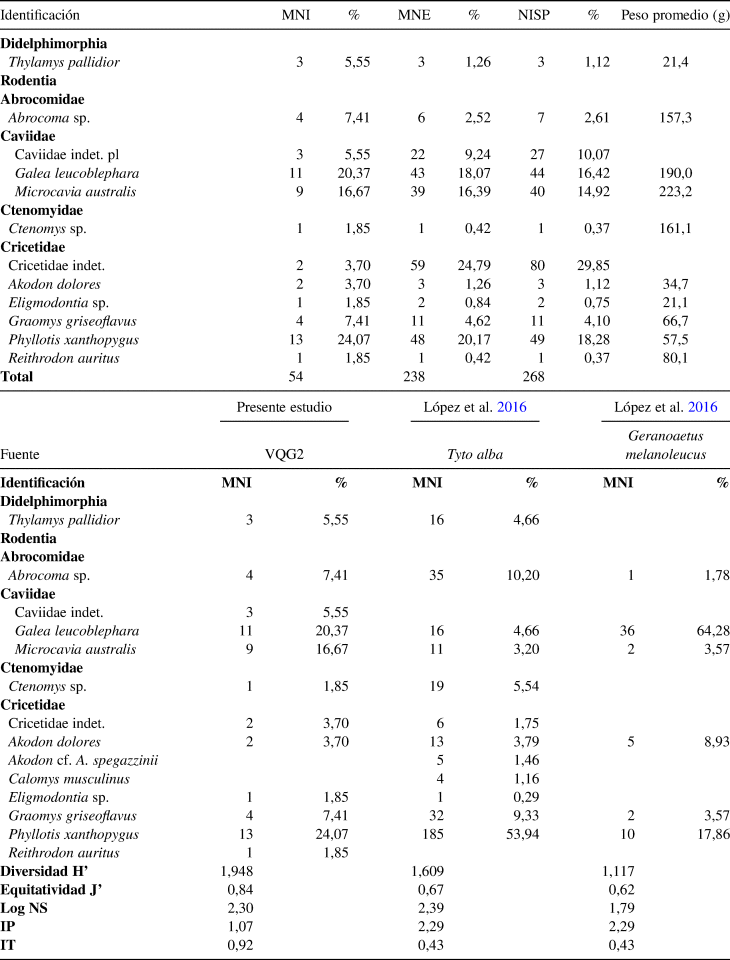
Se detectaron, al menos, siete especies y tres géneros (Figura 5; Tabla 3). Sobre un MNI total de 54, la especie más representada fue Phyllotis xanthopygus (24%), seguida por Galea leucoblephara (20%) y Microcavia australis (17%). Con frecuencias menores se detectaron Abrocoma sp. (7%), Graomys griseoflavus (7%) y Thylamys pallidior (5,5%), mientras que los demás taxa (Ctenomys sp., Akodon dolores, Eligmodontia sp. y Reithrodon auritus) se encontraron representados con valores inferiores a 4% (Tabla 3). Respecto a los cálculos de diversidad y equitatividad, tanto H’ como J’ reflejaron valores elevados, mientras que el índice de predictabilidad resultó ligeramente superior a la unidad y el de tamaño fue levemente inferior que ella.
Fotografías de algunas especies de micromamíferos detectadas en el sitio arqueológico de Vaquería Gruta 2, en vista oclusal (escala de 1 mm): (a) Phyllotis xanthopygus, M1 izquierdo en maxilar; (b) P. xanthopygus, maxilar derecho con M1, M2 y M3; (c) P. xanthopygus, hemimandíbula derecha con m1 y m2; (d) P. xanthopygus, hemimandíbula derecha con m1; (e) Reithrodon auritus, m1 derecho en hemimandíbula; (f) Graomys griseoflavus, hemimandíbula izquierda con m1 y m2; (g) G. griseoflavus, hemimandíbula derecha con m1 y m2; (h) Galea leucoblephara, hemimandíbula derecha con pm4 y m2; (i) Microcavia australis, hemimandíbula derecha con p4, m1, m2 y m3 fracturados; (j) Abrocoma sp., porción anterior de maxilar con alveolos de pm4 izquierdo y derecho. (Color en la versión electrónica)

Composición taxonómica y diversidad del ensamble de micromamíferos en el sitio arqueológico de Vaquería Gruta 2 y comparación con ensambles de micromamíferos actuales reportados en el área de estudio.

Notas: MNI = número mínimo de individuos; MNE = número mínimo de elementos; NISP = número de especímenes identificados por taxón; indet. = indeterminado; H’= índice de diversidad de Shannon-Wiener; J’= índice de equitatividad; Log S = logaritmonaturalde la riqueza; IP = índice de predictibilidad; IT = índice de tamaño.
Discusión
Agentes acumuladores
Los resultados de las variables tafonómicas analizadas sugieren que el registro óseo de micromamíferos de VQG2 fue generado por aves rapaces. Éste habría sido acumulado por una rapaz de las categorías 2–3 de modificación tafonómica o por más de un tipo de depredador. La proporción (35% de incisivos y molares; 60% de huesos poscraneales) y grados (ligeros y moderados, principalmente) de elementos diagnósticos afectados por digestión descarta a T. alba como principal agente acumulador de este conjunto óseo. Esta rapaz genera proporciones más bajas de elementos digeridos y con grado ligero de digestión principalmente (Andrews Reference Andrews1990). Tyto alba se alimenta de micromamíferos de tamaño chico y mediano, principalmente —≤150 g— (Bellocq Reference Bellocq2000; Tabla 3), mientras que en el conjunto analizado se detectó un porcentaje elevado de micromamíferos de tamaño grande —Caviidae, Abrocomidae y Ctenomyidae— (ligeramente mayor al 50%).
Estudios tafonómicos actualísticos realizados sobre acumulaciones óseas de micromamíferos generadas por la rapaz diurna G. melanoleucus en el COA señalan que este depredador produce modificaciones por digestión entre ligeras y moderadas, con porcentajes de elementos afectados cercanos al 70% y elevado nivel de fracturación. Por su parte, G. polyosoma genera acumulaciones óseas con frecuencias e intensidades mayores de elementos afectados por digestión, así como mayor cantidad de fracturaciones (López, Fernández et al. Reference López, Fernández, Montalvo, Chiavazza and De Santis2017). Ambas rapaces, las cuales también habitan el área de estudio, depredan principalmente micromamíferos de tamaño grande (López, Fernández et al. Reference López, Fernández, Montalvo, Chiavazza and De Santis2017; Tabla 3). El bajo promedio de abundancia relativa, la desproporción en torno a la representación entre partes esqueletarias señalada por algunos índices de abundancia relativa calculados (f + h / md + mx y t + u / f + h), la considerable pérdida de elementos y la elevada proporción de elementos fracturados son indicadores de la participación, al menos parcial, de este tipo de agentes en la acumulación de dicho conjunto óseo. Los índices utilizados para evaluar la pérdida dentaria también muestran una considerable pérdida de elementos en la muestra. Esto podría estar influenciado parcialmente por el manejo y manipuleo de las presas por parte de este tipo de rapaces que desmembran las carcasas antes de la ingesta (Andrews Reference Andrews1990; López, Fernández et al. Reference López, Fernández, Montalvo, Chiavazza and De Santis2017), aunque no debería dejar de considerarse al pisoteo entre sus posibles causas. Debido al elevado número de roedores cávidos, cuyos molares se desprenden fácilmente de los alveolos, los resultados de los índices calculados para evaluar la pérdida dentaria deben ser tomados con cautela.
Rapaces nocturnas, como Bubo virginianus, generan proporciones menores de elementos con evidencias de digestión (aunque mayores que T. alba), presencia de digestión ligera sobre alrededor del 20% de los elementos diagnósticos y relativo equilibrio en la representación de elementos craneales y poscraneales (índice pc/c) en los ensambles óseos de micromamíferos que depredan (Andrews Reference Andrews1990; Gómez Reference Gómez2005; Montalvo et al. Reference Montalvo, Fernández and Tallade2016). Estas tendencias también podrían asociarse con la acumulación de micromamíferos recuperada en VQG2. Rapaces del género Bubo que habitan el área de estudio consumen proporciones ligeramente mayores de micromamíferos de tamaño mediano-grande que T. alba (Montalvo et al. Reference Montalvo, Fernández and Tallade2016; Nabte et al. Reference Nabte, Saba and Pardiñas2006). Sin embargo, las proporciones de micromamíferos de distintos tamaños no se asemejaron estrictamente con la dieta de ninguno de estos depredadores en particular (T. alba, B. virginianus, G. melanoleucus o G. polyosoma), aunque esto siempre sea variable y dependiente de la disponibilidad o “capturabilidad” (Andrews Reference Andrews1990; Meek et al. Reference Meek, Burman, Sparks, Nowakowski and Burman2012).
Si bien los resultados obtenidos tanto para el índice de tamaño como el de predictibilidad sugieren la participación de rapaces Falconiformes-Accipitriformes en la acumulación del conjunto óseo de micromamíferos recuperado en VQG2, ambos fueron valores muy cercanos a 1. Estos resultados poco contundentes también podrían estar influenciados por la participación de más de un tipo de depredador (en este caso de rapaces diurnas y nocturnas) en la acumulación de dicho conjunto. En cuanto a la posibilidad de un ingreso de los micromamíferos a VQG2 por muerte natural, este se ha descartado por diferentes razones, entre ellas la presencia de una considerable proporción de elementos digeridos por causas depredacionales antemortem, la ausencia de elementos articulados y la elevada pérdida de restos óseos.
Al comparar el conjunto de micromamíferos recuperado en VQG2 con otras acumulaciones óseas recuperadas en sitios arqueológicos regionales de altura, se observan ciertas diferencias, algunas de ellas referidas a las proporciones con las que los distintos tamaños de especies se encuentran representadas. Así, la proporción de micromamíferos de tamaño chico y mediano (Didelphidae y Cricetidae) en VQG2 es considerablemente más baja tanto en la acumulación arqueológica de micromamíferos recuperada en Vaquería Gruta 1 (VQG1), un alero inmediatamente adyacente donde el agente acumulador fue, probablemente, T. alba, como en muestras de egagrópilas actuales generadas por este mismo depredador en el área de estudio —en las mismas grutas de Vaquería— (López et al. Reference López, Chiavazza and Rosi2016). Fernández (Reference Fernández2012) y Fernández, Neme y De Santis (Reference Fernández, Neme and De Santis2015) señalaron la probable participación de Strigiformes y Falconiformes-Accipitriformes en la acumulación de micromamíferos recuperada en un sitio arqueológico cordillerano a reparo (Arroyo Malo 3) en la provincia fitogeográfica de Estepa patagónica en el sur del COA (Figura 1). En otros sitios cordilleranos a reparo localizados en la misma área (también considerado parte de Norpatagonia), se ha detectado la acción de rapaces diurnas, tales como G. polyosoma en Cueva Palulo (Fernández Reference Fernández2012; López, Fernández et al. Reference López, Fernández, Montalvo, Chiavazza and De Santis2017) y nocturnas, tales como T. alba o B. virginianus en Laguna El Sosneado 3 (Fernández Reference Fernández2012).
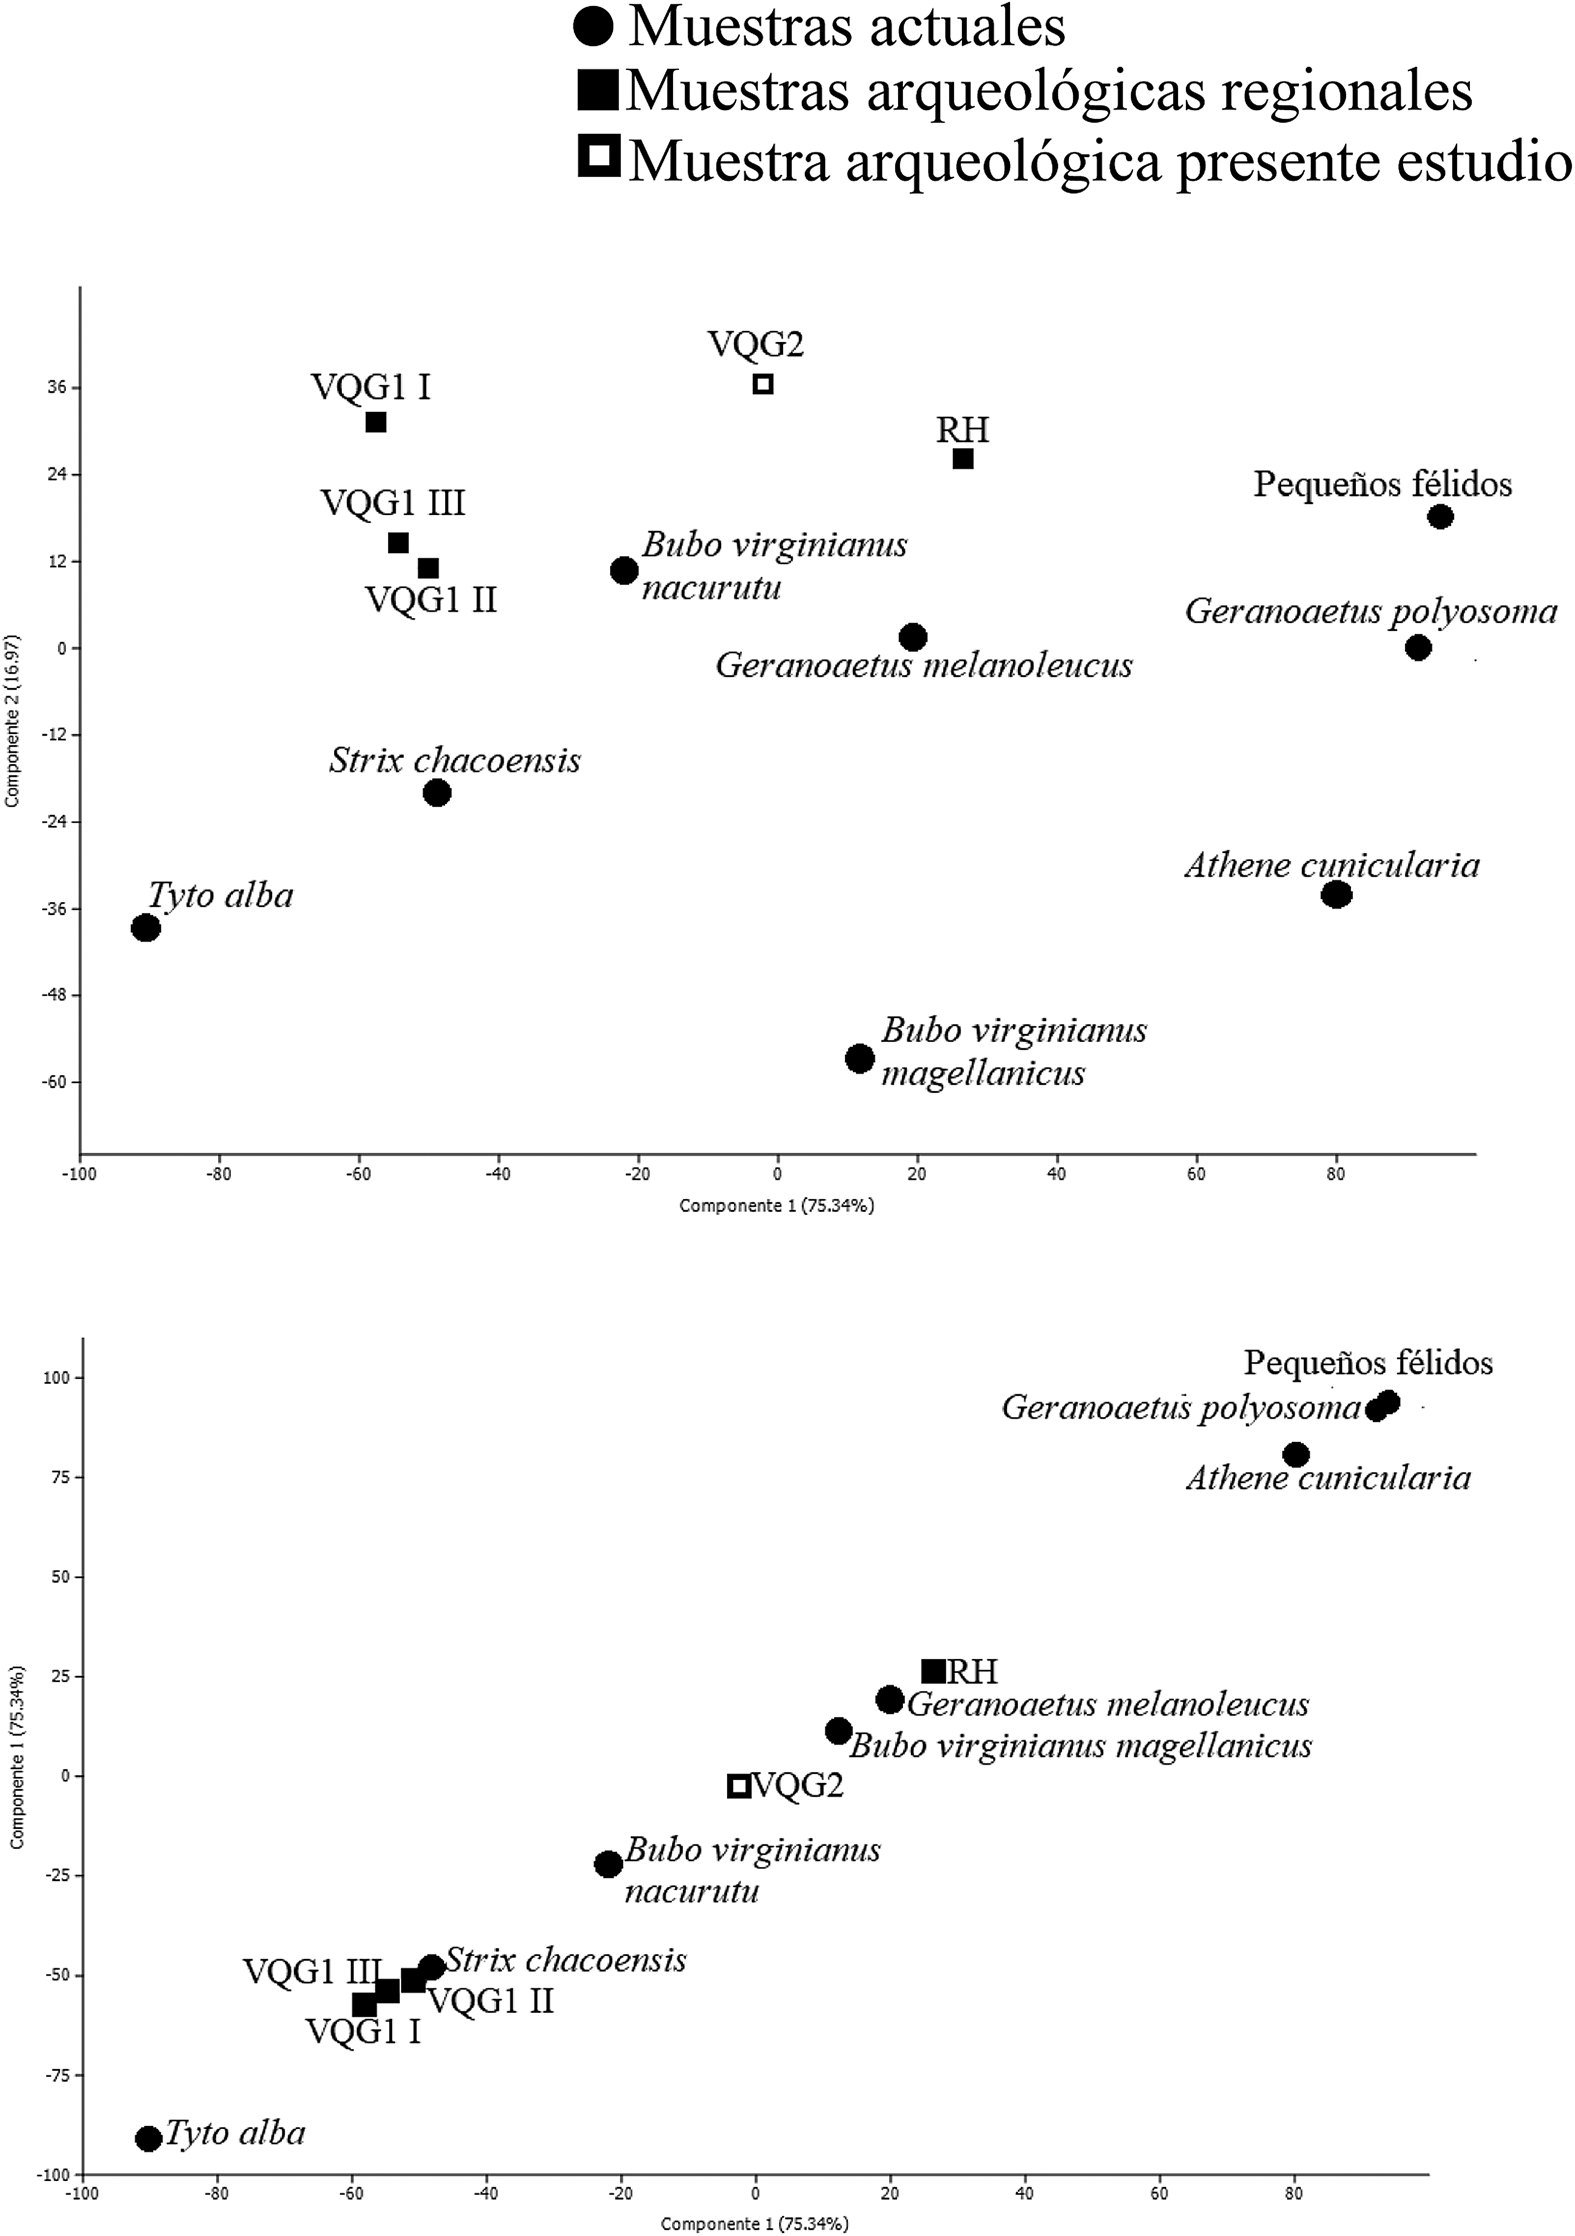
En el análisis de componentes principales (ACP) realizado para complementar la aproximación a los posibles agentes acumuladores integrando las variables tafonómicas analizadas, los componentes 1 y 2 explicaron el 92,31% de la variación (C1 = 75,34%; C2 = 16,97%; Figura 6). Este análisis aproximó la muestra arqueológica de VQG2 a muestras actualísticas correspondientes a rapaces Strigiformes, tales como B. virginianus nacurutu (Gómez Reference Gómez2005) y Accipitriformes, tales como G. melanoleucus (López, Fernández et al. Reference López, Fernández, Montalvo, Chiavazza and De Santis2017). Asimismo, el ACP agrupó la muestra de VQG2 con aquella correspondiente al sitio arqueológico puneño aledaño Rincón de los Helados (RH; Figura 1). Esto último también podría ser producto de la participación parcial en la acumulación de VQG2 de una rapaz diurna, depredador que fue inferido como principal agente acumulador del conjunto óseo de micromamíferos recuperado en RH (López et al. Reference López, Chiavazza and Rosi2016). Al mismo tiempo, el ACP distinguió las muestras de VQG1 y VQG2, lo que resulta interesante desde una perspectiva tafonómica, ya que estas grutas se encuentran a menos de 10 metros de distancia entre ellas en sentido este-oeste y sobre la misma formación rocosa. Los conjuntos óseos de micromamíferos recuperados en dichas grutas presentan tendencias tafonómicas que los distinguen entre sí (López y Chiavazza Reference López and Chiavazza2019; López et al. Reference López, Chiavazza and Rosi2016).
Análisis de componentes principales (ACP) con base en los valores obtenidos a partir de las diversas variables tafonómicas analizadas en el sitio arqueológico de Vaquería Gruta 2 (VQG2) y comparación con muestras arqueológicas y actuales. Arriba: ACP con base en Componentes 1 y 2; Abajo: ACP con base en Componente 1. VQG1 I = Vaquería Gruta 1 Componente I; VQG1 II = Vaquería Gruta 1 Componente II; VQG1 III = Vaquería Gruta 1 Componente III; RH = Rincón de los Helados (López y Chiavazza Reference López and Chiavazza2019). Muestras actuales: Tyto alba (Andrews Reference Andrews1990), Bubo virginianus nacurutu (Gómez Reference Gómez2005), Athene cunicularia (Montalvo y Tejerina Reference Montalvo, Tejerina, Berón, Luna, Bonomo, Montalvo, Aranda and Aizpitarte2009), Bubo virginianus magellanicus (Montalvo et al. Reference Montalvo, Fernández and Tallade2016), Geranoaetus melanoleucus y Geranoaetus polyosoma (López, Fernández et al. Reference López, Fernández, Montalvo, Chiavazza and De Santis2017) y Strix chacoensis (López et al. Reference López, Fernández, Castillo and Pereyra-Lobos2018).

En diversos estudios arqueológicos y tafonómicos se ha señalado la posibilidad de que más de un tipo de depredador haya participado en la acumulación de los conjuntos óseos de micromamíferos (Fernández, del Papa et al. Reference Fernández, del Papa, Moreira, Prates and De Santis2011; López, Rosi et al. Reference López, Rosi, Tabeni, Bender and Chiavazza2017). En este sentido, del ACP realizado también se interpreta la posibilidad de que la acumulación ósea de micromamíferos recuperada en VQG2 haya sido acumulada por más de un tipo de depredador (e.g., rapaces diurnas y nocturnas).
La historia tafonómica de VQG2 sugiere la participación de un depredador correspondiente a la categoría 2–3 de modificación o, al menos, la participación de más de un tipo de depredador. Esto resulta interesante para discutir la dinámica de acumulaciones óseas de micromamíferos generadas en sitios arqueológicos cordilleranos en el COA. Así, a pesar de su proximidad y sincronía, el comportamiento tafonómico registrado en VQG1 y VQG2 es diferente, considerando que en el primero se registró un depredador de la categoría 1 de modificación (López et al. Reference López, Chiavazza and Rosi2016), mientras que en VQG2 se registraron depredadores de las categorías 2–3 de modificación tafonómica. Además, en RH, un sitio arqueológico puneño a reparo cercano, se infirió la probable participación de una rapaz diurna (G. melanoleucus) en la generación del agregado ósea de micromamíferos (López et al. Reference López, Chiavazza and Rosi2016; López, Fernández et al. Reference López, Fernández, Montalvo, Chiavazza and De Santis2017). En VQG2 se descarta la participación de depredadores que generan modificaciones más fuertes sobre los restos óseos de micromamíferos que depredan, tales como mamíferos carnívoros. Estos producen niveles considerablemente más altos de fracturación, digestión en más del 95% de los elementos diagnósticos y de grados más intensos (i.e., fuertes y extremos) y elevada presencia de bordes fracturados digeridos, entre otras señales tafonómicas (Mondini Reference Mondini2018).
Las muy bajas proporciones de elementos meteorizados sugieren que estos se incorporaron rápidamente al contexto sedimentario del sitio. Salvo los efectos del pisoteo de animales, que podría haber provocado pérdida de elementos, además de fracturaciones, no se detectaron proporciones considerables de huesos alterados por otros procesos posdepositacionales. Esto es similar a lo reportado por Chiavazza y colaboradores (Reference Chiavazza, Cortegoso and Puebla2003) y Chiavazza (Reference Chiavazza2010) para otros materiales arqueológicos recuperados en VQG2.
Las nulas evidencias de huellas de corte y la baja cantidad de elementos termoalterados (n = 2) cuyo tipo, además, no permite asociarlos a la acción antrópica, señalan que los seres humanos no participaron de la acumulación ósea de micromamíferos recuperada en VQG2. La ausencia de señales tafonómicas que indiquen actividad antrópica sobre acumulaciones óseas de micromamíferos es habitual en sitios arqueológicos de altura del COA (Fernández Reference Fernández2012; Fernández, Neme y De Santis Reference Fernández, Neme and De Santis2015; López et al. Reference López, Chiavazza and Rosi2016). Sólo en un sitio arqueológico (Cueva Arroyo Colorado) ubicado en el sur de Mendoza en la Estepa patagónica, a reparo, se reportó la presencia de huellas de corte sobre una tibia de roedor cávido (Fernández Reference Fernández2012; Fernández et al. Reference Fernández, Moreira, Neme and De Santis2009).
Consideraciones paleoambientales
El ensamble de micromamíferos recuperado en VQG2 está compuesto principalmente por especies típicas del Desierto de Monte, aunque difiriendo entre ellas en sus patrones de uso del hábitat tanto en ambientes de piedemonte como de planicie (Albanese Reference Albanese2010; Corbalán Reference Corbalán2006; Gonnet y Ojeda Reference Gonnet and Ojeda1998; Novillo et al. Reference Novillo, Cuevas, Ojeda, Ovejero, Mosca-Torres and Ojeda2017; Taraborelli et al. Reference Taraborelli, Pablo Moreno, Dacar and Ojeda2011). Dicho ensamble sugiere un ambiente caracterizado por áreas arbustivas abiertas, con desarrollo de pastizales y formaciones rocosas. A. dolores se asocia preferentemente con estepas arbustivas de alta cobertura vegetal, pastizales densos y arbustos dispersos. Eligmodontia sp. habita predominantemente áreas abiertas con suelos arenosos desnudos y arbustos dispersos, mientras G. griseoflavus prefiere hábitats complejos y cerrados con árboles y densa cobertura. G. leucoblephara está asociada principalmente con pastizales y comunidades arbustivas, mientras que M. australis y T. pallidior con ambientes arbustivos abiertos y moderadamente forestados. La primera frecuenta valles y tierras bajas y la segunda, áreas abiertas de baja complejidad. Abrocoma sp. prefiere ambientes con laderas en el piedemonte compuestas por bloques de rocas y vegetación de arbustos dispersos con baja cobertura de pastos duros.
R. auritus está asociada con ambientes de Estepa patagónica y del Desierto de Monte, en hábitats con vegetación abierta, arbustos bajos, estratos herbáceos y pastos (Fernández Reference Fernández2012). La multiplicidad de ambientes en la que esta especie ha sido detectada ha provocado que los investigadores limiten las implicancias paleoambientales que podrían ser atribuidas a la presencia de dicha especie en contextos arqueológicos (Teta Reference Teta2018). Los restantes taxa que completaron el ensamble de micromamíferos de VQG2 fueron la ampliamente distribuida Ctenomys sp. y P. xanthopygus. La segunda es usualmente registrada en afloramientos rocosos de todas las unidades fitogeográficas presentes en Mendoza (Fernández Reference Fernández2012), inclusive del Monte, desde el piedemonte alto hasta áreas de mayor altura en el oeste. Esta especie, que fue la más abundante, prefiere estepas arbustivas con roquedales en ambientes desérticos y semidesérticos (Gonnet y Ojeda Reference Gonnet and Ojeda1998; López et al. Reference López, Chiavazza and Rosi2016).
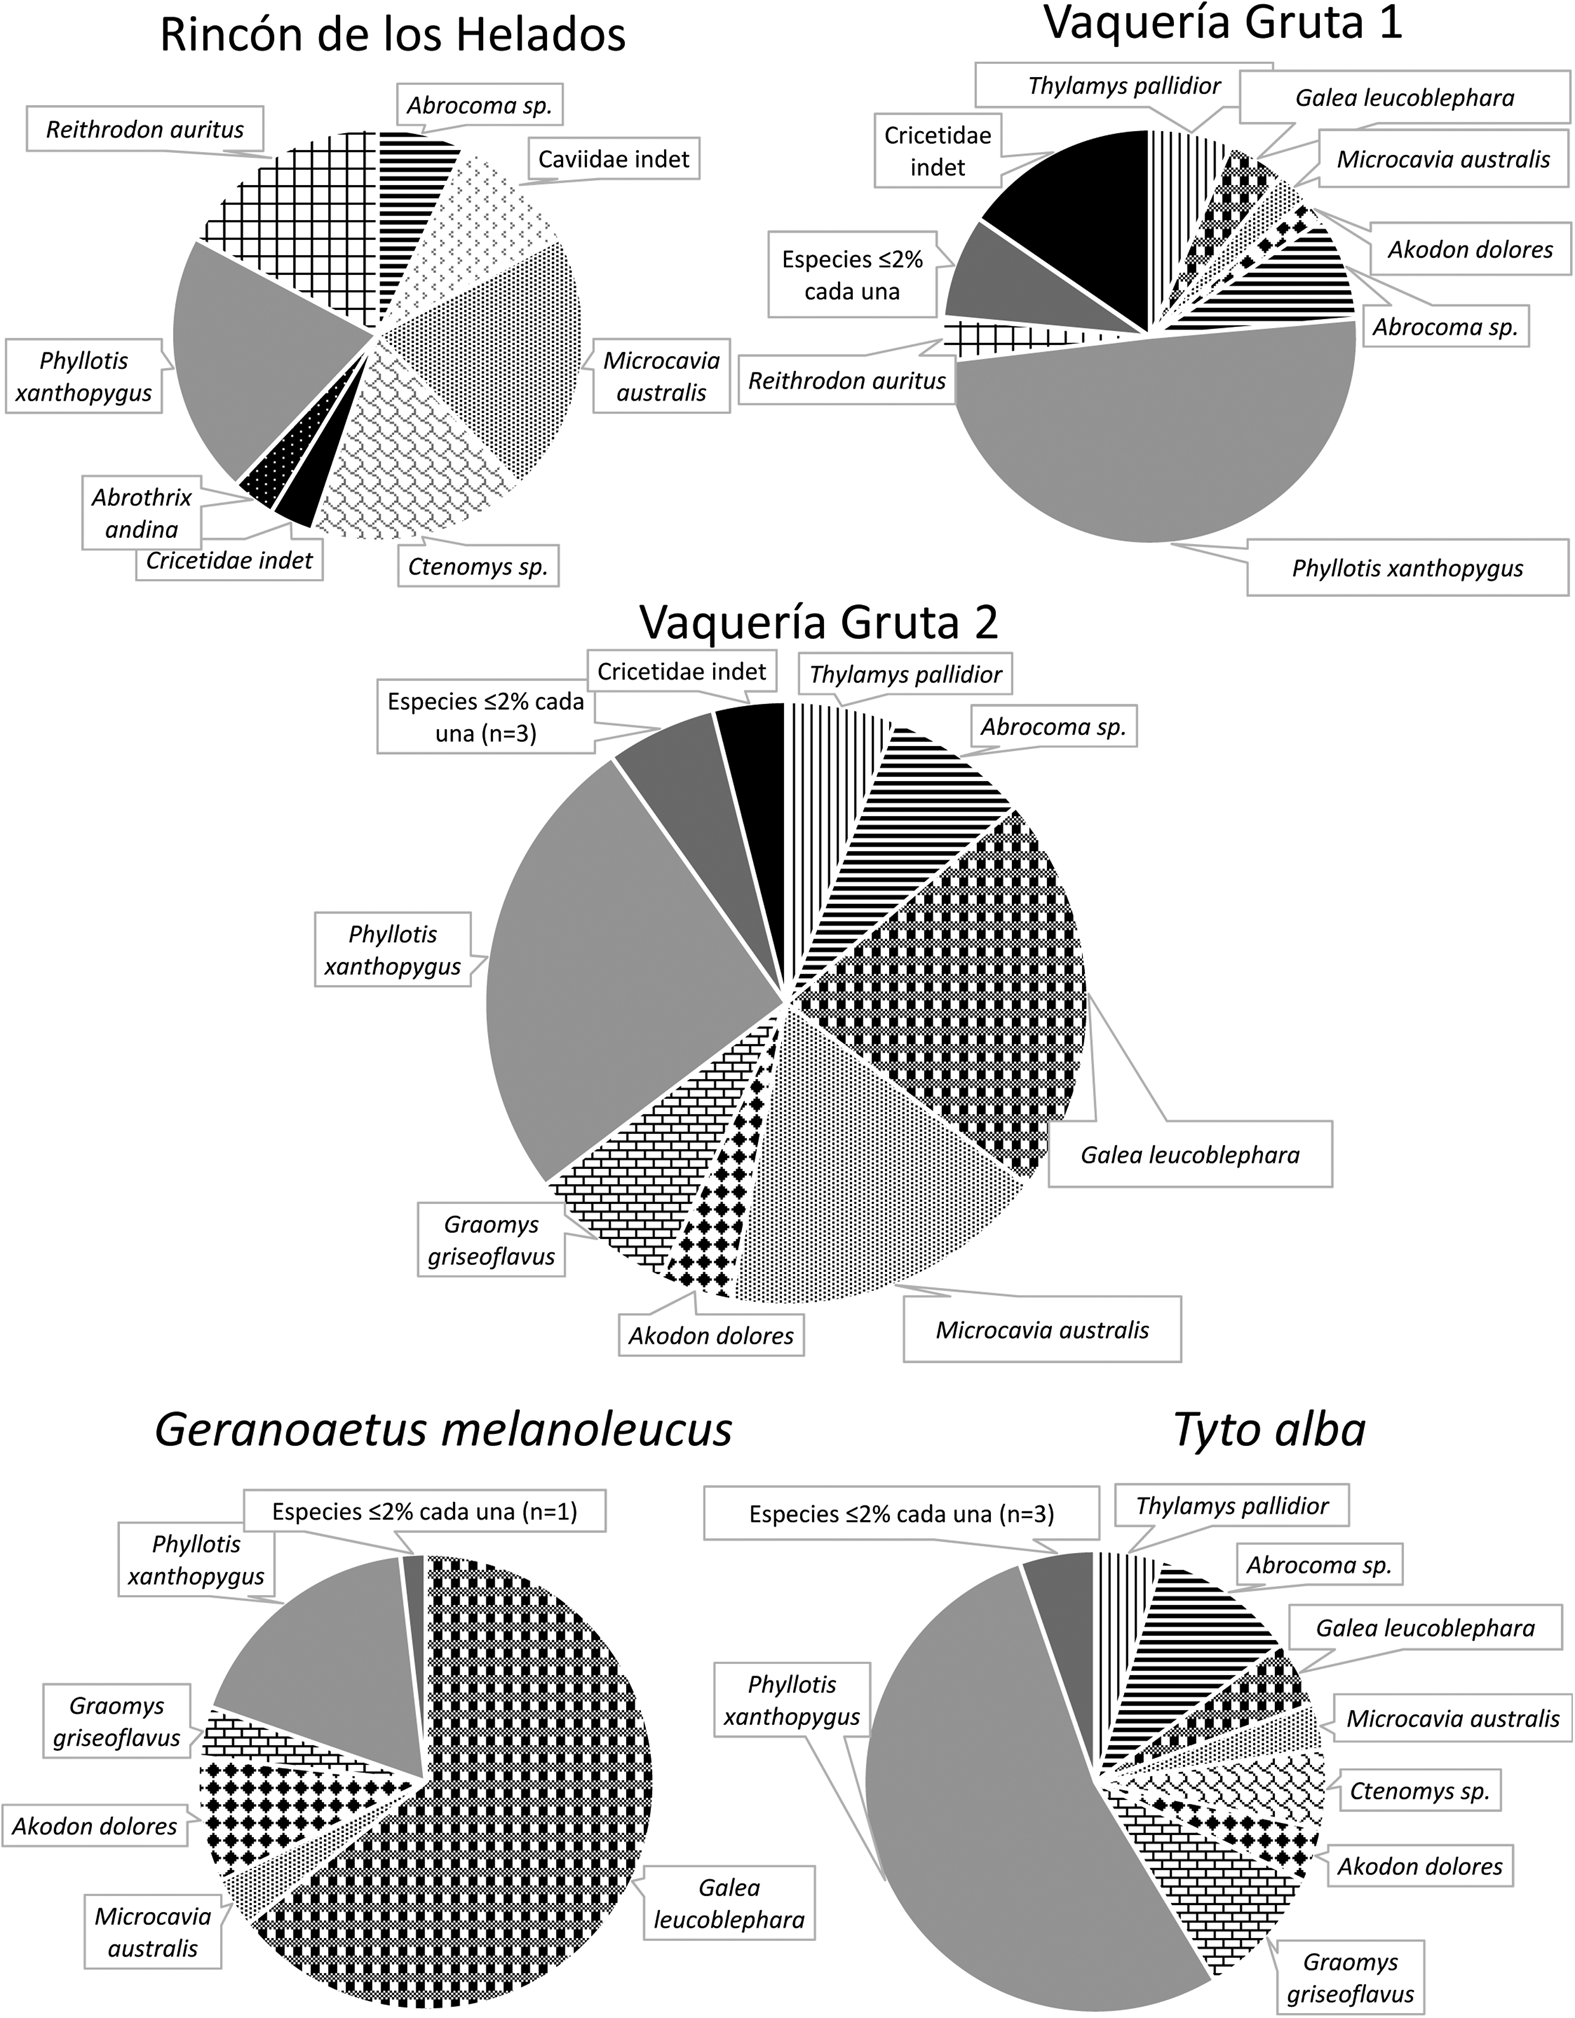
A pesar de su proximidad a VQG1 , en VQG2 se detectaron algunas diferencias en la composición taxonómica que pueden resultar de interés tanto desde una perspectiva tafonómica como paleoambiental (Figura 7). La riqueza taxonómica fue menor en VQG2 (=10) que en VQG1 (= 14) y que en el ensamble actual generado por T. alba (= 11), mientras que fue mayor que en el ensamble recuperado en egagrópilas actuales de G. melanoleucus (= 6) en la misma área de estudio (Tabla 3) y que en RH (= 6; López et al. Reference López, Chiavazza and Rosi2016). A pesar de la menor riqueza, se detectaron inclusive algunos taxa (en baja proporción, como el caso de Eligmodontia sp.) que tanto en VQG1 como en la muestra actual de T. alba también estuvieron escasamente representados (frecuencias menores al 2%). En VQG2 no se recuperaron algunas especies identificadas en VQG1, tales como Octomys mimax, Akodon cf. A. spegazzinii, Abrothrix andina y Calomys musculinus (López et al. Reference López, Chiavazza and Rosi2016). Sin embargo, esto podría deberse a la preferencia y disponibilidad dietarias de los depredadores que acumularon los conjuntos óseos de micromamíferos y también al menor tamaño de la muestra de VQG2.
Frecuencias relativas (%) de especies del ensamble de micromamíferos recuperado en el sitio arqueológico de Vaquería Gruta 2 y comparación con otros ensambles arqueológicos y actuales del área de estudio reportados previamente. Muestras arqueológicas: Vaquería Gruta 1 y Rincón de los Helados (López et al. Reference López, Chiavazza and Rosi2016). Muestras de egagrópilas actuales: Tyto alba y Geranoaetus melanoleucus (López et al. Reference López, Chiavazza and Rosi2016).

En VQG2, al igual que en VQG1 (López et al. Reference López, Chiavazza and Rosi2016), también se detectó R. auritus, especie extirpada actualmente en el área de estudio. En Argentina, esta especie habita discontinuamente en las regiones pampeana y noroeste, mientras que desde los 36° S hasta Tierra del Fuego se distribuye de forma relativamente homogénea. Prefiere ambientes abiertos, praderas, estepas arbustivas moderadamente cubiertas, pastizales bajos densos y áreas de ecotono bordeando bosques de Nothofagus (Pardiñas y Galliari Reference Pardiñas and Galliari2001; Pardiñas et al. Reference Pardiñas, Galliari, Teta, Patton, Pardiñas and D'Elía2015). En Mendoza, esta especie posee escasos registros actuales, todos en localidades del extremo meridional provincial, en áreas andinas y de piedemonte, asociadas a ambientes de Payunia (Pardiñas et al. Reference Pardiñas, Galliari, Teta, Patton, Pardiñas and D'Elía2015).
Si bien P. xanthopygus fue la especie más abundante en VQG2 (ca. 25%), su frecuencia fue considerablemente más baja que las detectadas para esta especieen el ensamble actual generado por T. alba y en el conjunto arqueológico de VQG1 (alrededor del 50% en cada muestra; López et al. Reference López, Chiavazza and Rosi2016; Figura 7). Esta menor proporción podría vincularse con el aporte mixto de presas producido en VQG2 por diversos tipos de aves rapaces o por la participación de rapaces que depredan sobre micromamíferos de mayores tamaños.
Tanto la diversidad H’ como la equitatividad J’ resultaron en valores ligeramente mayores que los obtenidos para la muestra arqueológica de VQG1 y para las actuales de T. alba y G. melanoleucus (López et al. Reference López, Chiavazza and Rosi2016). Esto demuestra que, a pesar de la dominancia de P. xanthopygus o G. leucoblephara, la diversidad y la equitatividad fueron igualmente elevadas, no predominando una especie por sobre el resto.
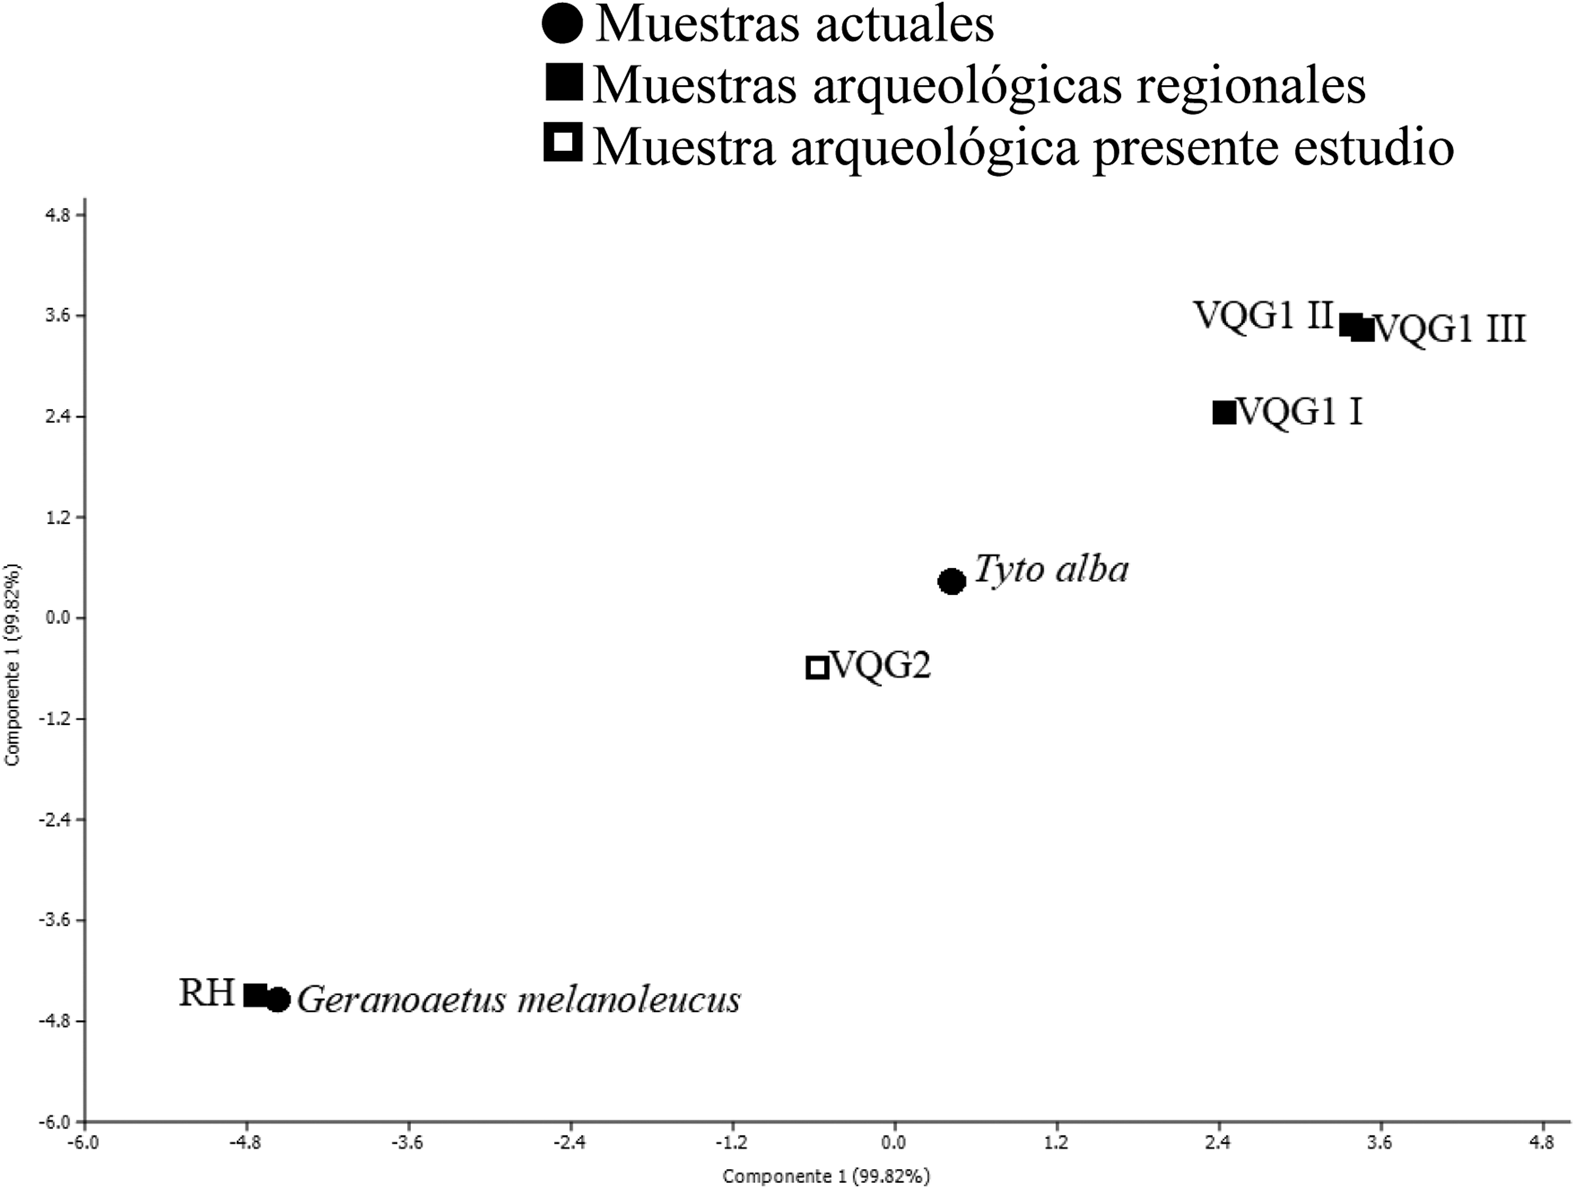
Con el propósito de detectar cambios y continuidades entre el ensamble arqueológico y el actual de micromamíferos en el área de estudio, también fue realizado de forma complementaria un ACP sobre la base de la diversidad H’, la equitatividad J’ y la riqueza (Figura 8). En este análisis se integraron los datos de las muestras de egagrópilas actuales de T. alba y G. melanoleucus recuperadas en el área circundante a VQG2 y los conjuntos arqueológicos de RH y VQG1 (López et al. Reference López, Chiavazza and Rosi2016). El componente 1 del ACP explicó el 99,82% de la variación. La muestra de VQG2 se localizó equidistante entre las muestras arqueológicas de VQG1 y de RH. Asimismo, la muestra arqueológica de VQG2 se aproximó a la muestra actual de T. alba (inclusive más que las de VQG1). Sin embargo, la equidistancia de VQG2 respecto a la estructura taxonómica de las muestras del sitio de Puna (RH; López, Fernández et al. Reference López, Fernández, Montalvo, Chiavazza and De Santis2017) con el de Monte-Cardonal adyacente (VQG1) podría relacionarse con el posible origen mixto de la acumulación ósea de micromamíferos recuperada en VQG2 o, al menos, con la participación de un depredador diferente que el identificado en la acumulación de los restos óseos de micromamíferos recuperados en VQG1.
Análisis de Componentes Principales correspondiente a la acumulación ósea de micromamíferos recuperada en el sitio arqueológico Vaquería Gruta 2 (VQG2). Se integraron la Diversidad H’, la Equitatividad J’ con base H’ y la riqueza y se compararon con muestras actuales de Tyto alba y Geranoaetus melanoleucus recuperadas en el ecotono Monte-Cardonal en áreas cercanas al sitio y con muestras arqueológicas reportadas para el área. Abreviaciones: RH = Rincón de los Helados; VQG1 I = Vaquería Gruta 1 Componente I; VQG1 II = Vaquería Gruta 1 Componente II; VQG1 III = Vaquería Gruta 1 Componente III (López y Chiavazza Reference López and Chiavazza2019).

Tanto la participación de una rapaz diferente o el posible origen mixto de la muestra arqueológica, como la composición y diversidad taxonómica detectadas, podrían indicar un potencial escenario de mayor heterogeneidad ambiental para el Holoceno tardío de la región de estudio. Este escenario, a pesar de la estabilidad climática general registrada para los últimos 4.000 años (Navarro et al. Reference Navarro, Rojo, De Francesco, Hassan, Gil and Neme2012 y referencias allí citadas), habría sido transformado desde que actividades económicas extractivas intensivas comenzaran a modificar profundamente el suelo, la cobertura vegetal y el paisaje general del área desde la llegada de los conquistadores europeos en el siglo dieciséis (Chiavazza y Prieto Olavarría Reference Chiavazza and Olavarría2012; Dalmasso et al. Reference Dalmasso, Carretero, Videla, Puig and Candia1999; Mafferra et al. Reference Mafferra, Chiavazza and Juñent2018). Estas pronunciadas transformaciones habrían disminuido y empobrecido tanto los hábitats óptimos para la distribución de ciertas especies como los parches en los que podría haber habido distribuciones simpátricas de especies actualmente alopátricas. Las evidencias recuperadas en VQG2 coinciden generalmente con las tendencias detectadas en el área de estudio en otros sitios de Monte y Puna ( López et al. Reference López, Chiavazza and Rosi2016), relacionadas con el empobrecimiento general a nivel de riqueza, diversidad y equitatividad de los ensambles de micromamíferos actuales en comparación con los pasados. Estas tendencias han sido identificadas y discutidas previamente para áreas de Pampa y Patagonia (Teta et al. Reference Teta, Formoso, Tammone, de Tommaso, Fernández, Torres and Pardiñas2014). La integración de las evidencias tafonómicas para VQG1 y VQG2, en donde probablemente distintos tipos de rapaces acumularon los restos óseos y dentarios de micromamíferos, también fortalece el conocimiento de la composición taxonómica de los ensambles, ya que de este modo, ambos serían producto de distintas preferencias dietarias.
Las posibles condiciones de mayor heterogeneidad ambiental habrían permitido la co-ocurrencia de especies de micromamíferos con requerimientos ambientales diversos y con distribuciones actualmente alopátricas (e.g., R. auritus en RH, VQG1 y VQG2; O. mimax en VQG1), generando agregados no análogos, es decir, comunidades sin análogos modernos (sensu Stewart Reference Stewart2008). El registro de VQG2, complementado y relacionado con los ensambles arqueológicos reportados para áreas de Puna y Monte en el área de estudio (López et al. Reference López, Chiavazza and Rosi2016) consolida las inferencias sobre esa posible mayor heterogeneidad ambiental durante el Holoceno tardío en comparación con la actualidad. Además, especies oportunistas o generalistas que resultan abundantes en áreas impactadas por actividades antrópicas como la agricultura, el pastoreo, el desmonte o el fuego (e.g., C. musculinus, G. griseoflavus) no estuvieron fuertemente representadas en la muestra arqueológica o directamente no fueron detectadas. Sin embargo, algunas de ellas tampoco fueron identificadas o están representadas en muy baja frecuencia en las muestras actuales de T. alba y de G. melanoleucus que se presentan en la Tabla 3.
Al igual que lo reportado por López y colaboradores (Reference López, Chiavazza and Rosi2016), la co-ocurrencia de especies en el registro arqueológico podría deberse a la acción de los depredadores sobre distintos pisos altitudinales de vegetación (Puna, Cardonal y Monte), ya que la altitud en el área de estudio varía considerablemente en pocos kilómetros. La mezcla en un ensamble arqueológico particular, de especies de micromamíferos procedentes de distintos pisos altitudinales de vegetación, también ha sido reportada por Ortiz y Pardiñas (Reference Ortiz and Pardiñas2001) para áreas del Noroeste Argentino durante el Pleistoceno tardío. A pesar de ello, tanto los depredadores pasados como actuales cazaron sobre la misma estructura altitudinal y sobre esa misma estructura se han detectado las diferencias entre ensambles pasados y modernos.
La mayor heterogeneidad ambiental detectada para el Holoceno tardío podría indicar que los grupos humanos prehispánicos que habitaron la región habrían habitado en áreas con mayor cantidad de parches de recursos.
Conclusión
Distintos estudios paleoclimáticos realizados en el COA señalan que las condiciones climáticas actuales se habrían instalado en el área alrededor de 4000 aP (Navarro et al. Reference Navarro, Rojo, De Francesco, Hassan, Gil and Neme2012). A pesar de dicha estabilidad climática, la ausencia de R. auritus en la actualidad, sumada a las extirpaciones y/o retracciones de otras especies de micromamíferos reportadas para el área de estudio, tales como O. mimax y Abrothrix andina, respectivamente, formando agregados no análogos (López et al. Reference López, Chiavazza and Rosi2016), podrían reflejar menores o moderadas fluctuaciones ambientales suficientemente capaces de producir modificaciones en la estructura de la vegetación y en la consecuente disponibilidad de hábitats y microhábitats adecuados para las distintas especies. De esta manera, este contexto de mayor heterogeneidad ambiental, también podría haber generado mayor disponibilidad de parches de vegetación para los grupos humanos que habitaron el área.
Las actividades antrópicas que han afectado negativamente la abundancia, la diversidad y la riqueza de flora y fauna desde el siglo dieciséis, sumadas a la posible mezcla de taxones como consecuencia de la depredación de las rapaces en distintos niveles altitudinales de vegetación, podrían constituir factores relevantes para explicar los cambios identificados. Es necesario ampliar los estudios regionales referidos a las comunidades arqueológicas y actuales de micromamíferos para fortalecer el conocimiento sobre los ambientes regionales y locales en el pasado y su evolución a través del tiempo.
Cabe reflexionar sobre la ausencia generalizada de señales de actividad antrópica en las acumulaciones óseas de micromamíferos recuperadas en sitios de altura en el COA. Esto seguramente esté relacionado con la elevada abundancia de especies de alto rendimiento energético (principalmente Lama guanicoe) durante todo el Holoceno en el área cordillerana, a pesar de la mayor amplitud de dieta detectada para los grupos humanos desde aproximadamente 2000 aP.
Agradecimientos
Las sugerencias y comentarios de tres revisores anónimos enriquecieron enormemente este trabajo. Agradecemos al cuerpo de guardaparques de la Reserva Natural Villavicencio por su predisposición, trabajo y ayuda constante.
Declaración de disponibilidad de datos
La muestra arqueológica analizada, así como los datos obtenidos a partir del presente análisis, se encuentran disponibles en el Laboratorio de Arqueología Histórica y Etnohistoria del Instituto de Arqueología y Etnología de la Facultad de Filosofía y Letras, Universidad Nacional de Cuyo. Para acceder a ellos, también pueden contactarse con cualquiera de los autores.