Diversos estudios demuestran que los peces han jugado un papel central en el proceso de intensificación, como algunos autores sostienen por ejemplo para la costa pacífica de Norteamérica (e.g., Ames Reference Ames1994, Reference Ames, Duer and Turner2005; Butler y Campbell Reference Butler and Campbell2004; Kelly Reference Kelly1995). Sólo recientemente se ha empezado a explorar la importancia de este recurso en ambientes acuáticos continentales de Sudamérica, aunque principalmente en ecosistemas de alta productividad primaria fluviales o lacustres (Béarez y Prümers Reference Béarez, Prümers and Plogmann2007; Cahiza Reference Cahiza2003; Chiavazza Reference Chiavazza2013; Corbat Reference Corbat2016; Erickson Reference Erickson2000; González Reference González2005; Martínez et al. Reference Martínez, Zangrando and Stoessel2005; Prestes-Carneiro et al. Reference Prestes-Carneiro, Béarez, Bailon, Py-Daniel and Neves2016; Quintana y Mazzanti Reference Quintana, Mazzanti, Mazzanti and Quintana2001; Stoessel Reference Stoessel2012; Svoboda y Gómez Otero Reference Svoboda and Otero2015).
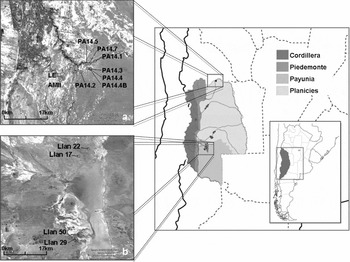
En el centro-occidente argentino (Figura 1), la incorporación de los peces a la dieta, junto con otros recursos animales considerados de bajo rendimiento individual (e.g., Broughton Reference Broughton1994a), ha sido entendida en el marco de un proceso de amplitud de la dieta y de ocupación de espacios marginales que se habría desencadenado como respuesta a la disminución de recursos de mayor rendimiento energético—el guanaco (Lama guanicoe)—hacia los 2000 años a.P. Estos cambios han sido relacionados con un proceso de intensificación (Gil Reference Gil2006; Gil et al. Reference Gil, Neme, Tykoy, Novellino, Cortegoso and Durán2009; Johnson et al. Reference Johnson, Gil, Neme, Freeman, López and Cardillo2009, Reference Johnson, Gil, Neme and Freeman2015; Neme Reference Neme2002, Reference Neme2007; Neme y Gil Reference Neme and Gil2008a, Reference Neme and Gil2008b; Neme et al. Reference Neme, Gil, Otaola and Giardina2013; Otaola et al. Reference Otaola, Wolverton, Giardina and Neme2015), al igual que en otros ambientes áridos de regiones aledañas, como el curso superior del río Colorado (Martínez Reference Martínez2015; Neme Reference Neme2002, Reference Neme2007).
Localización de los sectores estudiados y unidades biogeográficas del centro-occidente argentino. (a) Guanacache; (b) Llancanelo.

Este trabajo busca mejorar el conocimiento sobre el rol de los peces en la dieta humana de ambientes áridos y semiáridos continentales, centrando la discusión sobre el rol de los mismos en el proceso de intensificación. Específicamente, se pretende evaluar la importancia de los peces como recurso para la subsistencia humana en el centro-occidente argentino y sus cambios en el tiempo, focalizando en el análisis de los restos de ictiofauna. Para ello, se comparan los conjuntos zooarqueológicos provenientes de dos humedales significativos regionalmente en esta macro-región, donde este recurso estuvo disponible: Guanacache y Llancanelo, emplazados en el norte y sur del centro occidente argentino, respectivamente (Figura 1). En este sentido, el trabajo constituye un análisis integrador y comparativo del registro arqueofaunístico general con el de peces, entre los sitios emplazados en los humedales de Guanacache y Llancanelo para los últimos 5.000 años previos al contacto hispano-indígena.
Variabilidad Ambiental, Ecosistemas e Ictiofauna en el Centro-Occidente
El centro-occidente argentino es una macro-región cultural y ambientalmente heterogénea, delimitada entre los 30° y los 40° de latitud sur en el flanco oeste del país (Gil y Neme Reference Gil, Neme, Gascón and José Ots2013). Climáticamente, se distinguen regiones altamente contrastantes debido a su relieve, las masas de aire marítimo dominantes y la estación en la que llueve. Durante el verano, la humedad llega desde el Atlántico a las tierras bajas del desierto de Monte, en las planicies orientales. En el invierno, la humedad proviene del Pacífico y las precipitaciones caen principalmente sobre los desiertos andino y patagónico de las montañas occidentales, el piedemonte y la mayor parte de Payunia.
El desierto de Monte cubre la mayor parte del área y se caracteriza por un clima árido con precipitaciones de 100–350 mm por año (Campos y de Pedro Reference Campos and de Pedro2001), siendo el tipo de pastizal más árido de Argentina (Abraham et al. Reference Abraham, del Valle, Roig, Torres, Ares, Coronato and Godagnone2009). Se caracteriza por una cubierta vegetal de estepa arbustiva con predominio de Larrea spp. (Zygophyllaceae) y varias especies de Prosopis en zonas abiertas donde el agua es accesible (Cabrera Reference Cabrera1971). En el centro de este desierto, en los límites entre Mendoza, San Juan y San Luis, se encuentra el complejo lacustre de Guanacache. Este sistema de lagunas y bañados encadenados está situado a unos 500 m snm, es alimentado principalmente por los ríos San Juan y Mendoza (López et al. Reference López, Morgan and Montenegro2002) y presenta un clima seco y cálido.
Hacia el sur penetran las mesetas y volcanes de Payunia, una región con tendencia al clima frío y árido (Capitanelli Reference Capitanelli1969) y precipitaciones de entre 200 y 400 mm anuales, donde confluyen elementos del Monte y de Patagonia. Sobre un suelo formado por mantos de basalto, escorias y tobas volcánicas, se desarrollan las estepas de solupe (Ephedra ochreata) y otros arbustos. Allí se emplaza la laguna salina de Llancanelo, a unos 1376 m snm, sistema endorreico alimentado principalmente por los ríos Malargüe, Malo, Mocho y Chacay (López et al. Reference López, Morgan and Montenegro2002)
Las dos lagunas mencionadas se inscriben en la provincia ictiogeográfica Sub-andina cuyana, aunque corresponden a cuencas distintas, cuya diferencia principal radicaría en la densidad más que en la diversidad de especies disponibles (Arratia et al. Reference Arratia, Peñafort and Menu-Marque1983). En este sentido, en ambas cuencas las especies de peces potencialmente consumibles más importantes son el pejerrey patagónico (Odontesthes hatcheri) y la perca (Percichthys trucha), aunque se encuentran además el otuno (Diplomystes cuyanus), el bagrecito anguila (Hatcheria macraei), otras especies de Siluriformes, Cyprinodontiformes (Jenynsia sp.), Characiformes (Cheirodon sp.) y, en el caso de Guanacache, la anguila criolla (Synbranchus marmoratus). Si bien no se cuenta con información adecuada para estimar la abundancia relativa en que estas especies se encontraban naturalmente en cada laguna, los muestreos actuales en sectores de Llancanelo (YPF 2009) indican una representación notablemente mayor de pejerreyes que de percas. Estas últimas se limitan a aparecer, en muy baja frecuencia, en las nacientes de algunos arroyos. Por otro lado, Peñafort (Reference Peñafort1981) releva abundantes percas y ningún pejerrey en el curso inferior del río Mendoza, uno de los que alimenta Guanacache. Ambas especies son de hábitos gregarios, pero la perca puede triplicar en peso al pejerrey (con valores que alcanzan los 3,6 kg y 1 kg de peso, respectivamente) y ha sido caracterizada mayormente como pelágica en ambientes lacustres (Menni Reference Menni2004; Ringuelet Reference Ringuelet1975), mientras que el pejerrey se presenta en un hábitat litoral. Por otro lado, la perca se encuentra protegida por espinas que dificultarían su captura.
Antecedentes acerca de la Explotación de Peces en el Centro-Occidente Argentino
La mayor parte de las investigaciones relacionadas con la explotación de los peces se limitan al norte del centro-occidente argentino (el noreste de Mendoza), donde tanto evidencias arqueológicas como relatos históricos señalan un consumo sistemático de este recurso especialmente en las lagunas de Guanacache (Abraham y Prieto Reference Abraham and Prieto1981; Bueno Reference Bueno1938 [1790]; Cahiza Reference Cahiza2003; Chiavazza Reference Chiavazza2007, Reference Chiavazza2013; Chiavazza y Prieto Reference Chiavazza and Prieto2008; de Rosales Reference de Rosales1938 [1665]; García Llorca y Cahiza Reference García Llorca and Cahiza2007; Mac Donagh Reference Donagh and Emiliano1950; Prieto Reference Prieto1998; Rusconi Reference Rusconi1962; Videla Reference Videla1938 [1801]; Vignati Reference Vignati1953; Villanueva y Roig Reference Villanueva and Roig1995). Para este sector, si bien no se cuenta con evidencia arqueológica concluyente que permita confirmar la existencia de tecnología de captura en masa, los análisis históricos y etnográficos señalan el uso de redes (Chiavazza Reference Chiavazza2009; Prieto Reference Prieto1998; Rusconi Reference Rusconi1961). Esta situación contrasta con las tendencias en el sur de Mendoza, donde tanto las investigaciones arqueológicas como las refe- rencias históricas—excepto algunas menciones bibliográficas (Gambier Reference Gambier1985; Rusconi Reference Rusconi1961)—carecían hasta momentos recientes de datos sobre el uso de los peces como recurso para la subsistencia humana prehispánica. Los trabajos específicamente ictioarqueológicos del centro-occidente argentino comenzaron recientemente, tanto al norte (Cahiza Reference Cahiza2003) como al sur del Diamante (Corbat et al. Reference Corbat, Zangrando, Gil, Salemme, Santiago, Alvarez, Piana, Vazquez and Mansur2009).
Intensificación y Explotación de Peces: Expectativas para el Centro-Occidente Argentino
La intensificación ha sido uno de los procesos aducidos en las últimas décadas a la hora de interpretar cambios diacrónicos en la explotación de recursos y la incorporación en la dieta de aquellos de bajo rendimiento individual, como los peces (e.g., Broughton Reference Broughton1994a; Johnson et al. Reference Johnson, Gil, Neme and Freeman2015; Nagaoka Reference Nagaoka2002). Estas propuestas conllevan una serie de expectativas arqueológicas que pueden contrastarse adecuadamente con el registro arqueofaunístico (e.g., Butler y Campbell Reference Butler and Campbell2004; Nagaoka Reference Nagaoka2002; Zangrando Reference Zangrando2009a, Reference Zangrando2009b).
La intensificación se refiere al proceso por el cual los grupos humanos obtienen más recursos por unidad de tiempo o de trabajo (Binford Reference Binford2001; Johnson et al. Reference Johnson, Gil, Neme and Freeman2015; Morrison Reference Morrison1994; Otaola et al. Reference Otaola, Wolverton, Giardina and Neme2015; Zangrando Reference Zangrando2009a, Reference Zangrando2009b). No obstante, este proceso ha sido definido de variadas formas, con diferentes implicancias teóricas (Ames Reference Ames, Duer and Turner2005; Butler y Campbell Reference Butler and Campbell2004; Morgan Reference Morgan2015; Zangrando Reference Zangrando2009b). Para simplificar la complejidad del tema, se plantea que, por un lado, algunos investigadores (e.g., Ames Reference Ames1994, Reference Ames, Duer and Turner2005) conciben la intensificación sensu lato (Morgan Reference Morgan2015). En este marco, el incremento en la productividad puede alcanzarse a través de mecanismos culturales, tales como tecnología y organización del trabajo, que aumenten la eficacia del aprovisionamiento (es decir, el rendimiento por unidad de esfuerzo). El proceso de intensificación conduciría así a la especialización. Para otros investigadores, más acorde con el sensu stricto de la perspectiva boserupiana (Morgan Reference Morgan2015), el incremento en la producción ocurre a expensas de una disminución general de la eficiencia de aprovisionamiento (e.g., Broughton Reference Broughton1994a, Reference Broughton1994b, Reference Broughton1997, Reference Broughton1999; Grayson y Delpech Reference Grayson and Delpech1998). Esta segunda perspectiva es consistente con las aplicaciones arqueológicas de los modelos de aprovisionamiento óptimo (Broughton Reference Broughton1994a, Reference Broughton1997; Butler Reference Butler2000; Janetski Reference Janetski1997; Morgan Reference Morgan2015; Nagaoka Reference Nagaoka2002). Un ejemplo de ello es el modelo de selección de presas, en el cual los recursos son ordenados en función de su relación costo-beneficio, generalmente considerando la energía calórica neta provista por un recurso por unidad de tiempo invertido en su adquisición y procesamiento (e.g., Bettinger Reference Bettinger2009; Codding y Bird Reference Codding and Bird2015). De esta manera, los predadores tomarán los recursos de mayor jerarquía hasta que sus números disminuyan por la presión de la explotación y tengan que incorporar recursos de rango menor, que por definición demandan más energía para ser procesados, disminuyendo así la eficiencia del proceso de aprovisionamiento. En síntesis, esta perspectiva teórica propone que los humanos aumentan el uso de recursos de bajo rango a medida que la población crece y la abundancia de los recursos de mayor rango decrece, o por razones distintas, como el cambio climático. La intensificación en este caso conduce a la diversificación.
El rol e importancia de los peces en la dieta ha sido uno de los centros de atención a la hora de discutir el proceso de intensificación en muchos trabajos (Ames Reference Ames1994; Butler y Campbell Reference Butler and Campbell2004; Kelly Reference Kelly1995; Zangrando Reference Zangrando2009a, Reference Zangrando2009b). Parte de la significación de este recurso puede entenderse a partir de modelos que predicen bajo qué condiciones los cazadores-recolectores podrán o no intensificar y cuál será el grupo de recursos sobre los que se basará el inicio de la intensificación (Binford Reference Binford2001; Johnson y Hard Reference Johnson and Hard2008; Johnson et al. Reference Johnson, Gil, Neme, Freeman, López and Cardillo2009, Reference Johnson, Gil, Neme and Freeman2015). Aunque se han propuesto varios factores que pueden dar cuenta de casos particulares de intensificación de recursos (e.g., Ames Reference Ames1994; Bender Reference Bender1978; Broughton Reference Broughton1994a; Cohen Reference Cohen1977; Morrison Reference Morrison1994; Yesner Reference Yesner1984), el aumento demográfico es frecuentemente visto como un desencadenante de este proceso (Broughton et al. Reference Broughton, Cannon and Bartelink2010; Cannon Reference Cannon2000; Johnson et al. Reference Johnson, Gil, Neme, Freeman, López and Cardillo2009, Reference Johnson, Gil, Neme and Freeman2015; Otaola et al. Reference Otaola, Wolverton, Giardina and Neme2015). En cualquier caso, los patrones resultan de una disminución en los encuentros con los recursos de mayor rendimiento (Codding y Bird Reference Codding and Bird2015). Binford (Reference Binford2001) sugirió que superado un umbral de densidad poblacional de aproximadamente 0,09 personas por km2, las opciones de movilidad se ven seriamente limitadas y se registra un cambio en la subsistencia: básicamente, los cazadores-recolectores pasan a depender de plantas terrestres o de recursos acuáticos, según la disponibilidad de los mismos. En ese mismo marco, y siguiendo las conclusiones de Johnson y coautores (Reference Johnson, Gil, Neme, Freeman, López and Cardillo2009, Reference Johnson, Gil, Neme and Freeman2015), un aumento en la inversión de trabajo sobre los recursos acuáticos debería observarse donde estos estén disponibles, especialmente en hábitats donde la temperatura efectiva sea menor a los 12,72°C. Además, estos modelos proponen que la evidencia arqueológica del proceso de intensificación debería aparecer primero en el espacio geográfico donde las tasas de crecimiento demográfico humano se supone que fueron más altas.
Según las primeras crónicas europeas, en el centro-occidente argentino las poblaciones humanas mostraban dos patrones contemporáneos y contrastantes de subsistencia, movilidad y organización social, coincidentes con dos grandes grupos étnicos. En en el sector septentrional se encontraban los huarpes, caracterizados como agricultores, sedentarios y con una demografía relativamente alta; al sur del río Diamante estaban los puelches, que han sido descritos como cazadores-recolectores, con baja demografía y altamente móviles (Michieli Reference Michieli1978, Reference Michieli1983; Prieto Reference Prieto1999; Vignati Reference Vignati1940). Sin embargo, es escasa y con poco detalle la información demográfica de los grupos humanos que poblaron la región. Abraham y Prieto (Reference Abraham and Prieto1981) sostienen que entre 300 y 1650 d.C. se habría experimentado un crecimiento poblacional sostenido en los grandes complejos lacustres del noreste Mendocino, con un promedio de 2,19 habitantes por km2. A partir de la frecuencia de fechas radiocarbónicas en distintos sectores de Mendoza, Gil y coautores (Reference Gil, Giardina, Neme and Ugan2014), aunque no ofrecen cifras específicas, sugieren incrementos poblacionales durante algunos momentos de los últimos 2.000 años, los cuales sucederían primero en el norte, luego en el centro y finalmente en el sur. Además, los autores sugieren una mayor estabilidad de las poblaciones locales en el norte durante los últimos 1500 años a.P.
Paralelamente, la tasa de encuentro con los recursos está mediada por la abundancia, distribución y previsibilidad de los mismos en el ambiente (Smith Reference Smith1983). En este sentido, el sector meridional del centro-occidente argentino, dominado por el desierto de Patagonia, presenta mayor capacidad de sustento de poblaciones de guanaco (propuesto como el recurso de mayor rendimiento) que su contraparte septentrional, dominada por el desierto de Monte (Neme et al. Reference Neme, Wolverton and Gil2012). El modelo elaborado por Politis y coautores (Reference Politis, Prates, Merino and Tognelli2011) muestra que en los ambientes de pastizales abiertos se dan las mejores condiciones para la ocurrencia de altas densidades de guanaco, especialmente en comparación con aquellos ecosistemas arbustivos cerrados localizados en el Monte y con las áreas más altas de Cordillera. A modo de ejemplo, las densidades poblacionales para guanacos en un ambiente del desierto de Monte (Parque Provincial Ischigualasto, en San Juan) son estimadas en menos de un individuo por km2 (Acebes et al. Reference Acebes, Traba, Malo, Ovejero and Borghi2010), mientras que para el sector más septentrional de la Provincia Patagónica (La Payunia) la cantidad de guanacos por km2 alcanza los 40 (Puig et al. Reference Puig, Videla, Cona and Roig2008). Allí las precipitaciones además son mayores que en el norte (Abraham Reference Abraham, Abraham and Martínez2000; Norte Reference Norte2000), lo que se relaciona positivamente con la biomasa de ungulados (Binford Reference Binford2001).
En Llancanelo, donde no hay evidencia de captura masiva de peces y la presa de mayor productividad individual (el guanaco) es más abundante, se espera que ante una disminución en la oferta de este recurso se produzca una mayor amplitud de la dieta. Por otro lado, para el sector de las lagunas septentrionales, la menor abundancia de guanacos, la mayor disponibilidad de peces y la posibilidad de su captura en masa, habrían incrementado la jerarquía de estos recursos menores (e.g., Butler Reference Butler1996; Corbat Reference Corbat2016; Lindstrom Reference Lindstrom and Plew1996; Madsen y Schmitt Reference Madsen and Schmitt1998; Ugan Reference Ugan2005), por lo que se propone que debió haber habido una menor amplitud de la dieta, con un foco en este tipo de recursos y una estrategia de mayor especialización.
Sobre la base de lo expresado, se plantea a modo hipotético que de haber existido procesos de intensificación en el norte y sur del centro-occidente argentino, los humedales mostrarían un rol más significativo de los peces en la subsistencia humana en el complejo lagunar Guanacache (norte) que en la laguna Llancanelo (sur). Además, el uso de este recurso habría sido anterior en el primero de estos sectores. De este modo, se espera observar patrones divergentes entre ambos humedales a partir de los 2000 años a.P., con una menor variedad de especies consumidas en Guanacache, una baja representación del guanaco y un predominio de los peces en el registro arqueológico, que pasarían a dominar los conjuntos de modo casi exclusivo. En Llancanelo, en cambio, las expectativas señalan tendencias hacia una inclusión de mayor cantidad de taxones, que estarían representados de forma relativamente uniforme, con un incremento en la frecuencia de animales pequeños (incluyendo los peces), frente a una disminución de los artiodáctilos.
Materiales y Métodos
Los conjuntos faunísticos analizados provienen de dos sectores del centro-occidente argentino: las lagunas de Guanacache (sitios Altos de Melién II, La Empozada, PA 14.1, PA 14.3, PA 14.4, PA 14.4B, PA 14.5 y PA 14.7), al norte; y la laguna de Llancanelo (sitios Llan 17, Llan 22, Llan 29 y Llan 50), al sur (Figura 1). Los conjuntos utilizados en este análisis constituyen la totalidad del material ictioarqueológico disponible y provienen tanto de trabajos propios (Chiavazza Reference Chiavazza2007, Reference Chiavazza2013; Corbat y Giardina Reference Corbat and Giardina2012; Corbat et al. Reference Corbat, Zangrando, Gil, Salemme, Santiago, Alvarez, Piana, Vazquez and Mansur2009, Reference Corbat, Cahiza, Llorca and Gil2015; Giardina et al. Reference Giardina, Corbat, Otaola, Salgán, Ugan, Neme and Gil2014) como de investigaciones llevadas adelante por otros autores (Cahiza Reference Cahiza2003; García Llorca y Cahiza Reference García Llorca and Cahiza2007). Los contextos con fauna post-hispánica han sido excluidos de esta investigación debido a que introducen procesos culturales de otra complejidad y que exceden el objetivo propuesto.
La cronología de la explotación de peces y su relación con la ocupación de los ambientes en el contexto macro-regional fueron evaluadas a partir de los fechados radiocarbónicos asociados tanto a señales humanas para los últimos 5000 años a.P. (Gil et al. Reference Gil, Giardina, Neme and Ugan2014) como al registro ictioarqueológico de distintos sectores del centro-occidente argentino (Chiavazza Reference Chiavazza2007, Reference Chiavazza2013; Corbat Reference Corbat2016; Corbat et al. Reference Corbat, Zangrando, Gil, Salemme, Santiago, Alvarez, Piana, Vazquez and Mansur2009; Giardina et al. Reference Giardina, Corbat, Otaola, Salgán, Ugan, Neme and Gil2014; Neme et al. Reference Neme, Gil, Garvey, Llano, Zangrando, Franchetti, de Francesco and Michieli2011).
La identificación taxonómica de los conjuntos fue realizada de manera macroscópica, empleando colecciones osteológicas de referencia. Para determinar la representación relativa de las distintas especies identificadas en los conjuntos faunísticos se utilizaron medidas de abundancia taxonómica (NISP y MNI) convencionalmente implementadas en este tipo de estudios (e.g., Binford Reference Binford1981; Grayson Reference Grayson1984; White Reference White1953). En los peces, el elemento empleado para estimar el MNI fue el otolito, atendiendo al criterio de lateralidad. En los casos en que esta unidad anatómica estaba ausente, se emplearon elementos únicos en el esqueleto, como los huesos basioccipitales. En última instancia, se utilizaron las vértebras, asumiendo una presencia generalizada de 33 vértebras por individuo, valor promedio para las muestras de referencia disponibles de Percichthys trucha y Odontesthes hatcheri.
Se emplearon diversos índices para evaluar la abundancia y diversidad de especies explotadas en los distintos sectores y sus cambios en el tiempo (Cruz-Uribe Reference Cruz-Uribe1988; Grayson Reference Grayson1984; Lyman Reference Lyman2008; Mengoni Goñalons Reference Goñalons and Guillermo2010; Reitz y Wing Reference Reitz and Wing2008). Para ello fue necesario incorporar información relativa a otros taxones distintos de los peces, la cual fue obtenida de las referencias citadas en la Tabla 2 y se sintetiza en el material complementario (Tabla complementaria 1). Debido a la dificultad para cuantificar y ponderar la contribución de los huevos a la dieta—en relación con los otros recursos faunísticos— sólo se cuantificaron restos óseos de vertebrados (incluyendo dientes y otolitos) y se descartaron los fragmentos de cáscara de huevo.
Las placas de dasipódidos son elementos que aparecen con frecuencia en el registro zooarqueológico del centro-occidente argentino y a menudo constituyen el único elemento representado de estos animales, en cuyo caso excluirlas del análisis conllevaría el no considerarlos como recurso explotable. Por otro lado, la coraza ósea de los armadillos está formada por numerosas placas, multiplicando notablemente la cantidad de elementos preservables (Vizcaíno y Bargo Reference Vizcaíno and Bargo1993) y con ello el riesgo de sobreestimar su importancia. Para incluir las placas dérmicas sin riesgo de sobreestimar la representación de los dasipódidos, se estimó la proporción entre la cantidad de estos elementos (ca. 870; Montalvo et al. Reference Montalvo, Fernández, Galmes, Santillan and Cereghetti2016; Vizcaíno y Bargo Reference Vizcaíno and Bargo1993) y los huesos presentes en un armadillo promedio (ca. 190). De este modo, se contabilizó un elemento cada cinco placas para este taxón.
Los índices empleados para evaluar la composición de la dieta en términos faunísticos fueron: riqueza taxonómica, diversidad y equitatividad (evenness). La riqueza taxonómica (NTAXA) indica el número de categorías taxonómicas que han contribuido al conjunto faunístico, generalmente especies (Cruz-Uribe Reference Cruz-Uribe1988; Grayson Reference Grayson1984). La diversidad toma en cuenta tanto el número de taxones presentes (la variedad) como la frecuencia relativa de cada taxón (uniformidad). Los valores más elevados indican mayor diversidad, una mayor variedad de especies o una distribución más uniforme de las frecuencias relativas. Para calcularlo se empleó el índice de diversidad de Shannon (Cruz-Uribe Reference Cruz-Uribe1988; Grayson Reference Grayson1984; Mengoni Goñalons Reference Goñalons and Guillermo2010; Schimtt y Lupo Reference Schmitt and Lupo1995). El índice de equitatividad combina los índices anteriores y permite identificar si alguno de los taxones consumidos domina la muestra (Jones Reference Jones2004; Lyman Reference Lyman2008; Mengoni Goñalons Reference Goñalons and Guillermo2010; Reitz y Wing Reference Reitz and Wing2008). Siguiendo el criterio establecido por Zangrando (Reference Zangrando2009a), se considera que los conjuntos cuyo índice de equitatividad señale valores superiores a 0,5 estarían mostrando estrategias generalizadas de explotación de fauna, mientras que los conjuntos con valores menores a 0,5 estarían reflejando estrategias especializadas. Para calcular estos índices (NTAXA, Shannon y equitatividad) se utilizó el programa estadístico PAST (Hammer et al. Reference Hammer, Harper and Ryan2001).
Sobre el total de la fauna consumida también fueron estimadas las proporciones de artiodáctilos, p(Art.), de animales pequeños (cuyo peso no supera los 5 kg), p(AP), y la de peces, p(pe). Atendiendo a los criterios empleados en trabajos previos (Fernández Reference Fernández2012; Giardina Reference Giardina2010; Otaola et al. Reference Otaola, Wolverton, Giardina and Neme2015) se adoptó una actitud conservadora, considerando como fauna consumida aquella cuyos restos presentan evidencias de procesamiento humano—como señales de termoalteración o huellas de corte—o que representan taxones que se encuentran fuera del rango de dispersión habitual conocido para la especie. Asimismo, también se tuvieron en cuenta las características contextuales de los conjuntos y los conocimientos disponibles para el área.
Resultados
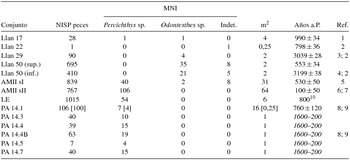
La Tabla 1 presenta los valores de NISP y MNI estimados para los conjuntos de peces analizados, distinguiendo para el último la asignación taxonómica de los individuos. Se añaden además las superficies muestreadas y los fechados asociados a cada caso, consignando las referencias correspondientes.
Conjuntos ictioarqueológicos analizados.

Notas: Ref. = Referencias. (1) Corbat et al. Reference Corbat, Zangrando, Gil, Salemme, Santiago, Alvarez, Piana, Vazquez and Mansur2009; (2) Giardina et al. Reference Giardina, Corbat, Otaola, Salgán, Ugan, Neme and Gil2014; (3) Corbat y Giardina Reference Corbat and Giardina2012; (4) Giardina et al. Reference Giardina, Neme and Gil2011; (5) Corbat et al. Reference Corbat, Cahiza, Llorca and Gil2015; (6) Cahiza Reference Cahiza2003; (7) García Llorca y Cahiza Reference García Llorca and Cahiza2007; (8) Chiavazza Reference Chiavazza2007; (9) Chiavazza Reference Chiavazza2013; (10) Edad en años a.P. estimada a partir de los datos calendáricos: las culturas Agrelo (600/1200 d.C.) y Viluco (1400/1700 d.C.) en conjunto fechan aproximadamente para 1400–200 a.P. En itálicas se indican los fechados relativos. Entre corchetes se discrimina la información proveniente de la excavación de PA 14.1.
En los nueve conjuntos zooarqueológicos de Guanacache se recuperaron 2916 especímenes de peces, que dieron cuenta de la presencia al menos de 280 individuos. En Llancanelo, por su parte, se estimó un NISP de 1224 y un MNI de 76 peces para los cinco conjuntos zooarqueológicos recuperados.
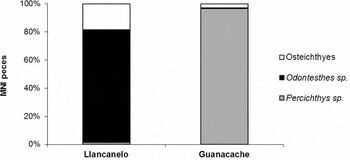
En lo que respecta a las especies de peces registradas, en Guanacache dominan ampliamente las percas y hay una mínima representación de los pejerreyes (Figura 2). En el humedal del sur, por su parte, sólo el registro de una perca impide hablar de un dominio exclusivo por parte de los pejerreyes.
Representación taxonómica de los individuos de peces registrados en Llancanelo y Guanacache.

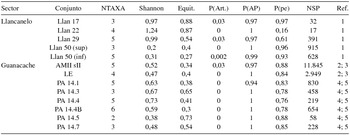
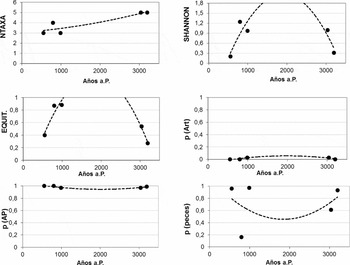
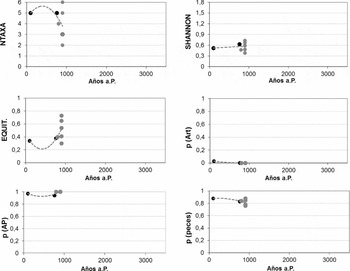
En relación con la antigüedad de este registro, los primeros restos de peces corresponden a conjuntos de Llancanelo (Llan 29 y Llan 50), con fechados de ca. 3000 años a.P., cuya vinculación con la conducta humana ha sido corroborada en trabajos previos (Corbat Reference Corbat2016; Corbat et al. Reference Corbat, Zangrando, Gil, Salemme, Santiago, Alvarez, Piana, Vazquez and Mansur2009). Los otros conjuntos con fechados absolutos se sitúan cronológicamente en el último milenio antes del presente. Las Figuras 3 y 4 grafican las tendencias en los índices escogidos para evaluar los cambios diacrónicos en la dieta a partir de los conjuntos de Llancanelo y Guanacache, respectivamente. Los valores estimados para cada índice en los distintos conjuntos se detallan en la Tabla 2.
Índices de abundancia y diversidad estimados y tamaño muestral (NSP) de los conjuntos analizados.

Notas: Equit. = Equitatividad. Ref. = Referencias. (1) Giardina et al. Reference Giardina, Corbat, Otaola, Salgán, Ugan, Neme and Gil2014; (2) Cahiza Reference Cahiza2003; (3) García Llorca y Cahiza Reference García Llorca and Cahiza2007; (4) Chiavazza Reference Chiavazza2007; (5) Chiavazza Reference Chiavazza2013.
La correlación entre la cantidad de especímenes recuperados (NISP) y la riqueza taxonómica de los conjuntos zooarqueológicos es baja y no significativa (r = 0,26; p > 0,05), por lo que se descarta que el tamaño de la muestra esté sesgando las interpretaciones efectuadas.
La información disponible para Llancanelo (Figura 3) refleja una disminución significativa en la riqueza taxonómica hacia los momentos más recientes (r = 0,91; p < 0,05) y una estabilidad en cuanto a la proporción de animales pequeños y artiodáctilos, que se mantienen con valores siempre elevados y siempre bajos, respectivamente. En relación con la diversidad y la equitatividad, la tendencia sugiere un incremento de estos índices hacia los 2000 años a.P., seguida por su descenso. En el caso de la equitatividad, no obstante, los valores para momentos más recientes se ubican próximos y por encima de los 0,5. La proporción de peces, por su parte, presenta valores moderados o altos en los conjuntos más antiguos y una situación variable luego de los 2000 años a.P.
Índices de abundancia y diversidad para los conjuntos de Llancanelo a través del tiempo.

En Guanacache sólo se cuenta con datos de buena resolución cronológica para conjuntos posteriores a los 1000 años a.P., de los cuales únicamente dos presentan fechados absolutos. Por lo tanto, se incluyeron aquellos con cronologías relativas basadas en estilos cerámicos, tomando el valor central del rango de fechados asignados para cada caso (Figura 4, en gris). Esta información señala una riqueza variable (de entre dos y seis taxones), valores de diversidad de bajos a moderados, proporciones de artiodáctilos prácticamente nulas y un dominio de los animales pequeños, entre los cuales los peces adquieren gran relevancia. La equitatividad, por su parte, presenta gran variabilidad, con poco más de la mitad de los casos (62,5 por ciento) por debajo de los 0,5.
Índices de abundancia y diversidad para los conjuntos de Guanacache a través del tiempo. Fechados relativos en gris.

Discusión
Acerca de la Anterioridad de la Pesca en Guanacache
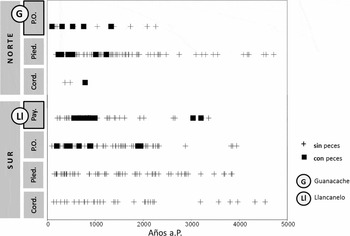
Una de las expectativas a evaluar sostenía que la explotación de peces debía registrarse primero en el humedal del norte (Guanacache) y luego en el sur (Llancanelo). No obstante, los registros de explotación de peces más antiguos se sitúan en Llancanelo. La Figura 5 permite poner en un contexto espacial y temporal más amplio estos y otros hallazgos de peces (Chiavazza Reference Chiavazza2007, Reference Chiavazza2013; Corbat Reference Corbat2016; Corbat et al. Reference Corbat, Zangrando, Gil, Salemme, Santiago, Alvarez, Piana, Vazquez and Mansur2009; Giardina et al. Reference Giardina, Corbat, Otaola, Salgán, Ugan, Neme and Gil2014; Neme et al. Reference Neme, Gil, Garvey, Llano, Zangrando, Franchetti, de Francesco and Michieli2011). En ella se presentan los fechados radiocarbónicos disponibles que se asocian a señales humanas con y sin evidencias de explotación de peces para los últimos 5000 años a.P., sobre la base de los datos publicados por Gil y colaboradores (Reference Gil, Giardina, Neme and Ugan2014). Estos son graficados por medio de cuadrados y cruces, respectivamente.
Fechados con y sin evidencia de explotación de peces para distintos sectores del centro-occidente argentino.

En esta escala, los restos de peces asociados a la explotación humana más antiguos en el centro-occidente argentino tienen cerca de 3.000 años de antigüedad y han sido recuperados en La Payunia, específicamente en Llancanelo, donde prácticamente coinciden con las primeras evidencias de ocupación humana. Unos 1.000 años después, se registran los primeros restos de peces en las Planicies Orientales del sur y posteriormente al norte del Diamante. Para el último milenio se observa este tipo de evidencia de forma más generalizada en todas las Planicies Orientales y La Payunia. Esta situación es compatible con una fase claramente establecida de uso efectivo de todos los ambientes para los últimos 1000 años a.P. (Neme et al. Reference Neme, Gil and Durán2005).
Las evidencias de explotación de peces relativamente tardías en esta región pueden explicarse a partir de una ocupación igualmente tardía del sector de las Planicies Orientales del norte y de las lagunas en particular (Chiavazza Reference Chiavazza2009). Las dataciones absolutas han arrojado como máximo fechados de 1400 años a.P. para la presencia humana en este sector de las Planicies Orientales del norte (Chiavazza Reference Chiavazza2009). Todos los sitios conocidos de sectores aledaños a Guanacache presentan un dominio de fauna pequeña, aunque no necesariamente de peces (Chiavazza Reference Chiavazza2007). El registro arqueológico en ambos lugares muestra amplia diversidad de tareas, aunque el registro de peces se limita a los humedales.
La explotación de los peces, según las dataciones disponibles, no habría ocurrido primero en el ámbito de mayor productividad relativa y con una asumida mayor presión poblacional regional (Guanacache), descartando por el momento una de las primeras expectativas de nuestra hipótesis.
Acerca de la Dieta Humana en los Diferentes Sectores y sus Cambios en el Tiempo
El escenario de Llancanelo para los momentos más recientes es el de una dieta relativamente generalizada, con baja importancia de los artiodáctilos (proporción menor o igual a 0,30) y elevada proporción de la fauna pequeña (mayor o igual a 0,97), dentro de la cual los peces adquieren un protagonismo variable, con proporciones entre 0,16 y 0,97. Estas pautas coincidirían con las expectativas para una dieta diversificada. Sin embargo, las representaciones relativas de estas faunas se mantienen prácticamente iguales tanto en los contextos más antiguos como en los más recientes, es decir que no reflejan un cambio significativo en la dieta. La disminución en la riqueza taxonómica, por su parte, si bien es en uno o dos taxones, claramente no muestra un incremento en este índice. El consumo de peces se mantiene relativamente elevado desde los 3000 años a.P. en algunos casos y decrece en otros (Figura 3). El caso que presenta una baja proporción de peces—modificando la tendencia general—corresponde al sitio del norte de Llancanelo con la menor disponibilidad de agua dulce, Llan 22. En definitiva, los peces en Llancanelo no han sido un recurso incorporado a la dieta en respuesta a la disminución en el aprovechamiento de los artiodáctilos y la variación en su consumo estaría reflejando más bien variaciones en la disponibilidad ambiental que cambios temporales en las estrategias de subsistencia.
La dieta en Guanacache presenta una estructura semejante en algunos puntos a la de Llancanelo para este mismo período (Figura 4), con pocos taxones (cuatro en promedio), prácticamente todos animales pequeños y casi nula importancia de los artiodáctilos. No obstante, se observa mayor variabilidad que en Llancanelo en cuanto a la importancia relativa en la explotación de cada taxón, aunque con un aporte más constante de los peces, que en todos los casos alcanzan proporciones elevadas (entre 0,76 y 0,88). La diversidad, por su parte, presenta valores en torno a 0,6, menos dispersos que en Llancanelo y por debajo del promedio para este otro humedal (0,8). En relación con éste, el escenario de Guanacache parecería reflejar una estrategia de mayor especialización, menos diversa y con aporte siempre elevado de los peces, aunque los valores de equitatividad no se ajustan. Si bien los conjuntos tienden a valores menos equitativos hacia momentos más recientes, esta tendencia es muy tenue y los valores para este índice abarcan un amplio rango (entre 0,3 y 0,73). Además, casi la mitad de ellos serían compatibles con una estrategia generalizada, descartando así para el sector de Guanacache que un recurso en particular (los peces) esté dominando las muestras, aún cuando se presenta en elevadas proporciones.
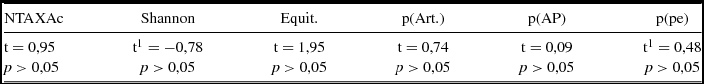
Finalmente, la comparación entre los conjuntos posteriores al 2000 a.P. de Guanacache y los de Llancanelo para este mismo período no arrojó diferencias significativas en ninguno de los índices (Tabla 3).
Prueba t para distintos índices entre los valores de Llancanelo posteriores al 2000 a.P. y los de Guanacache.

Nota: Equit. = Equitatividad. (1) Prueba de t de varianzas desiguales.
Acerca de la Importancia de los Peces en Cada Humedal
Un primer elemento para evaluar el rol de los peces en cada contexto luego de los 2000 años a.P. es la proporción de peces estimada en los conjuntos zooarqueológicos de cada caso (Tabla 2). Si excluimos el contexto atípico de Llan 22, la media para este índice es significativamente mayor en Llancanelo que en Guanacache, con valores de 0,97 y 0,83 respectivamente (t = 4,05; p < 0,05), aunque los valores son igualmente elevados.
Un segundo parámetro para evaluar la contribución de los peces en cada sector es la cantidad de peces capturados en cada caso. En este sentido, el MNI de peces para el sector de Guanacache es casi cuatro veces más grande que el de Llancanelo (Tabla 1), aunque si consideramos la superficie excavada, este predominio se invierte (7,41 y 2,61 peces por m2 para Llancanelo y Guanacache, respectivamente). Por otro lado, la especie más representada en Guanacache, Percichthys sp., llega a triplicar en peso a la más frecuente en Llancanelo, Odontesthes sp.
En ambas lagunas, las especies representadas arqueológicamente son las mismas —Percichthys sp. y Odontesthes sp.—aunque en proporciones opuestas. De este modo, y partiendo de que comparten la misma caracterización ictiogeográfica, no hay elementos para sostener que la diferencia en las especies representadas responde a cuestiones biogeográficas. La perca constituye una de las especies que en el registro etnohistórico se menciona como explotada en Guanacache (Mac Donagh Reference Donagh and Emiliano1950; Rusconi Reference Rusconi1961; Villanueva y Roig Reference Villanueva and Roig1995). Dado su hábitat pelágico, la explotación de la perca puede estar reflejando el empleo de tecnología de pesca más elaborada, como las balsas registradas etnohistóricamente (Rusconi Reference Rusconi1961). El pejerrey, por su parte, es accesible desde el litoral y parece requerir una técnica de captura más sencilla. En este sentido, diferentes estrategias de captura podrían explicar la explotación preferencial de distintas especies de peces en ambos humedales. No obstante, la información disponible sobre la abundancia diferencial de estas especies en Guanacache y Llancanelo nos lleva a proponer que en cada sector se estaría seleccionando la especie localmente más abundante. En el material complementario se incluyen algunas consideraciones acerca de la ausencia en el registro zooarqueológico de otras especies de peces potencialmente disponibles en estos ambientes (Texto complementario 1).
Conclusiones
La integración de la información arqueológica acerca del registro de peces permitió evaluar la relevancia de este recurso en los humedales del norte (Guanacache) y del sur (Llancanelo) del centro-occidente argentino. Los fechados para estos conjuntos, aún situados en un contexto espacial y temporal más amplio, llevaron a corroborar que la explotación de peces más antigua (ca. 3000 años a.P.) se registra en el humedal del sur y es contemporánea con las primeras evidencias de ocupación de este ambiente. El registro de peces de Guanacache, por su parte, es posterior al de otros contextos con agua del sur de Mendoza. Las tendencias temporales en los distintos índices analizados no muestran procesos de intensificación diferentes en ambos sectores. En los dos casos, la proporción de artiodáctilos es mínima y la de animales pequeños domina las muestras en toda la secuencia con registro, siendo los peces el recurso más significativo.
Con pocos cambios en la cantidad de taxones consumidos y en las frecuencias relativas de su explotación, no hay bases para sostener una diversificación en la dieta en Llancanelo, al menos para los últimos 3000 años. Del mismo modo, tampoco puede postularse la incorporación de los peces, ni el incremento en su representación, para momentos posteriores al 2000 a.P., ni una declinación en la explotación de los artiodáctilos. En definitiva, los peces en Llancanelo no fueron un recurso incorporado a la dieta en respuesta a la disminución en el aprovechamiento de los artiodáctilos. La variación en su consumo refleja más bien variaciones en la disponibilidad ambiental que cambios temporales en las estrategias de subsistencia.
Dado que se carece de información para momentos anteriores a los 2000 años a.P. en el sector de Guanacache, en esta escala de análisis no puede evaluarse si efectivamente ocurrió un cambio en la subsistencia y en qué sentido se habría dado dicho proceso. Como fue esbozado anteriormente, esta ausencia de información es explicada por una ocupación tardía de estos ambientes. No obstante, desde los primeros registros humanos en Guanacache, la subsistencia estuvo basada fuertemente en la explotación de los peces y fue complementada con el aprovechamiento de otra fauna pequeña.
En ambos casos, la explotación de peces parece haber sido una estrategia que acompañó los primeros momentos de ocupación de las lagunas, con lo cual representa más bien un aprovechamiento de los recursos disponibles localmente que cambios diacrónicos en la subsistencia. Esta mirada coincide con lo explorado a partir de otras líneas de evidencia arqueofaunística (Fernández Reference Fernández2012; Giardina Reference Giardina2010; Otaola Reference Otaola2012). El proceso de ocupación en sí puede ser entendido en términos de ampliación del rango de aprovisionamiento y de la ocupación de áreas marginales, entendiendo estas últimas no tanto en relación con sus áreas inmediatas—dentro de las cuales se destacan por la presencia de agua—sino con otras unidades más productivas como el piedemonte (Neme y Gil Reference Neme and Gil2008a).
Los peces han demostrado ser el recurso más significativo tanto en Guanacache como en Llancanelo, donde su consumo ha sido complementado con el de otra fauna pequeña.
Agradecimientos
Este trabajo se enmarca en el Proyecto de Investigación Científica y Tecnológica (PICT) 2012-1015 y fue financiado parcialmente por el Consejo Nacional de Investigaciones Científicas y Técnicas (CONICET). Agradecemos la colaboración de quienes participaron de los trabajos de campo; a Gustavo Neme, por su lectura crítica y sus valiosos aportes; a Pablo Cahiza y Jorge García Llorca, que gentilmente pusieron a nuestra disposición los materiales ictioarqueológicos recuperados en sus campañas; y a los evaluadores, que permitieron enriquecer el trabajo con sus aportes críticos. Los autores declaramos que no existen conflictos de interés y que no requerimos de permisos para este trabajo.
Declaración de Disponibilidad de Datos
Los datos físicos y digitales sobre los cuales se basa la investigación se encuentran disponibles en el Museo de Historia Natural de San Rafael, en el Instituto de Ciencias Humanas, Sociales y Ambientales del CIC Mendoza y en el Laboratorio de Arqueología Histórica y Etnohistoria (56) del Instituto de Arqueología y Etnología, Facultad de Filosofía y Letras, Universidad Nacional de Cuyo. Para consultarlos, pueden contactarse con cualquiera de los autores.
Materiales Complementarios
Los materiales complementarios están vinculados a la versión digital de este artículo y son accesibles a https://doi.org/10.1017/laq.2017.21. Estos incluyen los siguientes archivos:
Tabla suplementaria. 1 NISP de los distintos taxones registrados en conjuntos de Guanacache y Llancanelo
Texto suplementario 1. Consideraciones sobre la ausencia de registro de algunas especies.