Introduction
Les volailles locales représentent une activité primordiale en zone rurale pour l'obtention d'un revenu à travers la vente d'œufs et d'oiseaux. Au Cameroun, les populations de poules locales, de faible productivité, représentent 70% du cheptel avicole. Les souches sélectionnées de poulet constituent 24% du cheptel avicole, alors que les autres espèces de volailles représentent 6% (Fotsa et al., Reference Fotsa, Bordas, Rognon, Tixier-Boichard, Poné Kamdem and Manjeli2007a). L'effectif des populations de poules locales est passé de 13 millions en 1990 à plus de 35 millions en 2001 (Ngou Ngoupayou, Reference Ngou Ngoupayou1990; INS-Cameroun, 2001). D'après Ngou Ngoupayou (Reference Ngou Ngoupayou1990) et Agbédé et al. (Reference Agbédé, Téguia and Manjeli1995), le cheptel national avicole local est tenu par les petites exploitations rurales ayant chacune un effectif moyen de 10 à 13 poulets. La production de la population de poules locales correspond à environ 50% des produits avicoles du pays (Poné, Reference Poné1998; Teleu Ngandeu et Ngatchou, Reference Teleu Ngandeu and Ngatchou2006), la consommation annuelle totale par habitant représentant 1,8 kg à 3,6 kg de viande et 20 œufs. La poule locale joue un rôle important sur la vie socioculturelle pour des cérémonies de mariage, le rejet de la malédiction, la pharmacopée traditionnelle et le maintien de la cohésion sociale au sein des communautés traditionnelles à travers des dons et la réception des visiteurs de marque (Guèye, Reference Guèye1998; Fotsa et al., Reference Fotsa, Rognon, Tixier-Boichard, Ngou Ngoupayou, Poné Kamdem, Manjeli and Bordas2007c). L'élevage de la poule locale demande très peu d'investissement et est une activité économique pour environ 1,6 millions de familles rurales de huit personnes (Poné, Reference Poné1998). Malgré son importance numérique, la caractérisation phénotypique et génétique de cette population avicole traditionnelle n'a pas été faite de manière systématique dans les différentes zones agroécologiques. Cette étude a pour objectif d'approfondir la connaissance de la diversité génétique des poules locales dans la zone de forêt dense. A plus long terme, cette connaissance devrait contribuer à la lutte contre la pauvreté grâce à une gestion et une valorisation appropriées des ressources génétiques avicoles présentes (Fotsa et al., Reference Fotsa, Pone, Manjeli and Ngou Ngoupayou2007b).
Matériels et méthodes
Caractéristiques de la zone d'étude
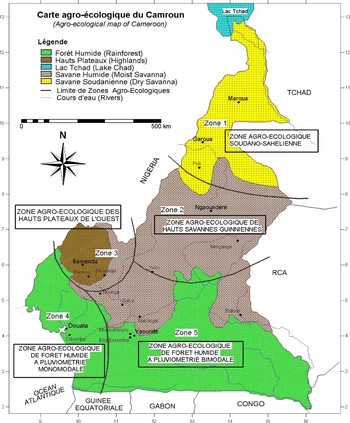
Le périmètre géographique étudié est une zone de forêt dense humide à pluviométrie bimodale (Ambassa-Kiki, Reference Ambassa-Kiki2000) qui couvre les Provinces du Centre, du Sud et de l'Est et représente 47% du territoire national. Elle s'étend sur la majeure partie du plateau sud camerounais entre 500 et 1 000 m d'altitude (Figure 1). Deux saisons de pluies intercalent les deux saisons sèches dont la première va de mi-juin à août et la deuxième de mi-novembre à mi-mars. La température moyenne est de 23 °C. En saison des pluies, elle varie de 18 à 28 °C et de 16 à 31 °C en saison sèche. L'humidité relative est comprise entre 80 à 85% d'avril à novembre et de 70 à 80% pour le reste de l'année. Cette forte humidité relative est génératrice de rosée pendant les saisons sèches. Les précipitations moyennes annuelles sont de 1 600 mm avec les valeurs extrêmes allant de 1 500 à 2 000 mm. Les systèmes d'élevage les plus répandus sont les élevages traditionnels avicoles, ovins, caprins, et porcins. Cependant autour de Yaoundé, la capitale, les élevages semi-intensifs et intensifs se développent.
Présentation de la zone de forêt dense humide à pluviométrie bimodale du Cameroun (Source: Ambassa-Kiki, Reference Ambassa-Kiki2000).

Dispositions générales
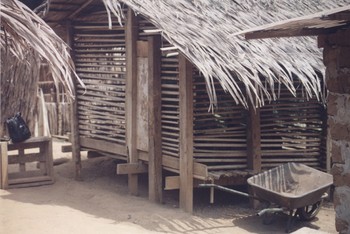
De décembre 2003 à Mars 2004, une enquête a été menée dans l6 départements des Provinces du Centre (sauf le Mfoundi qui est la ville de Yaoundé) du Sud (sauf l'Océan qui est dans la zone monomodale) et de l'Est. A l'intérieur de chaque département, 3 villages ont été choisis par les Agents Vulgarisateurs de Zones (AVZ) sur les critères suivants: éloignement suffisant pour limiter les échanges d'animaux, présence d'élevages familiaux de taille suffisante. Deux éleveurs par village ayant chacun au moment de l'enquête un effectif d'au moins sept sujets adultes en âge de se reproduire ont été choisis par les AVZ et interviewés par le même enquêteur suivant un questionnaire rédigé en français et traduit oralement en langue locale si nécessaire. Les femmes ont été interviewées en présence de leur époux. Les informations recherchées portaient d'une part sur le contexte socioéconomique (Fotsa et al., Reference Fotsa, Rognon, Tixier-Boichard, Ngou Ngoupayou, Poné Kamdem, Manjeli and Bordas2007c) et d'autre part sur l'élevage des poules avec relevé des performances de production et de reproduction. L'entretien se terminait par la visite des abris utilisés (Figure 2), la pesée, la description et la photographie individuelle des oiseaux, qui avaient été rassemblés par l'éleveur en prévision de la visite de l'enquêteur. Sur un effectif total de 751 sujets décrits, 94 coqs et 333 poules provenaient de la Province du Centre, 42 coqs et 92 poules du Sud et 49 mâles et 141 femelles de l'Est. Toutes les mesures descriptives et quantitatives ont été prises par le même enquêteur.
Poulailler de poules traditionnelles dans le Mbam et Kim (Province du Centre).

Mesures
Chaque sujet a fait l'objet d'une description directe portant sur les caractères phanéroptiques notamment la couleur du barbillon, du lobe auriculaire, de la peau, du tarse et des yeux selon la nomenclature décrite par Coquerelle (Reference Coquerelle2000). Chaque oiseau était photographié afin de réaliser la description précise du plumage en cohérence avec les travaux de Somes (Reference Somes and Crawford1990), Smyth (Reference Smyth and Crawford1990) et Coquerelle (Reference Coquerelle2000). Sur les 751 animaux observés, 455 ont une photographie interprétable.
Les pesées des œufs par lot de 5 à 10 œufs ainsi que les poids des animaux et les mesures du tarse et des appendices étaient effectuées respectivement avec un peson de 5 kg, un pied à coulisse en fibre de verre à cadran au 1/10 de 15 cm, et une règle graduée. Le nombre d'oeufs et les performances de reproduction étaient obtenus à partir des déclarations des éleveurs.
Analyses statistiques des données
Les analyses statistiques descriptives (fréquence moyenne, écart-type) concernant les données qualitatives, comme la couleur de la coquille, ont été faites avec le logiciel SPSS/PC (1996).
Les coefficients de variation ont été calculés par sexe et par province, par le rapport de l'écart type phénotypique à la moyenne phénotypique.
Les données quantitatives (poids corporel, longueur du tarse, diamètre du tarse et longueur du barbillon) ont été soumises à l'analyse de variance portant sur les facteurs Province et sexe à l'aide de la procédure GLM du logiciel SAS (2001). Le modèle est ci-dessous décrit:
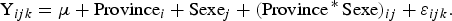
µ = moyenne générale de la population
Pi = effets dus aux Provinces (Centre, Sud et Est)
Sj = effets dus au sexe (mâle et femelle)
PSij = effets de l'interaction de premier ordre (Province * Sexe)
ɛ ijk. = erreur résiduelle de variance σ 2 et de moyenne nulle
La comparaison des moyennes a été faite par un test t appliqué à chaque paire de moyennes des moindres carrés selon l'option PDIFF de la procédure GLM.
Les données recueillies sur déclaration n'ont pas été soumises à l'analyse de variance, en raison de l'importance des facteurs de variation non identifiables.
Les fréquences alléliques de quelques mutations selon qu'elles étaient autosomales ou liées au sexe ont été calculées d'après les formules décrites par Minvielle (Reference Minvielle1990) en supposant ces populations en équilibre de Hardy-Weinberg. Pour les gènes de coloration, les fréquences phénotypiques ont été comparées par le test de Khi-deux d'homogénéité entre provinces.
Résultats
Performances zootechniques
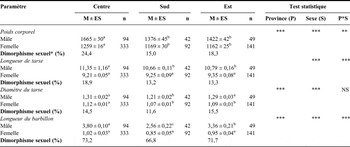
Poids et mesures corporelles. Sur l'ensemble des provinces étudiées, le poids moyen des coqs est de 1 535 g avec un écart-type de 403 g et celui des poules est de 1 220 g avec un écart-type de 258 g. Le coefficient de variation du poids adulte est plus élevé chez les mâles des provinces du Centre et de l'Est (26 à 27%), mais il est nettement plus faible (12,5%) chez les mâles de la province du Sud. Chez les femelles, le coefficient de variation du poids varie de 14% dans la province du Sud, à 18% dans la province de l'Est et 22% dans la province du Centre. La longueur du tarse montre un coefficient de variation plus faible, de 6% à 10% selon le sexe et la province, et le diamètre du tarse montre un coefficient de variation assez modéré chez les femelles (9% à 11%) et un peu plus élevé chez les coqs (9,5% à 18%). L'analyse de variance ressort un effet très significatif de la province et du sexe pour tous les caractères étudiés, avec une interaction significative entre sexe et province pour tous les caractères sauf le diamètre du tarse (Tableau 1). Les résultats montrent que les animaux du Centre sont plus lourds que ceux de l'Est et du Sud qui ne diffèrent pas entre eux, quelque soit le sexe. Les longueurs de tarse ne diffèrent pas significativement entre provinces chez les femelles alors que les mâles de la province du Centre ont des tarses plus longs que ceux des provinces du Sud et de l'Est. En revanche, il y a un effet de la province sur le diamètre du tarse chez les femelles comme chez les mâles. Les longueurs de barbillons chez les femelles sont très faibles et ne diffèrent pas entre Provinces alors que, chez les mâles, il y a des différences hautement significatives entre provinces d'où l'interaction Province*Sexe observée. Le dimorphisme sexuel, défini par l'écart entre sexes rapporté à la moyenne des mâles, est plus grand chez les animaux du Centre pour le poids et la longueur du tarse mais pas pour le diamètre du tarse ni pour la longueur des barbillons Tableau 1).
Résultats d'analyse de variance pour les poids corporels et les mesures anatomiques: moyennes des moindres carrés avec leur erreur standard par sexe et par province des poules traditionnelles de la zone forestière humide à pluviométrie bimodale du Cameroun.

*** P < 0,001; ** P < 0,01; * P < 0,05; NS P > 0,05; M ± E S: Moyenne ± Erreur Standard.
*: le dimorphisme sexuel est calculé par le rapport de l'écart entre les moyennes par sexe à la moyenne des femelles.
a, b: pour le même paramètre et pour le même sexe, les valeurs portant en exposant les mêmes lettres ne diffèrent pas significativement (P > 0,05).
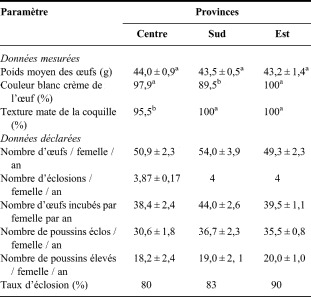
Ponte et caractéristiques des œufs. Les productions annuelles par femelle annoncées par les éleveurs sont de 51 œufs au Centre, 54 œufs au Sud et 49 œufs à l'Est réparties en moyenne sur 4 couvées soit environ 13 œufs par couvée dans toute la zone forestière (Tableau 2). Les œufs produits sont utilisés pour la reproduction à 79,1%. Le taux moyen d'éclosion à partir des chiffres annoncés est de 79,7% au Centre, 83,3% au Sud et 89,9% à l'Est. Par poule, le nombre moyen de poussins élevés annuellement est de 19. Le poids moyen des œufs mesurés chez 60 éleveurs parmi les 96 visités est d'environ 44 grammes et ne diffère pas en fonction de la Province. Il n'existe que deux modalités pour la couleur de la coquille : elle est le plus souvent blanc crème et plus rarement brune. Le taux d'œufs bruns est plus élevé dans la province Sud. La texture des œufs est mate à 100% au Sud et à l'Est tandis qu'au Centre, certains œufs ont une texture brillante (4,6%).
Performances de ponte et de reproduction des poules locales de la zone forestière humide à pluviométrie bimodale.

* a,b: Pour la même variable, les valeurs portant en exposant les mêmes lettres ne diffèrent pas significativement (P > 0,05).
Description phénotypique
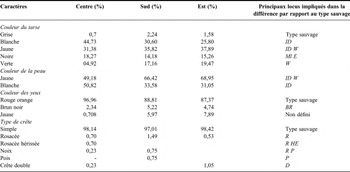
La description phénotypique ainsi que l'interprétation génétique des caractères de coloration et de morphologie observés chez les poules locales sont consignées dans les tableaux 3 et 4. Pour chaque caractère observé, on indique d'abord la fréquence du phénotype sauvage, puis les variations observées sont présentées avec le nom du locus contrôlant cette variation. On observe ainsi des couleurs variées pour le tarse. Les sujets ayant de la mélanine dans le derme (locus ID) représentent 12,3% de la population totale. Il peut s'agir d'animaux à patte grise représentant le type sauvage (1,2%) ou à patte verte (10,8%), dans ce cas le locus W ‘peau jaune’ est également impliqué. Les pourcentages d'animaux à patte blanche (37,4%) ou jaune (33,8%) sont assez importants et la couleur noire du tarse est observée pour 17% de la population. La fréquence des animaux à tarse jaune apparaît plus faible que celle des animaux à peau jaune car il est possible que la présence de la mutation ‘peau jaune’ (locus W) soit mal détectée chez les animaux ayant des tarses noirs et porteurs de mutations eumélaniques aux locus E (extension du noir) et ML (mélanotique). L'examen visuel de la peau du corps a permis d'identifier des animaux à peau blanche ou à peau jaune en proportions égales dans la Province du Centre, mais les Provinces du Sud et de l'Est montrent une plus forte proportion d'oiseaux à peau jaune respectivement dans 66,4% et 69% de cas. Dans l'ensemble des provinces, la couleur rouge orangé des yeux est prédominante à 93% contre des proportions identiques de 3,5% pour les couleurs brun noir ou jaune. Les crêtes observées sont de type simple à 98%, le restant se partage entre les crêtes de type rosacé (locus R) et pois (locus P). Il est observé toutefois chez certaines poules, l'absence de crêtes avec quelques protubérances et la présence de la crête double (locus D) chez un certain nombre de coqs.
Examen des poules locales par phénotypes impliquant plusieurs locus dans la zone forestière humide à pluviométrie bimodale du Cameroun.

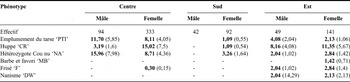
Fréquences phénotypiques et alléliques1 des gènes à effets visibles examinés lors de l'enquête dans la zone forestière humide à pluviométrie bimodale du Cameroun.

1 : les valeurs entre les parenthèses représentent les fréquences alléliques alors que les valeurs en gras représentent les fréquences phénotypiques.
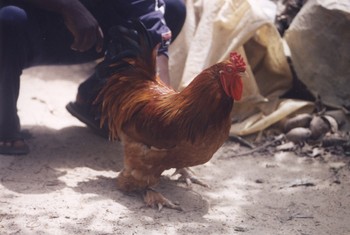
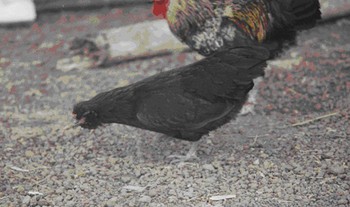
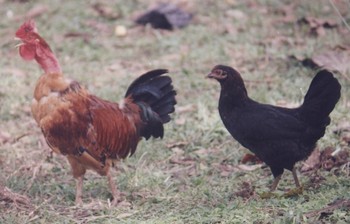
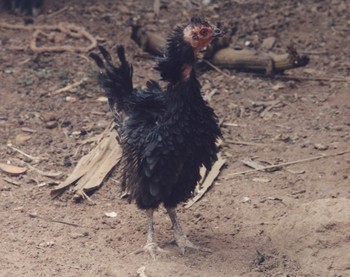
Par ailleurs, on trouve des phénotypes (Figures 3 à 5) ‘tarses emplumés’ (locus PTI), ‘huppé’ (locus CR) et ‘cou nu’ (locus NA) dans la province du Centre avec des fréquences de l'ordre de 9 à 12% pour l'ensemble des deux sexes (Tableau 4). Le phénotype ‘huppé’ est également présent dans la province de l'Est mais il est rare dans la province du Sud. Les phénotypes ‘tarses emplumés’ et ‘cou nu’ sont bien plus rares dans les provinces du Sud et de l'Est que dans celle du Centre et correspondent à des fréquences alléliques très faibles.
Coq à tarse emplumé (gène PTI) crête en rose hérissée (gènes R et HE)) et botte de vautour (gène vh) dans le Nyong et Kellé (Province du Centre).

Une poule huppée (gène CR) naine (gène DW) avec barbe et favori (gène MB) dans la Province de l'Est.

Coq hétérozygote pour la mutation ‘cou nu’ au locus NA, ayant un plumage doré (allèle sauvage au locus S) et une poule au plumage tout noir (allèle noir étendu au locus E) en divagation dans la Province du Sud.

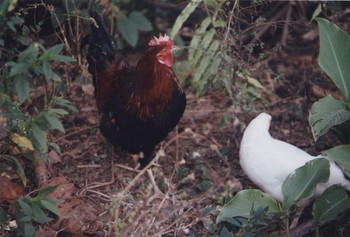
D'autres phénotypes tels que ‘barbe et favoris’ (locus MB) ‘nanisme’ (locus DW) et ‘frisé’ (locus F) sont observés à l'Est avec des fréquences phénotypiques faibles (Figures 4 et 7), le phénotype frisé a été trouvé à une très faible fréquence dans la Province du Centre. Les fréquences alléliques correspondantes pour ce gène ‘frisé’ (F) sont de 0,15% dans le Centre et de 1,4% à l'Est. Par ailleurs on trouve une proportion assez importante de poules ergotées (16,31%) dans la population de poules de la Province de l'Est comparée à celle des autres provinces.
Coq au plumage noir cuivré (locus E allèle ER) et une poule au plumage blanc récessif (locus C) dans la Province de l'Est.

Poule homozygote frisée (locus F) au plumage tout noir (locus E) dans la Province de l'Est.

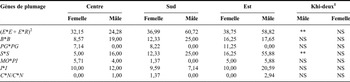
L'analyse des photographies prises sur 455 poulets locaux a permis d'identifier les principaux gènes de coloration du plumage (Figure 6) tels que décrits et présentés dans le Tableau 5. Il ressort qu'il n'existe pas de différences significatives pour les locus identifiés entre les provinces chez les femelles. Chez les mâles par contre, les oiseaux des provinces de l'Est et du Sud se distinguent aux locus E et S avec des fréquences plus élevées des phénotypes foncés ou argentés par rapport à ceux du Centre (Figure 6).
Fréquences phénotypiques (%) pour les principaux gènes du plumage observés sur les photos de 455 poules locales (Gallus gallus) des forêts humides à pluviométrie bimodale du Cameroun.

1: ddl = 2; ** p < 0,01; NS P > 0,05; 2 Phénotypes eumélaniques.
Choix des reproducteurs dans les élevages
Les éleveurs déclarent ne pas introduire d'animaux commerciaux dans leurs élevages. Lorsque l'éleveur souhaite renouveler ses reproducteurs, il le fait le plus souvent en utilisant des animaux provenant d'un autre village. A l'Est et au Sud, 88% et 79% des éleveurs introduisent des animaux venant de villages voisins tandis que dans le Centre l'introduction d'animaux et l'utilisation à l'intérieur d'un même village sont des pratiques d'importance équivalente (56% et 44% respectivement). Les éleveurs déclarent tenir compte des caractères des parents pour choisir, dans leur troupeau, les poussins qu'ils vont garder comme futur reproducteur. Parmi les éleveurs interrogés, plus de 90% des éleveurs du Centre et du Sud préfèrent les caractères ‘ponte et poids corporel’ et le restant se répartissant entre ‘poids corporel' et ‘phénotype’. A l'Est, les critères portent beaucoup plus sur le ‘phénotype’, par rapport aux caractères ‘ponte et le poids’ et le ‘poids corporel’ respectivement dans 60%, 25% et 15% des cas.
Discussion
Analyse zootechnique comparative
Les comparaisons sont faites avec des études publiées sur des populations locales dans d'autres pays africains ou voisins de l'Afrique. Même si ces études peuvent différer par les effectifs mesurés, la stratégie d'échantillonnage et les conditions de milieu, elles constituent un référentiel pour l'analyse des présents résultats.
Poids et mesures corporelles. Les poids adultes des coqs et poules observés dans la zone d'étude ont des valeurs un peu plus faibles par rapport à celles observées chez la poule (1,3 – 1,8 kg) et jusqu'à 2,5 kg chez le coq dans une étude antérieure réalisée au Cameroun (Ngou Ngoupayou, Reference Ngou Ngoupayou1990). La supériorité des poids et de l'épaisseur du tarse des oiseaux de la province du Centre par rapport à ceux des autres provinces peut être due à l'amélioration de la technique d'élevage, avec notamment l'utilisation de compléments alimentaires. De plus, cette province est plus exposée que les autres aux introductions de diverses souches améliorées venant des élevages industriels (INS-Cameroun, 2001). La possibilité de croisements non contrôlés entre les deux populations (locale et sélectionnée) ne peut être totalement exclue, et une étude moléculaire pourrait aider à mettre en évidence ce type d'introgressions. Une étude comparable réalisée chez 65 éleveurs des hauts plateaux de l'Ouest du Cameroun donne des valeurs de poids corporels très similaires à celles trouvées dans la province du Centre (Keambou, Reference Keambou2006). Les provinces du Centre et de l'Ouest sont limitrophes, la Provinces de l'Ouest comporte une forte implantation d'élevages commerciaux, et la possibilité de croisements non contrôlés ne peut être exclue. Cependant, les mesures corporelles réalisées sur les animaux de l'Ouest par Keambou (Reference Keambou2006) montrent que les tarses sont plus courts (6,4 cm chez les poules et 7,8 cm chez les coqs) mais plus épais (1,27 cm chez les poules et 1,55 cm chez les coqs) que chez les animaux de la zone forestière humide. Une étude antérieure réalisée dans les hauts plateaux de l'Ouest avait déjà révélé que les poules locales avaient des tarses courts dans cette région, de l'ordre de 9,2 cm pour les mâles et de 7,6 cm pour les poules (Fotsa et Poné, Reference Fotsa and Poné2001). Même si la technique de mesure peut varier entre les différentes études, il semble bien que les poules locales des hauts plateaux de l'Ouest soient plus trapues. L'éventualité d'une introduction de la mutation ‘nanisme’ (DW*N) en provenance d'animaux commerciaux ne peut être totalement écartée dans cette région ; un test moléculaire permettrait de diagnostiquer la présence de cette mutation.
Le dimorphisme sexuel pour le poids corporel et la longueur du tarse est relativement plus important chez les animaux de la province du Centre que chez ceux du Sud et de l'Est, ce qui explique probablement l'interaction Sexe * Province observée.
Les poids adultes des coqs et poules observés dans la zone d'étude sont supérieurs à ceux qui sont observés, dans des conditions d'élevage en divagation, au Sénégal (Missohou et al., Reference Missohou, Sow and Ngwe-Assoumou1998). D'une manière générale, les coefficients de variation du poids corporel trouvés dans cette étude sont importantes et sont de 17,19% (Centre); de 21,19 (Sud) et de 20,68% (Est) chez les mâles et de 23,19% (Centre), de 24,62% (Sud) et de 25,55% (Est) chez les femelles mais elles sont comparables à ce qui a pu être trouvé dans d'autres études (Al-Rawi et Al-Athari, Reference Al-Rawi and et-Athari2002). Il est par ailleurs observé que les performances pondérales des animaux de cette zone d'étude sont supérieures à celles des poulets rapportées en Afrique du Sud (van Marle-Köster et Casey, Reference Van Marle-Köster and Casey2001) et inférieures à celles du poulet « Black Maltese » à Malte (Mallia, Reference Mallia1998).
En ce qui concerne la longueur du tarse, les valeurs observées dans la présente étude sont supérieures à celles obtenues, d'une part, chez la poule locale au Sénégal par Missohou (Reference Missohou, Sow and Ngwe-Assoumou1998) et d'autre part, inférieures aux valeurs obtenues chez les poules locales de Tanzanie par Msoffe et al. (Reference Msoffe, Minga, Olsen, Yongolo, Juul-Madsen, Gwakisa and Mtambo2001) à l'exception de l'écotype Ching'Wekwe. Le développement des barbillons chez le coq est toujours prononcé alors que chez la poule ils sont peu ou pas développés, ce qui différencie ces populations d'une race locale de type méditerranéen comme la Black Maltese, où les barbillons sont beaucoup plus développés pour chaque sexe (Mallia, Reference Mallia1998). Les différences de longueur de barbillons sont susceptibles de refléter l'adaptation climatique, car le barbillon est une zone d'échanges de chaleur importante qui joue un rôle dans la thermorégulation.
Ponte et reproduction. Les valeurs moyennes du nombre d'œufs par couvée et le nombre de couvées annuelles observées dans la zone de forêt permettent une production moyenne annuelle d'œufs comparable à celle rapportée dans la Provinces de l'Ouest au Cameroun (Tchoumboué et al., Reference Tchoumboué, Manjeli, Téguia and Ewane2000), mais légèrement supérieure à celle rapportée au Sénégal (Missohou et al., Reference Missohou, Sow and Ngwe-Assoumou1998). Une étude réalisée au Maroc indique une production totale annuelle de 78 œufs, légèrement supérieure à ce qui est observé ici (Benabdeljelil et Arfaoui, Reference Benabdeljelil and Arfaoui2001). De manière générale, la production annuelle rapportée dans la littérature pour les poules locales varie entre 25 et 150 œufs; le résultat obtenu dans cette enquête se situe plutôt parmi les valeurs faibles de cette gamme de variation. Le poids des œufs trouvé au cours de notre étude est comparable à celui signalé par Tchoumboué et al. (Reference Tchoumboué, Manjeli, Téguia and Ewane2000) dans les hauts plateaux de l'Ouest et par Shanawany et Banerjee (Reference Shanawany and Banerjee1991) pour certains génotypes Tikur et Gebsima éthiopiens. Cette valeur est intermédiaire entre celles des poids des œufs de la poule Fayoumi et de la Dandarawi d'Egypte qui sont respectivement de 42 et de 48 g (Guèye, Reference Guèye1998). Certains poids (31,7 g) inférieurs à ceux de cette étude ont été trouvés au Sénégal (Missohou et al., Reference Missohou, Sow and Ngwe-Assoumou1998) alors que chez la poule locale iraqienne les valeurs variaient entre 52,5 à 54,9 g (Al-Rawi et Al-Athari, Reference Al-Rawi and et-Athari2002). Les différences de performances relevées par de nombreux auteurs peuvent être dues soit à l'âge des oiseaux, soit à la variabilité génétique de poules locales soumises longtemps à la sélection naturelle, soit au système d'élevage notamment à l'alimentation, et à la gestion quotidienne des élevages, soit à l'effet combiné de tous ces facteurs (Fotsa et Poné, Reference Fotsa and Poné2001; Sarkar et Bell, Reference Sarkar and Bell2006; Fotsa et al., Reference Fotsa, Bordas, Rognon, Tixier-Boichard, Poné Kamdem and Manjeli2007a).
La couleur de la coquille majoritairement observée est le blanc crème, de même qu'au Sénégal (Missohou et al., Reference Missohou, Sow and Ngwe-Assoumou1998), en Afrique du Sud (van Marle-Köster et Casey, Reference Van Marle-Köster and Casey2001) et en Tanzanie (Msoffe et al., Reference Msoffe, Minga, Olsen, Yongolo, Juul-Madsen, Gwakisa and Mtambo2001). Cette couleur est caractéristique des œufs des poules locales et, associée à sa texture à prédominance mate, marque une différence nette avec les œufs des souches exotiques et des autres espèces. Le déterminisme génétique de ce type de coloration de la coquille n'est pas encore élucidé.
En ce qui concerne les Provinces du Centre et du Sud, le taux d'éclosion est similaire à ce qui a été rapporté par Tchoumboué et al. (Reference Tchoumboué, Manjeli, Téguia and Ewane2000) pour l'Ouest du Cameroun, mais la Province de l'Est présente un taux d'éclosion supérieur. La comparaison avec les résultats publiés pour d'autres pays est difficile en raison du nombre important de facteurs de variation de ce caractère (le taux de fertilisation, les conditions de stockage des oeufs, le poids des œufs et l'aptitude de la poule à couver). Les valeurs moyennes publiées varient le plus souvent entre 60 et 90% pour les populations de poules locales en Afrique (Guèye, Reference Guèye1998).
Analyse de la variabilité phanéroptique
Les caractéristiques physiques et qualitatives observées révèlent une multiplicité de coloration du tarse, de la peau et du plumage. Ces résultats concordent avec ceux antérieurement obtenus dans le Nord-ouest Camerounais (Fotsa et Poné, Reference Fotsa and Poné2001) et dans d'autres pays africains et du Moyen Orient (Kabatange et Katule, Reference Kabatange, Katule and Sonaiya1989; Sonaiya, Reference Sonaiya1990; Missohou et al., Reference Missohou, Sow and Ngwe-Assoumou1998; Msoffe et al., Reference Msoffe, Minga, Olsen, Yongolo, Juul-Madsen, Gwakisa and Mtambo2001; SAS Institute, 2001; Al-Rawi et Al-Thari, Reference Al-Rawi and et-Athari2002; Bessadok et al., Reference Bessadok, Khochlef and El-Gazzah2003). La variabilité observée est souvent contrôlée par des gènes majeurs (Coquerelle, Reference Coquerelle2000). L'identification de mutations à effets visibles traduit l'effet de la domestication et l'absence de fixation de ces mutations montre que la population n'est pas standardisée sur le phénotype (Lauvergne et al., Reference Lauvergne, Zafindrajaona, Bourzat, Zeuh and Ngo Tama1993). Ainsi, l'Indice de primarité (rapport du nombre de locus polymorphes au nombre total de locus connus pour contrôler les caractères visibles) dans le cas des poules locales du Cameroun est voisin de 1, car pratiquement tous les locus connus ont été trouvés polymorphes, mais avec souvent une fréquence faible de l'allèle muté. La présence de mutations à effets visibles peut aussi apporter des informations spécifiques sur certains caractères adaptatifs à travers le degré d'introgression desdites mutations ou sur l'histoire de la population donnant sa phylogénie à partir de l'analyse moléculaire de son génome.
Caractères relatifs à la coloration. Les différentes couleurs observées sur les tarses sont déterminées par des effets combinés des séries alléliques au locus lié au sexe ID (‘inhibitor of dermal melanin’, 3 mutations récessives connues, ID*ID, ID*M, ID*C) et au locus autosomal W (‘wheaten’ une mutation récessive connue, W*W) qui contrôlent respectivement la présence de mélanines dans le derme du tarse et la présence de pigments xanthophylles dans l'épiderme (Bateson, Reference Bateson1902; McGibbon, Reference McGibbon1974). La présence de mutations à ces deux locus, seules ou combinées, expliquent la présence de tarses gris, jaunes ou verts, en proportions variables entre les différentes provinces; en fonction des accouplements réalisés entre les animaux des mêmes villages ou avec des coqs améliorateurs provenant d'autres régions. La présence du phénotype ‘peau jaune’ avec une fréquence très importante (50 à 69%) pourrait résulter de l'introduction d'animaux importés, à un stade plus ou moins ancien dans l'histoire des populations de la zone forestière du Cameroun. Le caractère ‘peau jaune’ a également été trouvé avec une fréquence notable (38%) dans la Provinces de l'Ouest (Keambou, Reference Keambou2006). Cette mutation ‘peau jaune’ a été introduite en Europe avec les races asiatiques au 19ème siècle, elle est présente chez certains poulets de chair et chez les poules pondeuses Leghorn et Rhode Island Red. Elle est également très fréquente (80 à 90%) dans des lignées de poules locales développées en Irak (Al-Rawi et Al-Athari, Reference Al-Rawi and et-Athari2002).
La couleur des yeux est génétiquement peu étudiée. Elle résulterait des interactions entre des allèles au locus E ‘extension’, B ‘barring’, ID ‘inhibitor of dermal melanin’ et BR ‘brown-eye’ (Mac Arthur, Reference MacArthur1933). La couleur rouge orangé des yeux de nos poules, la plus fréquemment observée dans notre étude, correspond au type sauvage.
La couleur du plumage est très variable, mais on observe quelques différences entre provinces. En particulier, les coqs à plumage foncé (allèles E*E et E*ER au locus ‘extension’) sont plus fréquents dans les Provincess de l'Est et du Sud, et les animaux porteurs de la mutation ‘argenté’ au locus S sont aussi plus fréquents dans l'Est, et, dans une moindre mesure, dans le Sud. Sur le plan des performances de ponte, la mutation ‘argenté’ est connue pour améliorer l'efficacité alimentaire en comparaison au type sauvage ‘doré’ (Mérat et al., Reference Mérat, Bordas and Coquerelle1979), mais les phénotypes foncés (allèles E*E ou E*ER) sont en général associés à une moins bonne efficacité alimentaire par kg d'oeufs. Il est donc possible que les différences de fréquence observée indiquent les préférences des éleveurs quant à l'aspect des animaux plutôt qu'un avantage particulier sur les performances. Ainsi, les animaux argentés sont beaucoup plus rares dans la Provinces de l'Ouest (Keambou, Reference Keambou2006).
Caractères relatifs à la structure du plumage et aux appendices non emplumés. Certains gènes majeurs jouant sur l'emplumement, le format ou la crête améliorent l'adaptation à la chaleur. Ainsi, les mutations NA ‘cou nu’ et F ‘frisé’ ont, à l'état homozygote, des effets importants sur l'adaptation à la chaleur, en améliorant notamment l'efficacité alimentaire, le poids corporel, la ponte, la masse d'œufs (Mérat, Reference Mérat1986; Haaren-Kiso et al., Reference Haaren-Kiso, Horst and Valle-Zarate1988). Cependant, ces mutations apparaissent peu fréquentes chez les poules locales de la forêt dense, où la température ambiante n'atteint pas de valeurs extrêmement élevées. Les crêtes simples majoritairement rencontrées dans les tropiques comme dans le cas de la forêt dense humide du Cameroun, non seulement jouent un rôle thermorégulateur pour la déperdition de la chaleur (Van Kampen, Reference Van Kampen, Morris and Freeman1974) mais favoriseraient un meilleur poids corporel et la ponte des œufs plus gros (Ikeobi et al., Reference Ikeobi, Ozoje, Adebambo, Adenowo and Sonaiya2000).
La présence d'autres mutations peut indiquer un choix préférentiel des éleveurs en l'absence de valeur adaptative démontrée, c'est le cas des phénotypes ‘tarse emplumé’ (locus PTI) ‘huppé’ (locus CR) ou encore ‘barbe et favoris’ (locus MB) (Davenport, 1906; Serebrovsky et Petrov, 1930; cités par Somes, Reference Somes and Crawford1990) pour lesquels aucun effet majeur n'a été décrit sur le plan zootechnique, mais qui contribuent à différencier les animaux les uns des autres et peuvent avoir une valeur culturelle. Le phénotype tarse emplumé est assez fréquent (22%) dans la Provinces de l'Ouest (Keambou, Reference Keambou2006), et il apparaît un gradient Est-Ouest pour la présence de ce phénotype (moins de 5% à l'Est, environ 10% au Centre, plus de 20% à l'Ouest). Ce caractère est absent des lignées commerciales, et son origine chez les poules du Cameroun reste à déterminer.
La présence de l'ergot chez la poule est un défaut qui augmente la fréquence d'œufs cassés et occasionne de graves blessures en cas de conflits entre poules (Coquerelle, Reference Coquerelle2000). Bien que n'influençant pas la ponte ovulaire, ce défaut s'accroît dans les croisements entre poules ergotées et coqs de races légères, et sa fréquence est plus élevée chez les poules méditerranéennes que chez leurs homologues asiatiques ou américaines (Bauer, Reference Bauer1931; Somes, Reference Somes and Crawford1990).
Il apparaît donc que les éleveurs souhaitent améliorer les caractères d'intérêt économique tels que le poids et la ponte mais qu'ils tiennent compte aussi du phénotype à cause des considérations socioculturelles et rituelles. Le manque de suivi scientifique de ces choix de reproduction et la coexistence de plusieurs critères de sélection se traduisent pas des fluctuations parfois importantes des fréquences phénotypiques. En effet, les rites et traditions ne tiennent pas compte des caractères adaptatifs et zootechniques associés à ces mutations à l'exemple des gènes F et CR considérés à tord comme étant des tares, anomalies ou pathologies qui rendent ces animaux désagréables à la vue. Ainsi, certaines mutations peuvent être rares à l'état adulte car les animaux mâles aux phénotypes non désirables seraient, soit abattus pour la consommation, soit utilisés pour des sacrifices rituels. Cela pourrait expliquer la plus grande fréquence de la mutation CR (huppe) chez les femelles par rapport aux mâles dans la Provinces du Centre, comme dans la Provinces de l'Ouest (Keambou, Reference Keambou2006). Cette situation d'élimination préférentielle d'un phénotype dans un sexe, pourrait également expliquer la présence plus importante des allèles eumélaniques E*E et E*ER et de la mutation argentée S*S chez les coqs des Provinces du Sud et de l'Est.
Conclusion et perspectives
Les poules locales de la zone de forêt dense humide présentent une diversité phénotypique. La description phanéroptique identifie des gènes à effets visibles dont les interactions donnent un chromatisme plumeux très variable, ce qui confère à cette population de poules une place socioculturelle et rituelle importante. Les gènes à effets visibles ne représentent qu'une faible partie du génome et sont soumis à sélection directe de la part de l'éleveur. Une analyse moléculaire à travers l'usage des marqueurs microsatellites permettra de mieux évaluer la diversité au niveau du génome de la population de poules locales, et de la comparer avec les résultats obtenus dans d'autres populations avec les mêmes marqueurs.
Remerciements
Les auteurs remercient Mr Mbilli Oloumé Jean Pierre, Coordonnateur National du Programme National de Vulgarisation et de Recherche Agricoles (PNVRA), pour avoir contribué ardemment à la réalisation de ce travail dans la zone de forêt dense humide. Notre profonde gratitude va à l'endroit des Délégués provinciaux du Ministère de l'Agriculture et du Développement Rural et des Chefs des Services Provinciaux du PNVRA, à des Groupes d'Initiatives Communes d'Akam Messi, FETCHA de Tchamongo et FAT 1 de Biakoa pour avoir rendu possible ce travail respectivement dans les départements de la Vallée de Ntem (Sud) et du Mbam et Kim (Centre). Nous remercions sincèrement Madame Talla Marcelline pour son soutien en télécommunication, la famille Fotsa pour son appui permanent. Nous remercions l'INRA et AgroParisTech pour le soutien financier et matériel.