Las recientes exploraciones arqueológicas en el área maya, acompañadas por análisis zooarqueológicos de restos de fauna, han arrojado nuevos datos acerca del uso alimenticio de animales por los pobladores mayas precolombinos entre el período preclásico, clásico y posclásico, pero también al respecto de la importancia ritual de la fauna, de patrones de caza, pesca y de la domesticación (Emery Reference Emery and Emery2004, Reference Emery2005; Götz Reference Götz2008b; McKillop Reference McKillop2005; Márquez Morfín Reference Márquez Morfín1991; Masson y Peraza Reference Masson and Peraza2008).
En este artículo nos enfocamos en la zona costera de la península de Yucatan, presentando datos e interpretaciones zooarqueológicos de los antiguos pueblos pesqueros y puertos de comercio, que han recibido mucha atención en los últimos años en relación con estudios de la economía prehispánica maya (e.g., Andrews Reference Andrews1998; Cobos et al. Reference Cobos, Souza, Carrillo, Blos, Cucina, Götz, de Anda Alanis and May2007; McKillop Reference McKillop1995, Reference McKillop2005). Los materiales arqueofaunísticos en los que se enfoca este artículo fueron analizados por quien suscribe y colaboradores y proceden de dos sitios precolombinos de la costa norte peninsular, Isla Cerritos e Xcambo, ambos ubicados en la costa norte del Estado Mexicano de Yucatan. El estudio se limita a reminiscencias de animales vertebrados y de crustáceos. Se omiten los moluscos, excavados ampliamente en ambas localidades, porque éstos forman parte de otros estudios (véase, por ejemplo, Germón Roche Reference Germón Roche2011).
Utilizar a los sitios de Xcambo e Isla Cerritos como puntos de partida para una comparación de los modos de aprovechamiento faunístico en el litoral norteño de las tierras bajas mayas del norte se argumenta con el hecho de que ambos asentamientos están ubicados en relativa cercanía entre sí y definen de manera ejemplar a la costa norte peninsular. Xcambo e Isla Cerritos se asocian a la cultura maya prehispánica y se encuentran en zonas ecológicas, geográficas y geológicas cercanas y semejantes, consistiendo en asentamientos permanentes de poblaciones que, además de haber sido activos en el comercio a larga distancia, se sustentaron por la pesca y caza (Carr Reference Carr1987; Götz Reference Götz2008b, Reference Götz2008c).
Tanto el tipo de sitio como la situación deposicional y tafonómica de los restos arqueofaunístcos favorecen una comparación entre Isla Cerritos e Xcambo. Los límites naturales de ambos sitios, como se describe abajo, causaban que en tiempos prehispánicos se reutilizara el material de basura para fines constructivos y para ganarle terreno al mar, por lo que se manifiesta en ambos casos una virtual ausencia de basureros delimitados (Cobos et al. Reference Cobos, Souza, Carrillo, Blos, Cucina, Götz, de Anda Alanis and May2007:7), a diferencia de lo que se conoce de asentamientos mayas tierra adentro (Chase et al. Reference Chase, Chase and Teeter2004). Andrews et al. (Reference Andrews, Negrón, Castellanos, Palma and Rivero1988:203) describen a la estratigrafía de Isla Cerritos inclusive como una serie de basureros sobrepuestos.
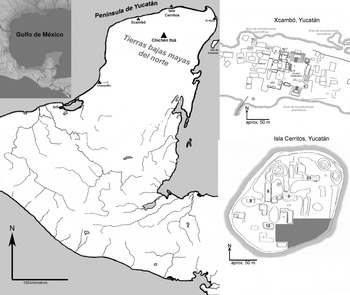
Xcambo e Isla Cerritos presentan cada uno un período de ocupación y auge diferente, por lo que la presentación conjunta de ambos puede esbozar el desarrollo cronológico del aprovechamiento costero prehispánico de fauna por una larga secuencia cronológica, desde el período clásico temprano (250 d.C.) hasta el final del período clásico terminal (1100 d.C.). Para crear un marco de referencia más amplio, cotejamos finalmente los datos zooarqueológicos de Xcambo e Isla Cerritos con la información zooarqueológica de los sitios posclásicos costeros de Champotón (Götz Reference Götz2006), El Meco (Andrews Reference Andrews, Andrews and Castellanos1986) y los sitios prehispánicos de la isla de Cozumel (Hamblin Reference Hamblin1984) (Figura 1), discutiendo así diferencias y similitudes de la región peninsular a nivel espacial y cronológico.
Mapa de la península de Yucatan (tomado de Sharer 1994; modificado por el autor), indicando los sitios tratados en este artículo, así como mapas planimétricos de los sitios de Xcambo (tomado de Sierra Sosa Reference Sierra Sosa1997; modificado por el autor) e Isla Cerritos (tomado de Cobos et al. Reference Cobos, Souza, Carrillo, Blos, Cucina, Götz, de Anda Alanis and May2007; modificado por el autor).

]
La meta del artículo es discutir los patrones de obtención y uso de la fauna en Xcambo e Isla Cerritos, inspeccionando en qué medida fueron, séase por medio de la caza o pesca, obtenidos los animales para el consumo alimenticio y/o artefactual en la cercanía de los asentamientos y qué papel tuvieron los animales vertebrados y crustáceos en los movimientos de bienes de intercambio a lo largo de la discutida ruta de comercio (Andrews Reference Andrews1998). Una parte del artículo está dedicada a describir un grupo particular de hallazgos: especímenes arquefaunísticos de foca tropical (Monachus tropicalis), hoy extinta, hallados en los rellenos constructivos y basureros precolombinos de Xcambo e Isla Cerritos. Los restos de foca aquí descritos constituyen actualmente los únicos de su tipo relacionados a reminiscencias culturales prehispánicas en Mesoamérica, aunque se había supuesto la interacción entre focas y humanos por los mayas desde hace más de veinte años (Andrews Reference Andrews1984).
DEFINICIÓN DE SITIOS Y ÁREAS DE ESTUDIO
La zona costera norte yucateca consiste de sedimentos generados en el ambiente marino, al norte de la planicie carso-tectónica que caracteriza la mayor parte del Estado de Yucatan (Bautista Zúñiga et al. Reference Bautista Zúñiga, Sampedro, Pérez, Colunga-Martín and Larqué-Saavedra2003:25–26). El ambiente marino del norte peninsular comprende a fondos marinos someros de arena y corales, con aguas de tipo tropical de temperaturas medias mayores a los 20 °C y un nivel de salinidad entre 32‰ y 37.5‰ (Chávez Reference Chávez and Yáñez-Arancibia1994:3).
Xcambo se ubica al noroeste de la ciudad de Mérida, aproximadamente 2.2 km al sur de la línea costera norte peninsular, sobre una ligera elevación natural del terreno inundable (peten en maya yucateco), de aproximadamente 700 × 150 m en dirección este-oeste, modificada por construcciones humanas (Sierra Sosa Reference Sierra Sosa1999:41–42) (Figura 1). El Peten de Xcambo yace en el extremo sur de un estuario de aguas saladas y semi saladas, ubicada entre las dunas costeras y la llanura cárstica a lo largo de la costa peninsular (Bautista Zúñiga et al. Reference Bautista Zúñiga, Sampedro, Pérez, Colunga-Martín and Larqué-Saavedra2003:27; Contreras Espinosa Reference Contreras Espinosa1993:179). Isla Cerritos se localiza cerca de 5 km del actual poblado de San Felipe, Yucatan, en una isla de origen natural de aproximadamente 200 m de diámetro remodelada por humanos, que se encuentra a aproximadamente 500 m de la línea costera en aguas del Golfo de México, fuera del estuario descrito arriba (Andrews et al. Reference Andrews, Negrón, Castellanos, Palma and Rivero1988; Gallareta Negrón Reference Gallareta Negrón1998; Gallareta Negrón et al. Reference Gallareta Negrón, Andrews, Castellanos, Palma and Rivero1989). Las inundaciones del área litoral por aguas marinas ocasionan que los suelos de la costa sean de poca utilidad para la agricultura (Bautista Zúñiga et al. Reference Bautista Zúñiga, Sampedro, Pérez, Colunga-Martín and Larqué-Saavedra2003:32), por aproximadamente dos a cuatro kilómetros de la playa, donde terminan los matorrales costeros e inician los bosques secundarios espinosos y hoy día, las milpas.
Las excavaciones arqueológicas en el sitio de Xcambo fueron realizadas por el Centro Regional de Yucatan del Instituto Nacional de Antropología e Historia (CRY-INAH), bajo la dirección de la arqueóloga Thelma Sierra Sosa. Xcambo participaba activamente en el aprovechamiento y comercio de la sal (Sierra Sosa Reference Sierra Sosa1999:41–42, Reference Sierra Sosa2004; Sierra Sosa y Martínez Reference Sierra Sosa and Martínez2001) y hallazgos arqueológicos apuntan a áreas tan lejanas como Chiapas, Tabasco y Veracruz, con las que el sitio tenía contacto (Sierra Sosa Reference Sierra Sosa2004). Durante el clásico temprano (250–600 d.C.), la población xcamboense ejercía la pesca y recolección de sal a pequeña escala, dependiente del sitio de Izamal situado a 55 km tierra adentro; en cambio, en el clásico tardío (600–900 d.C.) se manifiesta un auge independiente del asentamiento, consolidándose la administración del comercio a larga distancia entre la población de Xcambo otras áreas de Mesoamérica (Jiménez Álvarez Reference Jimenez Alvarez2002; Sierra Sosa Reference Sierra Sosa1999:42ss., Reference Sierra Sosa2004; Wanner et al. Reference Wanner, Sierra, Alt and Tiesler2007). Especialmente para este período se supone que en el sitio vivían personas de alto estatus socioeconómico, en especial en la parte oeste, mientras que en la porción este hubo talleres y almacenes (Sierra Sosa Reference Sierra Sosa1997:351, Reference Sierra Sosa1999:42ss.; Sierra Sosa y Martínez Reference Sierra Sosa and Martínez2001:7).
Isla Cerritos fue mapeada y excavada en 1984 y 1985 por arqueólogos del CRY-INAH y del New College of the University of South Florida (ahora New College of Florida) (Andrews et al. Reference Andrews, Negrón, Castellanos, Palma and Rivero1988; Gallatera Negrón Reference Gallareta Negrón1998; Gallareta Negrón et al. Reference Gallareta Negrón, Andrews, Castellanos, Palma and Rivero1989), así como en 2006–2007 por investigadores de la Facultad de Ciencias Antropológicas, Universidad Autónoma de Yucatan (Cobos et al. Reference Cobos, Souza, Carrillo, Blos, Cucina, Götz, de Anda Alanis and May2007). Los pobladores del sitio, al parecer trabajadores porteños de estatus socioeconómico mediano (Clark et al. Reference Clark, Roche and Carrillo2011; Cobos, comunicación personal 2011), fueron activos en el intercambio y comercio en la península de Yucatan y a larga distancia, relacionándose fuertemente durante el clásico terminal (800/900–1050/1100 d.C.) con la urbe de Chichén Itzá, a aproximadamente 100 km tierra adentro (Cobos Reference Cobos, Demarest, Rice and Rice2004; Cobos et al. Reference Cobos, Souza, Carrillo, Blos, Cucina, Götz, de Anda Alanis and May2007:9; Gallareta Negrón Reference Gallareta Negrón1998:25, 26). La ocupación de Isla Cerritos experimentó el auge y declive en el clásico terminal, a la par con la urbe de Chichen Itza (Cobos Reference Cobos, Demarest, Rice and Rice2004; Cobos et al. Reference Cobos, Souza, Carrillo, Blos, Cucina, Götz, de Anda Alanis and May2007:41, 105; Gallareta Negrón Reference Gallareta Negrón1998:29). Durante las fases de ocupación, la isla fue agrandada repetidamente (Gallareta Negrón Reference Gallareta Negrón1998:28–29), construyéndose edificios públicos, almacenes, puestos de vigía, un dique y atracadero, así como numerosas estructuras domésticas.
MATERIALES Y MÉTODOS
Los huesos arqueofaunísticos de Xcambo e Isla Cerritos fueron hallados en su mayoría en rellenos constructivos y encima de antiguas superficies de uso debajo del sedimento moderno, por lo que parecen indicar los hábitos alimenticios de los pobladores prehispánicos de estatus elevado que habitaban en la parte oeste del asentamiento en lo que a Xcambo se refiere (Sierra Sosa Reference Sierra Sosa1999), mientras que los hallazgos de Isla Cerritos corresponden a reminiscencias alimenticias de los habitantes de esta isla en general (Cobos et al. Reference Cobos, Souza, Carrillo, Blos, Cucina, Götz, de Anda Alanis and May2007).
Las excavaciones arqueológicas en Xcambo revelaron una gran cantidad de material óseo faunístico. Del total de la muestra, de más de 31 cajas de archivo, se analizaron muestras aleatorias en varias ocasiones, que a continuación se resumirán. Götz (Reference Götz2008b, Reference Götz2008c) estudió una colección de 1,539 especímenes arqueofaunísticos de vertebrados y crustáceos de la plaza oeste (patios 2, 4 y 12) y de las estructuras NE2, NE14A, NE19, NO1, NO2, NO4 y NO9. Canto (Reference Canto Méndez2009) analizó los artefactos de origen animal (exceptuando material malacológico) hallados en el sitio y Jiménez Cano (Reference Jiménez Cano2009) investigó una muestra del sitio en términos de reconstrucción paleoambiental. Castillo Yam (Reference Castillo Yam2011) analizó una muestra de 1580 especímenes de vertebrados y crustáceos, de las estructuras NE2, NE3, NE3A, NE4, NE7A, NE10, NE12, NE14A, NE18, NE19 y NO6, así como del patio norte de NE7A y de la plaza suroeste. En cuanto a Xcambo, se presentan de manera detallada únicamente los datos de los análisis de Götz (Reference Götz2008b), mientras se hará referencia a los resultados de investigación de Canto (Reference Canto Méndez2009), Castillo (Reference Castillo Yam2011) y Jiménez Cano (Reference Jiménez Cano2009) en la discusión de este artículo.
Las dos fases de investigación arqueológica en Isla Cerritos revelaron dos muestras arqueofaunísticas. La primera colección de 4,061 restos de vertebrados y crustáceos, se excavó en varios pozos de sondeo en estructuras y espacios abiertos (Andrews et al. Reference Andrews, Negrón, Castellanos, Palma and Rivero1988) y fue analizada por Carr (Reference Carr1987). Esta primera muestra se considerará en este trabajo a modo de resumen en la comparación con los datos zooarqueológicos de la segunda muestra y los demás patrones. Los datos detallados de Isla Cerritos se remiten únicamente a la segunda muestra. Ésta, de 2,094 especímenes de vertebrados y crustáceos, se halló durante la excavación de las estructuras numero 3, 5, 8, 12 y 23, de carácter domésticas y/o cívico-ceremonial (Cobos et al. Reference Cobos, Souza, Carrillo, Blos, Cucina, Götz, de Anda Alanis and May2007) y fue analizada por Herrera Flores (Reference Herrera Flores2011) y quien suscribe.
Los materiales arqueofaunísticos de Xcambo e Isla Cerritos se obtuvieron mediante la excavación de pozos de sondeo y estructuras, siguiendo la estratigrafía cultural. Los especímenes de ambos sitios están en su mayoría bien preservados, probablemente debido a condiciones del suelo en el litoral norteño yucateco (Cobos et al. Reference Cobos, Souza, Carrillo, Blos, Cucina, Götz, de Anda Alanis and May2007:134). A pesar de que se observó una fuerte fragmentación del material esquelético, ésta no afectó las características diagnósticas de los ecofactos, lo que posibilitó una identificación taxónómica y osteológica satisfactoria de la mayoría de los especímenes.
En ambos casos se utilizaron cernidores de 5 mm para colar la tierra matriz de contextos con una mayor concentración de artefactos y ecofactos, recolectándose manualmente los materiales de los cernidores. Es posible que por esta razón haya pocos restos microfaunísticos o fragmentos de menos de un centímetro. Donde por consideraciones técnicas o de tiempo no se utilizaron cernidores, se efectuó una recolección manual de ecofactos y artefactos de la tierra matriz al momento de excavar. Durante de las excavaciones de la segunda fase en Isla Cerritos se entrenó a los arqueólogos y trabajadores en conocimientos básicos de anatomía esquelética de animales vertebrados. A pesar de que no pudo efectuarse un entrenamiento a los trabajadores antes de la excavación en Xcambo, debe considerarse que éstos, por ser campesinos, pescadores y cazadores muchos de ellos, están acostumbrados a manejar y subsecuentemente reconocer materiales faunísticos.
El análisis zooarqueológico de las muestras de Xcambo y de la segunda muestra de Isla Cerritos se llevó a cabo en el Taller de Zooarqueología de la Facultad de Ciencias Antropológicas de la Universidad Autónoma de Yucatan, siguiendo los procedimientos estandarizados por Reitz y Wing (Reference Reitz and Wing2008) y O'Connor (Reference O'Connor2003). Se realizó la identificación osteológica y taxonómica del material arqueofaunístico, para posteriormente cuantificar los datos. Para la identificación, se utilizó una colección de referencia osteológica de animales de la región yucateca (clave SEMARNAT YUC.-ZOO-237-09-10) y varios manuales de osteología y tafonomía de vertebrados (EA.FLMNH 2003; Gilbert Reference Gilbert2003; Gilbert et al. Reference Gilbert, Martin and Savage1996; Hillson Reference Hillson1999; Hodgetts Reference Hodgetts1999; Olsen Reference Olsen1964, Reference Olsen1968, Reference Olsen1982). La identificación de los especímenes de foca (Monachus tropicalis) se realizó por medio de fotografías de especímenes modernos. La terminología taxónómica se basa en estudios zoológicos recientes (Adam Reference Adam2004; Adam y García Reference Adam and Garcia2003; Howell y Webb Reference Howell and Webb2004; Lee Reference Lee2000; Mojetta Reference Mojetta2005; Reid Reference Reid1997; Robins et al. Reference Robins, Ray and Douglass1986), verificándose los términos en el Integrated Taxonomic Information System (ITIS 2009). Para las mediciones osteométricas se emplearon los manuales de von den Driesch (Reference von den Driesch1976) y Ericson y Storå (Reference Ericson and Storå1999).
Para las cuantificaciones del material arqueofaunístico se aplicó el conteo simple de especímenes por taxón (Number of Identified Specimens [NISP]) (O'Connor Reference O'Connor2003:132–143). Del NISP se calcularon porcentajes, tanto para acentuar la relación entre la cantidad de taxones de las muestras o para exponer la frecuencia esquelética de la fauna de los contextos, indicando así qué partes corporales de los animales de la muestra estuvieron presentes y en qué medida. La frecuencia esquelética se evaluó de ocho grupos de taxones recurrentes de las muestras (actinopterígios [antiguamente osteíctios], tortugas de mar, tortugas de tierra/agua dulce, iguanas, aves, perros domésticos, manatíes y artiodáctilos), indicando, por medio del porcentaje del NISP (% NISP), la frecuencia de las partes del cuerpo de éstos en las muestras.
Con fines de cotejar los perfiles taxonómicos faunísticos de las dos muestras, se estableció la riqueza de especies y el porcentaje de similitud entre ambas. La riqueza de especies se midió únicamente con base en los dieciséis grupos taxonómicos de las muestras principales que contienen más de un taxón (cangrejos, tiburones, pez sierra, rayas, actinopterígios, tortugas de mar, tortugas de tierra/agua dulce, aves de mar, zarigüeyas, roedores, conejos, carnívoros menores, felinos, perisodáctilos, artiodáctilos, mamíferos marinos) y consideró las identificaciones tanto a nivel de especie como de género. La inclusión del nivel taxonómico de género en el conteo de la riqueza de especies se aplicó debido a que una elevada cantidad de ecofactos únicamente pudo identificarse a este nivel taxonómico, y solamente cuando éstos representaban a un género del que no se había(n) identificado una especie(s). La riqueza de especies indica la suma de especies—y géneros no repetidos sin especies en el caso nuestro de un análisis zooarqueológico—identificadas por muestra. Mientras más elevado sea el número de riqueza de especies, más rica y diversa es la muestra (Reitz y Wing Reference Reitz and Wing2008:110–115). El porcentaje de similitud (P) especifica el grado de semejanza o diferencia entre los conjuntos, indicando un valor P de 100 una absoluta concordancia y un valor P de 0 una completa disimilitud. Para calcular esto, se suman los valores porcentuales individuales mínimos de los taxa entre las muestras a comparar (Reitz y Wing Reference Reitz and Wing2008:110–115).
RESULTADOS
1. Panorama general de las muestras arqueofaunísticas de Xcambo e Isla Cerritos
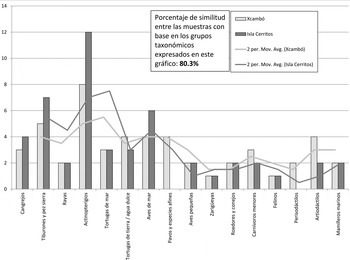
Las dos muestras arqueofaunísticas son de tamaño y distribución general taxonómica similar, considerándose aquí 1,539 fragmentos esqueléticos faunísticos de Xcambo y 2,094 de Isla Cerritos. En ambas muestras se encontraron cantidades semejantes de crustáceos, aves y mamíferos, bajo la consideración de que los grados de fragmentación de las dos muestras son semejantes (véase arriba). La semejanza entre los dos perfiles taxonómicos puede notarse mediante el cotejo de la riqueza de especies y el porcentaje de similitud (P), siguiendo a Krebs (Reference Krebs1989:293–309). Para ambos cálculos se tomaron en cuenta únicamente los grupos taxonómicos de más de un taxón (tales que aparecen en el gráfico) y se contaron tanto géneros como especies identificados (única excepción: Delphinidae). La relativamente alta semejanza entre las dos muestras se expresa especialmente por el porcentaje de similitud (P) elevado de 80.3%. La Figura 2 compara los perfiles generales de la muestra de manera gráfica. Se puede observar que la composición taxonómica y cuantitativa de las dos muestras es semejante; las cantidades de especies agrupadas en las categorías taxonómicas corresponde a un patrón uniforme. Diferencias en la riqueza de especies por grupos particulares parecen corresponder a una mayor abundancia de especies de cangrejos, tiburones, actinopterígios y aves marinas en Isla Cerritos, mientras que especies de tierra firme, entre artiodáctilos y pavos, están más representadas en Xcambo.
Gráfico indicando la riqueza de especies, comparada entre los conjuntos arqueofaunístics de Isla Cerritos y Xcambo.

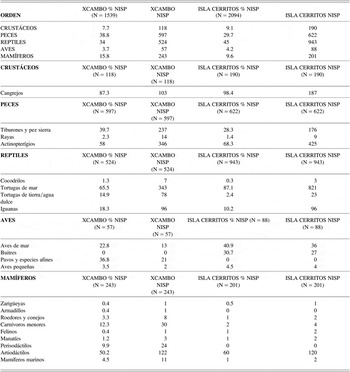
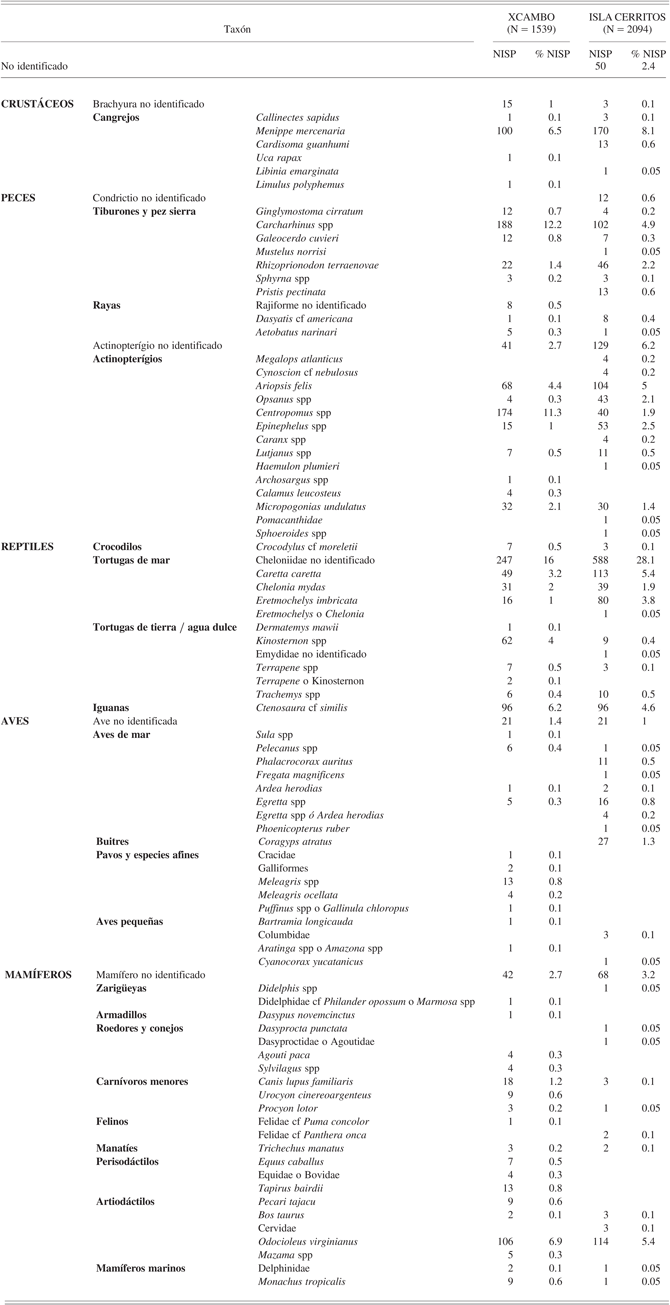
A continuación se exponen a detalle los perfiles taxonómicos de las dos muestras. La Tabla 1 muestra un resumen de los taxones hallados en las muestras, mientras que la Tabla 2 presenta detalles cuantitativos y taxonómicos. Entre la cantidad de especímenes de peces (actinopterígios y condríctios) y reptiles parecen haber relaciones disímiles inversas entre ambas muestras, presentándose una mayor cantidad de fragmentos del esqueleto de peces en Xcambo, mientras que Isla Cerritos indica una mayor presencia de restos de reptiles.
Tabla indicando los porcentajes del NISP (% NISP) de los grupos taxonómicos más relevantes de las muestras. Seis especímenes de foca fueron hallados en muestreos recientes del material arqueofaunístico del sitio (octubre 2011), por lo que no se incluyen en el listado numérico de esta tabla los especímenes no identificados no aparecen en la tabla, su cantidad corresponde a los números faltantes

Tabla indicando los perfiles taxonómicos detallados de los dos conjuntos cotejados, mostrando el NISP y el % NISP. Seis especímenes de foca fueron hallados en muestreos recientes del material arqueofaunístico del sitio (octubre 2011), por lo que no se incluyen en el listado numérico de esta tabla
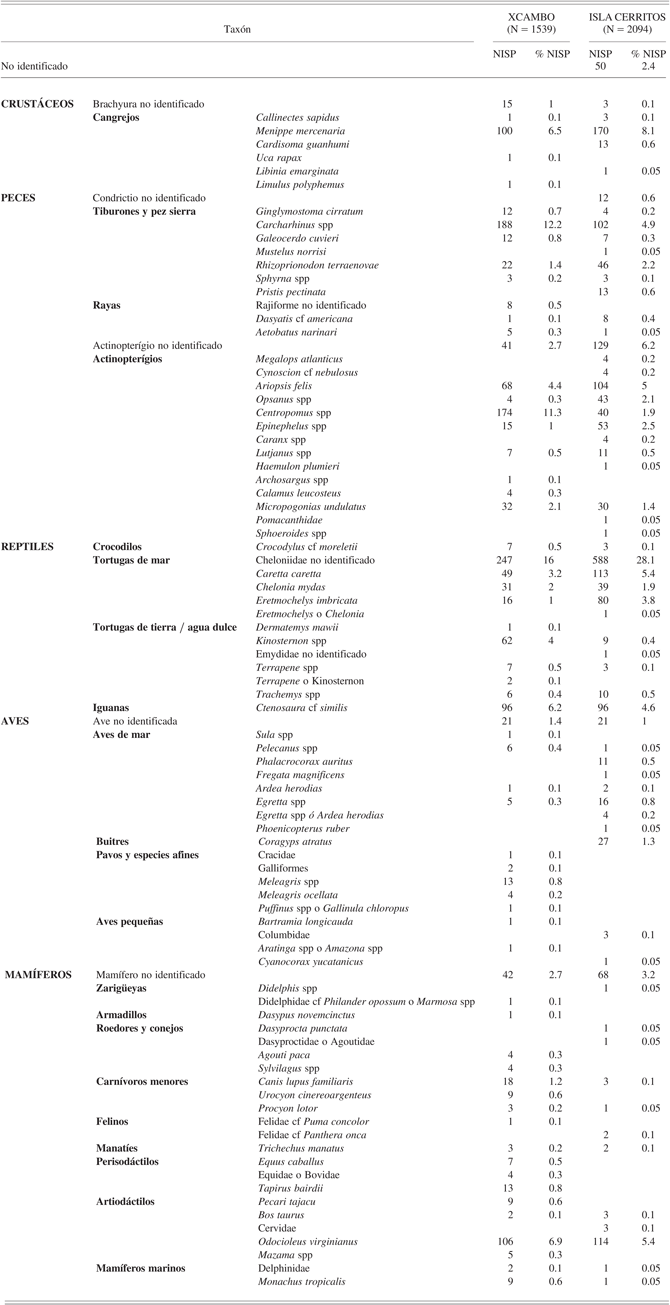
Los macro-grupos taxonómicos se subdividen en varios subtipos de animales, desglosados a mayor detalle en la parte inferior de la Tabla 1 y en la Tabla 2. La mayor parte de los fragmentos de crustáceos se reconocieron en ambos sitios (87.3% en Xcambo y 98.4% en Isla Cerritos) como partes de cangrejos, correspondiendo las cantidades faltantes a fragmentos irreconocibles. La mayor parte de especímenes del cangrejo corresponde al cangrejo moro (Menippe mercenaria), entre 6% y 8% en Xcambo e Isla Cerritos respectivamente, seguidos por restos del juey común (Cardisoma guanhumi), en mucho menor cantidad, pero aún con 0.6% de la muestra total de Isla Cerritos. Estas dos especies son de un exoesqueleto sumamente robusto y rebasan a las especies menos representados en la muestra en peso corporal, como jaiba (Callinectes sapidus), cangrejo señalador (Uca rapax) y cangrejo araña (Libinia emarginata). El exoesqueleto de las cucarachas del mar (Limulus polyphemus) es inclusive más frágil que de los cangrejos pequeños de la muestra, aunque estos animales pueden alcanzar tamaños mayores al juey o cangrejo moro.
Los peces, subdivididos en tiburones y peces sierra, rayas y actinopterígios de acuerdo a forma y tamaño, se dividen tanto en Xcambo como en Isla Cerritos en aproximadamente un tercio de fragmentos de condríctios y dos tercios de actinopterígios. Esto obedece muy probablemente a diferentes anatomías óseas. Las únicas partes osificadas del esqueleto de tiburones, peces sierra y rayas son las vértebras, escamas y dientes (aunque ha habido muy pocos hallazgos de escamas y dientes de condríctios en ambos sitios), mientras que el esqueleto completamente osificado de los actinopterígios posee una gran cantidad de elementos esqueléticos (Hulbert Reference Hulbert2001:75–108; Olsen Reference Olsen1968:3–12).
Los tiburones carcarrínidos (Carcharhinus spp) ocupan, junto con tiburones tipo cazón (Rhizoprionodon terraenovae), los lugares más prominentes entre los condríctios. Tanto en Isla Cerritos como en Xcambo es raro el contexto que no contenga vértebras de carcarrínidos. Tiburones nodriza (Ginglymostoma cirratum) y tigre (Galeocerdo cuvier) se encuentran en menor frecuencia, al igual que pez sierra (Pristis pectinata), del cual Jiménez Cano (Reference Jiménez Cano2009:97–99) encontró recientemente restos del vómer en Xcambo. Tiburón martillo (Sphyrna spp) y cazón ó musola (Mustelus cf norrisi), este último sólo en Isla Cerritos, ocupan los lugares más bajos en frecuencia. Al respecto de las rayas hay bajas frecuencias de vértebras, ya que no aparecieron aguijones, de la raya gavilán (Aetobatus narinari) y de la raya látigo (Dasyatis americana).
Los actinopterígios igualmente frecuentes en ambas muestras son el bagre (Ariopsis felis) y la gurrubata (Micropogonias sp). La muestra de Xcambo es rica en restos de robálo (Centropomus sp), mientras que hubo pocos restos de este taxón en Isla Cerritos. Una relación inversa atañe a fragmentos esqueléticos del mero (Epinephelus spp), del cual hubo más especímenes en Isla Cerritos. Del pez sapo (Opsanus spp) hubieron más fragmentos en Isla Cerritos, mientras que restos del pargo (Lutjanus spp) están igualmente infrecuentes en ambas muestras. Diferencias entre ambas muestras se observan también en cuanto al sábalo (Megalops atlanticus) y corvina (Cynoscion cf nebulosus), dos taxones únicamente presentes en Isla Cerritos, así como sargo (Archosargus spp) y pluma (Calamus cf leucosteus), solamente hallados en Xcambo.
Los reptiles se dividen entre cocodrilos, tortugas de mar, tortugas de tierra y agua dulce e iguanas. Mientras que los cocodrilos son poco frecuentes en ambas muestras, se acentúan las cantidades de fragmentos de tortugas marinas en ambos sitios. Al igual que con los carcarrínidos es muy frecuente hallar restos de tortugas marinas en ambos sitios. Tortugas de agua dulce, tierra y pantano son más frecuentes en Xcambo, mientras que iguanas se encontraron de forma bastante homogénea entre las muestras. En ambos casos se hallaron, entre los múltiples fragmentos de caparazón no diagnósticos, especímenes de tortuga caguama (Caretta caretta), blanca (Chelonia mydas) y carey (Eretmochelys imbricata). Las cantidades varían levemente entre las dos muestras, habiendo más restos de tortuga carey que de tortuga blanca en Isla Cerritos, contrario al patrón observado en Xcambo. Entre las tortugas de agua dulce y pantano aparecen tanto tortuga casquito (Kinosternon sp) como taxón más frecuente, tortuga de caja (Terrapene sp) y jicotea (Trachemys sp) en ambas muestras, y solamente la tortuga blanca de río (Dermatemys mawii) falta en Isla Cerritos.
Entre la avifauna hay cuatro grandes grupos, aves marinas, buitres, pavos y especies afines y aves pequeñas. Mientras que los buitres faltan en Xcambo, no se hallaron restos de pavos y especies afines en Isla Cerritos. Las aves de mar están presentes en pequeñas cantidades en las dos muestras, pero la variedad taxonómica es mayor en Isla Cerritos. Cormorán (Phalacrocorax auritus), fregata (Fregata magnificens) y flamenco (Phoenicopterus ruber) únicamente se hallaron en Isla Cerritos, mientras que fragmentos del alcatraz únicamente fueron encontrados en Xcambo. Los pavos, limitados a Xcambo, se identificaron exclusivamente como pavo ocelado (Meleagris ocellata) y no se hallaron restos del guajolote (Meleagris gallopavo), ni en Isla Cerritos ni en Xcambo. De las aves pequeñas, hubo pericos (Aratinga spp ó Amazona spp) en Xcambo y ch'el (Cyanocorax yucatanicus) en Isla Cerritos.
Los mamíferos representan el grupo más variado entre la arqueofauna de los dos sitios, aunque representados en mayor medida en Xcambo. Ambos sitios muestran en especial un alto índice de restos de artiodáctilos (venados, pecarís), sobre todo de venado cola blanca (Odocoileus virginianus). Xcambo presenta un número relativamente elevado de restos de perro (Canis lupus familiaris), mientras que todos los demás taxones de fauna mamífera aparecen en bajas cantidades, incluyendo la presencia de restos de felinos, puma (Puma concolor) en Xcambo y jaguar (Panthera onca) en Isla Cerritos. Los restos de caballo y ganado bovino encontrados en Xcambo se excluyen de las discusiones sobre la fauna, porque corresponden a la postocupación histórica del sitio (Götz Reference Götz2008b). La foca tropical (Monachus tropicalis) es, en comparación con los demás taxones, poco representada, pero se discuten sus especímenes de manera separada, debido a su carácter especial para la zooarqueología del área.
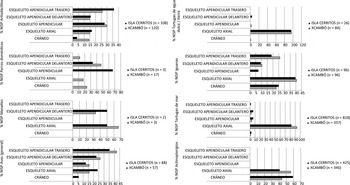
Al considerar la frecuencia esquelética de grupos taxonómicos seleccionados, se observa una semejanza en algunos aspectos, pero también diferencias notables (Figura 3). Los actinopterígios presentan un patrón inverso entre Xcambo e Isla Cerritos, ya que en el primer sitio se encontraron más partes del esqueleto axial, mientras que en Isla Cerritos había, en concordancia con la hipótesis de Carr (Reference Carr1987), más restos del cráneo que postcraneales. Las frecuencias esqueléticas de los restos arqueofaunísticos de tortugas de mar, tierra y agua dulce son bastante semejantes entre los dos sitios y también entre aves, manatíes y artiodáctilos. Los restos de perro muestran una diferencia fuerte en cuanto a la frecuencia esquelética, pero ésta puede deberse posiblemente más a la poca cantidad de restos de perro (n = 3) encontrada en Isla Cerritos, en comparación con los 17 fragmentos encontrados en Xcambo.
Gráficos indicando la frecuencia esquelética de los taxones más representativos de las muestras de Isla Cerritos y Xcambo.

2. Los especímenes de foca (Monachus tropicalis)
En los sitios de Xcambo e Isla Cerritos se encontraron catorce especímenes esqueléticos arqueológicos de las extremidades y del cráneo atribuidos a un animal conocido por los nombres de foca tropical, foca monje o West Indian Seal (Monachus tropicalis). Debido a la importancia de estos hallazgos, se procede con una descripción detallada de los especímenes.
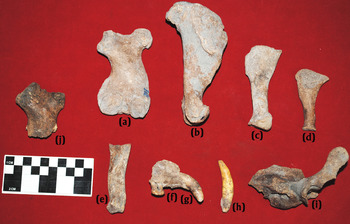
Los restos esqueléticos identificados como Monachus tropicalis hallados en Xcambo, corresponden a un fémur (Figura 4a), un húmero (Figura 4b), dos radios (Figura 4c y 4d), dos metapodios (Figura 4e), un fragmento anterior de un maxilar derecho con el 3er premolar in situ (Figura 4f), un canino superior derecho correspondiente al maxilar anterior (Figura 4g) y otro canino suelto (Figura 4h), así como un hueso temporal casi completo con la bula auditiva y el arco zigomático posterior in situ (Figura 4i) (véase Tabla 3). Un fragmento de hueso squamosal, no ilustrado, exhibe características que podrían identificarlo como perteneciente a foca, pero la evidencia es inconclusa. Entre la colección de artefactos de hueso de Xcambo se descubrió además un canino suelto de foca, cuya raíz exhibe un profundo corte (Canto Méndez Reference Canto Méndez2009:120, Figura 5.2b). Este diente se descubrió en el relleno de la estructura NE3.
Fotografías de los especímenes óseos característicos de foca (Monachus tropicalis) hallados en Xcambo e Isla Cerritos, Yucatan. Fotografía del autor.

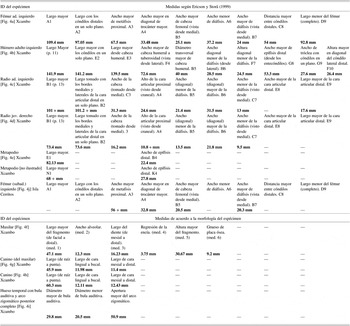
Tabla de medidas osteométricas de los huesos de foca (Monachus tropicalis), hallados en Isla Cerritos y Xcambo. El segundo apartado de la muestra incluye medidas que no se basan en Ericson y Storå (Reference Ericson and Storå1999)

El fémur de Xcambo corresponde a un espécimen adulto izquierdo y fue encontrado en el relleno constructivo de la estructura NE2. Diagnóstico de este hueso es la forma anteroposterior aplanada, que le otorgan un ancho considerable, pero un grosor relativamente reducido (Hodgetts Reference Hodgetts1999:360–363). A pesar de mostrar signos de erosión y daños postdeposicionales, está muy bien preservado y no presenta marcas antrópicas. El húmero, del lado derecho y de un animal adulto, fue excavado en la estructura NE21. La porción proximal del húmero, cuyos elementos diagnósticos son la pronunciada curvatura longitudinal y la elevada y fuerte cresta deltoide (Hodgetts Reference Hodgetts1999:321–329). La cabeza humeral muestra daños infligidos por un carnívoro mediano.
El radio más grande corresponde al lado izquierdo y es de edad adulta. Se excavó en la plaza oeste del sitio. A pesar de que le falta la porción distal, se estableció la edad biológica con base en las inserciones musculares y la epífisis proximal claramente definida. La forma triangular alargada aumenta el ancho -más no el grosor- notablemente hacia la porción distal (Hodgetts Reference Hodgetts1999:334–339). Muy cerca de la fractura distal y la línea áspera se encuentran cinco raspaduras poco profundas en el hueso córtico, perpendiculares al axis longitudinal del hueso y paralelas entre sí. Las raspaduras mostraron bajo microscopio una morfología interna en “U,” concordantes con la morfología de raspaduras dentales de un carnívoro mediano que masticó la parte distal del hueso, lo que también se indica por la forma denticulada del borde de la fractura distal (véase Blasco Sancho Reference Blasco Sancho1992; Fisher Reference Fisher1995). El radio pequeño procede de un animal juvenil, reconocible por la epífisis proximal aún no fusionada. Este espécimen fue hallado en el relleno de la estructura NO2. La forma triangular aún más acentuada que en el espécimen adulto parece ser un rasgo diagnóstico (Hodgetts Reference Hodgetts1999:340–341). No se hallaron marcas antrópicas o de carnívoro/carroñero en este espécimen. Los dos metapodios, uno excavado en la NE3 y el otro en la NE21, presentan solamente la porción proximal, habiéndose quebrado la parte distal en seco.
El fragmento de maxilar, del lado derecho, posee aún in situ el primer molar, además del alvéolo del tercer y segundo premolar y de la mitad del alvéolo del canino junto con el diente correspondiente. El conjunto de estos especímenes apareció en los rellenos constructivos de la Plaza Oeste de Xcambo. Característico para su identificación fue la morfología dental y el patrón poroso del hueso córtico exterior, así como la rugosidad del esmalte dental, visible tanto en los caninos como en el premolar. La edad biológica del maxilar es adulta, se aprecia la erupción total de las piezas dentales, un acentuado desgaste del premolar y una retracción alveolar. El canino superior, perteneciente al maxilar y encontrado en asociación estratigráfica con éste, muestra una fractura, al parecer antemortem, en la porción lingual de la corona, mientras que la raíz está completa. El canino suelto, hallado en el relleno de la estructura NE3, es, a pesar de encontrarse fragmentado, ligeramente más largo que el espécimen localizado junto con el maxilar. La morfología rugosa del esmalte corresponde a un rasgo diagnóstico. El hueso temporal fue desenterrado en el Patio XIV y presenta tanto la bula auditiva como el arco zigomático completos.
Los dos especímenes de foca encontrados en Isla Cerritos corresponden a un fémur (Figura 4j) y una porción interior del cráneo (no ilustrado). El fémur, izquierdo, está representado únicamente por la porción proximal, faltan cabeza femoral y trocánter, presumiblemente por daños de masticación canina y erosión. No es posible asegurar que este fémur proceda de un individuo adulto, pero la robustez del trocánter mayor hace suponer que así sea. El tamaño del espécimen es ligeramente menor al fémur encontrado en Xcambo (véase Tabla 3). No se registraron huellas de actividades humanas, pero el espécimen presenta fisuras leves sobre la diáfisis, que posiblemente resultan de procesos deposicionales como el apisonamiento. La porción interior del cráneo, hallada en el contexto de una ofrenda depositada en un trono, contiene partes del hueso sphenoide y partes del vómer, fusionados pero fragmentados en seco.
DISCUSIÓN
1. Obtención y uso de animales vertebrados y crustáceos en la costa yucateca
Los perfiles faunísticos de Isla Cerritos e Xcambo permiten esbozar el panorama de aprovechamiento que se seguía por los habitantes prehispánicos de la costa yucateca. En la discusión se abarcan tres aspectos relacionados a uso y obtención de animales vertebrados y crustáceos en la costa prehispánica de Yucatan. En primer lugar se reconstruyen las áreas de obtención de los recursos faunísticos explotados por los habitantes costeros prehispánicos con base en la información ecológica derivada de las especies identificadas. En segundo lugar se analizará si los datos zooarqueológicos de los dos asentamientos, arqueológicamente comprobados como puertos de comercio, permiten identificar un traslado/comercio de animales desde o hacia regiones distantes. El tercer aspecto discutirá el desarrollo cronológico de las estrategias de explotación entre el clásico temprano/tardío (Xcambo), el clásico terminal (Isla Cerritos) y el posclásico (sitios de referencia: Champotón, Cozumel y El Meco).
Las áreas de obtención que se evidencian de los dos perfiles faunísticos subrayan un patrón que ya ha sido referido en otras publicaciones. Análisis zooarqueológicos de fauna tanto terrestre como acuática parecen indicar que los mayas de las tierras bajas del norte explotaban en gran medida a las zonas inmediatas que circundaban a los sitios prehispánicos (Götz Reference Götz, Laporte, Arroyo, Escobedo and Mejía2008a, Reference Götz2008c). Isla Cerritos e Xcambo no solamente encajan en este patrón, sino parecen inclusive acentuar esta teoría. Los sitios tierra adentro manifiestan fauna, aprovechada por los mayas, predominantemente de bosques secundarios y espacios abiertos de uso agricultural y se ha argumentado que se obtuvo la mayor parte de esta fauna en las áreas milperas circundando los sitios (Götz Reference Götz2008b, Reference Götz and Stanton2013). Xcambo e Isla Cerritos muestran fauna del ambiente acuático costero principalmente, pero detalles de sus perfiles taxonómicos parecen manifestar inclusive la diferencia de ubicación entre los dos sitios, a modo de que permiten trazar más claramente y con mayor seguridad lo limitado que parecen haber sido las áreas de obtención en cada caso. En este sentido, los datos de Xcambo e Isla Cerritos permiten una caracterización más detallada de este patrón que al respecto de los sitios tierra adentro, donde las definiciones se han basado en animales ampliamente distribuidos en la región norteña peninsular (Götz Reference Götz2008b, Reference Götz and Stanton2013).
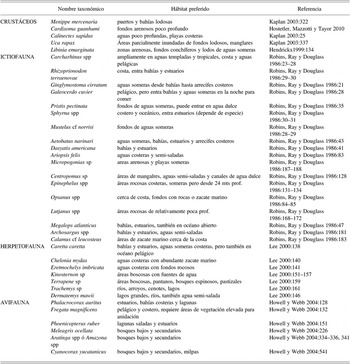
Todos los taxones acuáticos identificados en las dos muestras representan ecosistemas correspondientes a aguas someras, fondos arenosos cercanos al litoral, bahías y estuarios, o arrecifes costeros como hábitats preferidos (Tabla 4) (véase también Carr Reference Carr1987:7). Ningún pez de las colecciones arqueofaunísticas es limitado a aguas pelágicas, un patrón que parece ser característico de contextos mayas precolombinos de la península (Hamblin Reference Hamblin1984:41). Varios taxones de tiburones de las muestras (Carcharhinus spp, Galeocerdo cuvier, Sphyrna spp) habitan aguas oceánicas, pero todos entran a aguas someras para alimentarse o llevar a cabo algún otro ciclo vital (Robins et al. Reference Robins, Ray and Douglass1986:23–31). Diferencias leves en los perfiles indican patrones de obtención dictados por la localidad en particular, y se observa que la localización del sitio de Isla Cerritos hacia aguas abiertas causaba un aprovechamiento más concentrado en mero y pez sapo, habitantes de aguas rocosas costeras (Robins et al. Reference Robins, Ray and Douglass1986:84–85, 131–134). El pez más frecuente en Xcambo es el robálo, habitante de aguas semi-saladas que entra frecuentemente a bahías y estuarios (Robins et al. Reference Robins, Ray and Douglass1986:128), tal como se hubiesen encontrado alrededor de este sitio ubicado precisamente en el gran estuario al sur de la playa. En la actualidad, el robálo y el bagre, otro pescado frecuente en Xcambo, dejaron de tener importancia en la pesca y ésta se concentra en meros (Epinephelus spp) y camarones (Penaeus spp), especies más alejadas de la zona costera inmediata (Chávez Reference Chávez and Yáñez-Arancibia1994). No se encontraron restos de camarones en las muestras. De las tortugas marinas, suponemos que también fueron obtenidos cerca de la costa, ya que los individuos de tortugas marinas de las muestras corresponden principalmente a individuos adultos, a juzgar del tamaño de fragmentos del caparazón y de los huesos largos. Es muy posible que estas tortugas hayan sido hembras adultas, capturadas, quizás como aún hace algunas décadas en esta zona, al momento de desovar en las playas entre primavera y verano (Lee Reference Lee2000:135–142; Marmolejo Monsiváis Reference Marmolejo Monsiváis2000:89–90), o bien, se habrían cazado con redes durante la cópula o mientras descansan en el agua (Carr Reference Carr1987:8).
Tabla enlistando preferencias de hábitat de las especies más importantes de las dos muestras, Xcambo e Isla Cerritos

La poca presencia de restos de perro (Canis lupus familiaris) en Isla Cerritos (Tabla 2) (véase también Carr Reference Carr1987:7), a diferencia de Xcambo y otros sitios costeros (Andrews Reference Andrews, Andrews and Castellanos1986; Hamblin Reference Hamblin1984) donde sí apareció una considerable cantidad de especímenes de este taxón, puede relacionarse a usos alimentarios de tortugas marinas. Carr (Reference Carr1987:7) sospechó que la falta de agua dulce en la Isla o la protección de tortugas de mar en desove, aprovechados por los humanos en Isla Cerritos, y cuestiones sanitarias habrían causado que pocos perros se hayan mantenido en la isla (Anthony Andrews, comunicación personal 2011).
Con base en estas evidencias puede considerarse que la pesca prehispánica en Xcambo e Isla Cerritos estaba limitada a la zona costera de poca profundidad. A pesar de que la navegación maya precolombina permitía moverse en alta mar (Andrews Reference Andrews1998:19), consideramos que durante estas incursiones no se pescaba, quizás porque el luchar con peces grandes o sacar redes hubiera podido causar un naufragio de las canoas, probablemente porque no se veían los peces para arponear o flecharlos (faltando además el contraste con la arena), o porque las redes no eran suficientemente largas para aprovechar las profundidades.
Los taxones no acuáticos de las muestras expresan posiblemente conexiones entre los habitantes pesqueros de Xcambo e Isla Cerritos, y los habitantes de los sitios en tierra firme. Las tortugas de agua dulce y tierra (Kinosternidae y Emydidae) de Isla Cerritos debieron haberse traído desde la tierra firme a la isla, contribuyendo así, como ya supuso Carr (Reference Carr1987:8) en cuanto a la muestra antigua del sitio, a la dieta de los habitantes. Restos de pavos y especies afines en Xcambo, y su ausencia en Isla Cerritos, indican también una relación más estrecha con áreas tierra adentro. La mayoría de huesos de estas aves pertenece a la especie de pavo ocelado (Meleagris ocellata), endémica en las tierras bajas mayas, que constituye una de las grandes aves aprovechadas con mayor frecuencia por los mayas prehispánicos (Götz Reference Götz2008b; Pohl Reference Pohl and Willey1990). Restos de cérvidos, roedores, conejos y también felinos fueron encontrados en ambos asentamientos costeros. En la mayoría de los sitios tierra adentro precolombinos mayas de las tierras bajas, el venado cola blanca fue el mamífero más aprovechado para el consumo, rebasando en cantidad todos los demás taxones (véase, por ejemplo, Götz Reference Götz2008c; Pohl Reference Pohl and Willey1990).
En este sentido, las evidencias de un intercambio de recursos faunísticos entre costa y tierra adentro son escasas y apuntan cuando mucho hacia un transporte de animales a corta distancia. Los taxones terrestres prominentes en las dos muestras, como cérvidos (O. virginianus y Mazama spp) y pavos (Meleagrididae) constituyen la fauna de aprovechamiento más importante y frecuente en sitios tierra adentro en las tierras bajas mayas del norte (Carr Reference Carr1986; Götz Reference Götz2008b, Reference Götz2008c; Masson y Peraza Reference Masson and Peraza2008; Pollock y Ray Reference Pollock and Ray1957). No ocurren en zonas inmediatamente cercanas a la costa yucateca (Howell y Webb Reference Howell and Webb2004:225, 226; Reid Reference Reid1997:283), pero sí habitan el sur de las franjas costeras, los bosques secundarios a pocos kilómetros de la costa (Anthony Andrews, comunicación personal 2011).
Existe la posibilidad que estos animales terrestres de los bosques y milpas representen los bienes de intercambio que se recibieron en los sitios costeros, a cambio de productos marinos como la sal, moluscos y peces (Andrews Reference Andrews1998), sobre todo si se considera que las poblaciones costeras hubiesen estado involucradas en la explotación de sus recursos, sin poder adentrarse en tierra firme para cazar. Además, en Xcambo se hallaron más de cien metapodios de venado, afilados en la parte distal en forma de punta y probablemente utilizados para la fabricación y reparación de redes (Canto Méndez Reference Canto Méndez2009:93ss.). Carr (Reference Carr1987:15) observó el mismo patrón en la antigua muestra de Isla Cerritos. No obstante, en ninguno de los dos asentamientos costeros se encontró una cantidad equiparable de los demás restos esqueléticos, siendo entonces muy posible que los metapodios llegaron, ya fabricados, a la costa como producto del intercambio. En ambas muestras de Isla Cerritos se notó además, que habían más elementos craneales y postcraneales de peces óseos (Figura 3) (Carr Reference Carr1987:20ss.). Este patrón fue interpretado por Carr (Reference Carr1987:20ss.) como un posible indicio de la exportación de cuerpos de pescados sin cabeza a sitios tierra adentro, semejante a lo que se hace hoy día con peces pequeños (Anthony Andrews, comunicación personal 2011).
En lo que pudiera referirse al comercio—y la obtención—de animales de áreas más alejadas que la inmediata zona tierra adentro, como el sur y centro de Veracruz, Guerrero, la región del Chontalpa y Grijalva de Tabasco y Chiapas, con las que tanto Xcambo como Isla Cerritos tuvieron contacto según el registro arqueológico (Andrews et al. Reference Andrews, Negrón, Castellanos, Palma and Rivero1988; Jiménez Álvarez et al. Reference Jiménez Álvarez, Gallareta, Sosa, Carrión and Cook2006), no se manifiestan esquemas claros en este momento. En las dos muestras no se encuentra ningún taxón procedente claramente de regiones muy distantes; el venado cola blanca, por ejemplo, se distribuye por toda Mesoamérica y más allá (Reid Reference Reid1997), pero hasta el momento no hay indicios de que estos animales se hayan transportado desde allí. Las dificultades de conservación de carne o animales vivos durante el transporte en tiempos prehispánicos (Götz Reference Götz, Álvarez and Cab2011), así como la riqueza de recursos faunísticos en Yucatan habrán, muy probablemente, hecho innecesario e imposible el transporte de productos faunísticos a larga distancia en tiempos del clásico.
En cuanto al desarrollo cronológico de los patrones prehispánicos de pesca en la costa peninsular, nos remitimos a comparaciones entre los perfiles generales de los sitios entre el clásico temprano y tardío (250–950 d.C.), representado por Xcambo, el clásico terminal (950–1100 d.C.), representado por Isla Cerritos, así como el posclásico, representado por Champotón (Götz Reference Götz2006), Cozumel (Hamblin Reference Hamblin1984) y El Meco (Andrews Reference Andrews, Andrews and Castellanos1986). La situación estratigráfica de Xcambo e Isla Cerritos, explicada en la sección de Materiales y Métodos, ocasiona que una diferenciación entre contextos claramente fechables se dificulte (Jiménez Álvarez Reference Jimenez Alvarez2002). Además, cotejos recientes entre contextos del clásico temprano y tardío en Xcambo no han podido mostrar diferencias significativas en cuanto a la arqueofauna (Castillo Yam Reference Castillo Yam2011:157–160).
En párrafos anteriores se hizo mención de una gran gama de similitudes entre las muestras de Xcambo e Isla Cerritos, identificando a las diferencias más bien en términos de la adaptación a particulares situaciones ambientales en cada caso. Los perfiles taxónómicos, al igual que las frecuencias esqueléticas de los taxones, muestran una notable semejanza entre Isla Cerritos e Xcambo, por lo que consideramos que ambos sitios indican una especie de seguimiento tradicional del aprovechamiento de los recursos marinos en la costa peninsular (véase también Jiménez Cano Reference Jiménez Cano2009:141–153). Este esquema de aprovechamiento se seguía por lo menos durante 850 años desde el clásico temprano hasta el clásico terminal. A pesar de que se demostró, para la costa de Belice (McKillop Reference McKillop2005:137–143) y campechana (Folan et al. Reference Folan, Morales, Hernández, González, Folan, Bolles, Gunn and Domínguez2004), un aumento del nivel del mar durante el período clásico, pareciera que éste no afectó en sí la adaptación ambiental de los asentamientos y la representatividad de los perfiles faunísticos.
El aprovechamiento del mar y la estrecha adaptación a este medio seguía al parecer también durante el Posclásico. Los datos de El Meco (Andrews Reference Andrews, Andrews and Castellanos1986:67–70) evidencian la explotación de taxones acuáticos locales, un dato por más seguido también en Champotón (Götz Reference Götz2006) y Cozumel (Hamblin Reference Hamblin1984). Los sitios posclásicos de Cozumel evidencian una mayor explotación de recursos de zonas de arrecifes, faltando, entre otros, el robálo (Centropomus spp) y otros peces de fondos lodosos en sus muestras (Hamblin Reference Hamblin1984:38–43). Los contextos posclásicos guardan sin embargo una gran diferencia a las dos muestras aquí presentadas, que podría indicar que el esquema de comercio a larga distancia en el posclásico sí cambió el panorama de aprovechamiento en la costa. Los sitios de Cozumel (Hamblin Reference Hamblin1984:96–97), Champotón (Götz Reference Götz2006, Reference Götz2008b:114–122, 218), y posiblemente El Meco (Andrews Reference Andrews, Andrews and Castellanos1986:69), proceden de la especie mesoamericana del pavo doméstico (Meleagris gallopavo), un taxón que ocurre en estado silvestre en el norte de México y sur de EE.UU. (Valadez Azúa Reference Valadez Azúa2003:97–100). Hasta la fecha no se han encontrado restos de esta ave ni en Xcambo ni en Isla Cerritos, y es muy posible que el guajolote doméstico llegó a la porción norte de la península hasta el período posclásico, reemplazando en importancia alimenticia a las aves locales de costa y tierra adentro.
2. La foca tropical y el ser humano en las costas yucatecas durante el período clásico y posclásico
La foca tropical (Orden: Carnivora, Familia: Phocidae, Subfamilia: Monachinae, Géreno: Monachus, Especie: tropicalis) (Adam Reference Adam2004; Davies Reference Davies2008) pertenece a la familia de las focas verdaderas (Mangel Reference Mangel2003:3). Esta foca, cuyo nombre en maya fue tsulá (Andrews Reference Andrews1984:4), alcanzaba un tamaño mediano, de 135 kg en promedio (Davies Reference Davies2008). Se alimentaba probablemente de peces y crustáceos (Adam Reference Adam2004:3; Adam y García Reference Adam and Garcia2003:305) y moraba predominantemente en los arrecifes e islas lejanas a la tierra firme del área caribeña y del Golfo de México (Adam y García Reference Adam and Garcia2003:305; Hairr Reference Hairr2011; Varona Reference Varona1980). Existe un total de tres especies del género Monachus, mismas que están distribuidas en regiones de aguas cálidas muy distantes del planeta. Datos biológicos exactos de esta especie se desconocen, ya que fue extinta aparentemente entre 1950 y 1970 debido la sobreexplotación y destrucción del hábitat por el humano en tiempos históricos y recientes (Adam Reference Adam2004; Adam y García Reference Adam and Garcia2003; Andrews Reference Andrews1984; Davies Reference Davies2008; Kenyon Reference Kenyon1977; Mangel Reference Mangel2003; Mignucci-Giannoni y Haddow Reference Mignucci-Giannoni and Haddow2001). Reportes de recientes avistamientos de focas en el área centroamericana se atribuyen muy probablemente a otras especies (Mignucci-Giannoni y Haddow Reference Mignucci-Giannoni and Haddow2001).
La foca tropical M. tropicalis representa un animal extremadamente raro en conjuntos zooarqueológicos de Mesoamérica en general y del área maya en particular, a pesar de que se había supuesto que los mayas prehispánicos la utilizaban (Andrews Reference Andrews1984:3, 5). A nivel Mesoamérica solamente se tienen los huesos aquí descritos como testimonio del aprovechamiento de esta especie por los habitantes prehispánicos. Para la costa sur del Golfo de México se conocen numerosos hallazgos arqueológicos de especímenes de Monachus tropicalis, desde las costas del este de Texas, EE.UU. en el extremo noroeste, sobre el litoral tanto del Golfo de México como del Atlántico de Florida, EE.UU., hasta Puerto Rico, las Antillas Holandeses, Saint Kitts y Nevis, y las British Virgin Islands (Adam Reference Adam2004; Adam y García Reference Adam and Garcia2003; Walker Reference Walker2005).
Los doce especímenes esqueléticos de Xcambo se encontraron incrustados en rellenos constructivos de plazas y estructuras de la parte oeste del sitio, lugar donde fueron construidas las viviendas más elaboradas del sitio y donde posiblemente habitó la gente de más alto estatus durante el clásico temprano y tardío (Sierra Sosa Reference Sierra Sosa1999). El hueso de foca de Isla Cerritos se ubicó cerca de la superficie de la estructura 23, misma que cumplió funciones domésticas en la porción noreste de la isla (Rafael Cobos, comunicación personal 2009). Por la situación de hallazgo se presume que el hueso de foca de Isla Cerritos corresponde a una ocupación muy tardía del sitio, posiblemente de fecha posclásica (Rafael Cobos, comunicación personal 2009). El hallazgo de especímenes de foca en los dos sitios costeros de la península yucateca permite esbozar una interacción entre el ser humano y estos animales. Se encontraron catorce especímenes identificados con seguridad. Los restos esqueléticos de la foca identificados con seguridad corresponden al cráneo y los huesos largos grandes de las extremidades de individuos adultos, mientras que uno de los especímenes constituiría una porción del esqueleto axial. Están, mediante la muestra, representados con seguridad dos individuos adultos de foca, uno de Isla Cerritos y uno de Xcambo. Además, un espécimen corresponde a un radio de una foca juvenil. Estos datos puramente taxonómicos y osteológicos se ven enriquecidos por la información de las huellas antrópicas encontradas en algunos especímenes, mismas que corresponden a un corte a nivel de la articulación mandibular del hueso temporal y al corte profundo a nivel de raíz en uno de los caninos sueltos encontrado en Xcambo. La frecuencia esquelética de foca en Xcambo e Isla Cerritos es demasiado baja para hacer inferencias estadísticamente válidas en el sentido estricto. Sin embargo, se pueden notar algunas particularidades al respecto de estos hallazgos.
La presencia de partes del cráneo y de huesos apendiculares podría sugerir que ciertas partes de los animales fueron, al capturarse o hallarse en la playa, separadas del cuerpo, llevándose únicamente las partes de provecho alimenticio o artefactual. Se abre la posibilidad que en este caso aplique, semejantemente a lo que reporta Walker (Reference Walker2005) de un hallazgo de restos de foca en Pineland, Florida, el llamado “efecto schlepp” (véase Blasco Sancho Reference Blasco Sancho1992:63ss.), con el que el despiece de animales grandes, considerando que focas tropicales alcanzaban un peso aproximado de 160 kg (Adam Reference Adam2004:2) y hasta 200 kg (Davies Reference Davies2008), se lleva a cabo en el sitio de caza o hallazgo. El cráneo, presumiblemente el esqueleto axial y las partes cárnicas de las extremidades se transportaron posiblemente en conjunto anatómico a los sitios.
No hay evidencia directa de que se haya consumido a la carne de la foca, pero la ubicación de sus restos en rellenos constructivos, es decir basureros secundarios de Xcambo e Isla Cerritos, difícilmente podrían explicarse de otra manera. Este dato resulta interesante, ya que dichos huesos se asocian a una parte, al menos en Xcambo, donde muy probablemente habitó la gente socioeconómicamente importante. La rareza de focas cerca de la tierra firme—no hay indicios de que los mayas prehispánicos pudieron haber navegado a los alejados arrecifes donde presumiblemente anidaban las focas o cazado focas en el agua (véase Gifford-González et al. Reference Gifford-González, Newsome, Koch, Guilderson, Snodgrass, Burton and Monks2005:26, según Lyman Reference Lyman1989 y Reference Lyman1995)—pudiera haber ocasionado que el consumo de éstas haya sido restringido a personas de la élite, tal como se menciona, en casos históricos, para grupos indígenas de la Florida (Adam Reference Adam2004:4, según Andrews Reference Andrews1984:5; Larson Reference Larson1980). La utilización de los dientes de la foca a fines ornamentales, siempre y cuando el corte en el canino suelto de Xcambo signifique esto, pudo también haber obedecido a la rareza del animal en el ambiente costero prehispánico.
De la misma manera como no sabemos a certeza si se consumió la o las focas como alimento en Xcambo e Isla Cerritos, no podemos asegurar que los animales hayan sido encontrados ya muertos en la playa—tal vez ahogado en una tormenta, como se supone para la foca de Pineland (Walker Reference Walker2005; véase también Gifford-González 2005:26)—o si fue cazada, de nuevo, porque los huesos carecieron de huellas antrópicas. Sí parece seguro el aprovechamiento únicamente ocasional, lo que correspondería a una caza oportunista de estos animales, semejantemente a lo que se ha reportado en cuanto al aprovechamiento de otras especies de focas por diferentes pueblos prehistóricos (Smith Reference Smith and Monks2005:10). De la foca tropical hawaiana (M. schauinslandi) se sabe que estos animales buscan alimento en incursiones que pueden durar varias semanas, durante el día y la noche cerca de fondos marinos de poco relieve (Baker y Johanos Reference Baker and Johanos2004:107; Mangel Reference Mangel2003:3), por lo que existe la posibilidad de que los individuos de las muestras hayan sido capturados durante una incursión en busca de alimento cerca de la costa yucateca.
Por el otro lado, también hay indicios, tanto de la foca caribeña (Adam Reference Adam2004) como de la foca hawaiana, que visitan o visitaban las playas para descansar, mudar el pelaje, dar a luz o escapar depredadores acuáticos (Mangel Reference Mangel2003:5). Para dar a luz y cuidar las crías en el primer tiempo de vida, las focas hawaianas, de las que se conocen estos datos a diferencia de la foca caribeña, frecuentan playas alejadas de depredadores con aguas poco profundas (Mangel Reference Mangel2003:5, según Westlake y Gilmartin Reference Westlake and Gilmartin1990).
Debido al hecho de que uno de los especímenes de Xcambo probablemente pertenecientes a foca corresponde a un individuo de edad juvenil (véase arriba), podría argumentarse que su existencia en este sitio, junto a los huesos de uno o varios individuos adultos, significó que se capturaron a estos animales—¿madre e hijo?—juntos durante la primavera temprana, ya que Andrews (Reference Andrews1984:7) reporta, con base en informes biológicos del siglo XIX, que la época de procreación de las focas se llevaba a cabo en invierno. No sabemos si existieron áreas específicas de anidación/crianza de focas caribeñas en tierra firme, y los únicos avistamientos de hembras preñadas se hicieron en el Arrecife Triángulo (Adam Reference Adam2004:4; Adam y García Reference Adam and Garcia2003).
Si existieron áreas de anidación en la costa de la tierra firma peninsular, éstas tuvieron que haberse ubicado en algún sitio más alejado del asentamiento de Xcambo o Isla Cerritos respectivamente, ya que Mangel (Reference Mangel2003:7) reporta, nuevamente de la especie emparentada M. schauinslandi, que aún mínimas perturbaciones del hábitat, como la ocasional presencia del ser humano en una zona, causan que las focas abandonan las zonas de visita en las playas (véase también Baker y Johanos Reference Baker and Johanos2004:106; Gifford-González et al. Reference Gifford-González, Newsome, Koch, Guilderson, Snodgrass, Burton and Monks2005:26; Kenyon Reference Kenyon1972). Otra razón por la que las áreas de anidación, si bien existieron en tierra firme, tuvieron que haber estado lejos de los asentamientos se basa en la frecuente presencia de perros, mismos que al menos hoy día transitan aún fuera de los límites de los sitios, habiendo posiblemente representado un depredador de potencial peligro para crías de focas. El único sitio costero con una muy baja frecuencia de restos de perros es Isla Cerritos y éste, aún no aporta huesos de focas de edad juvenil. Aún así puede suponerse que las focas se acercaban, con o sin crías, al estuario costero peninsular. En la cercanía del pueblo yucateco actual de Sisal hay reportes de un pequeño islote de nombre petén tsulá, lo que se traduce como ‘isla de foca,' indicando quizás que estos animales frecuentaban sus orillas (Anthony Andrews, comunicación personal 2011; Hairr Reference Hairr2011:21).
Las focas nunca jugaron un papel importante en la dieta de los pobladores prehispánicos, ni en Mesoamérica ni en el sur de los EE.UU. El hábitat de estos animales alejado del alcance prehispánico, principalmente en islas y arrecifes lejanos de tierra firme (Adam Reference Adam2004; Adam y García Reference Adam and Garcia2003; Andrews Reference Andrews1984:4–5) fue aparentemente protección suficiente contra una depredación severa (véase también a Smith Reference Smith and Monks2005), en tiempos en los que la navegación aún no permitía pescar en alta mar. El cambio drástico en cuanto al aprovechamiento de estas focas y otras especies de focas en diferentes partes del mundo, tuvo lugar a partir de la colonización europea (Smith Reference Smith and Monks2005:11). El hecho de que especímenes arqueológicos de esta especie se asocian a restos materiales de personas de estatus elevado es posiblemente una respuesta a la rareza de estos animales, en donde el consumo como también el uso de trofeos y ornamentos estaba restringido a los que hubieran tenido el poder de reclamarlos.
CONCLUSIONES
Podemos concluir varios puntos en cuanto a la interacción entre los habitantes humanos de los sitios costeros de Isla Cerritos e Xcambo y su entorno natural, visto a través de los materiales arqueofaunístcos. En principio se mostró que los ocupantes de ambos asentamientos se alimentaban de una amplia gama de animales, misma que incluye miembros de todos los órdenes de animales vertebrados, como peces, reptiles, aves y mamíferos. La obtención de esta gran variedad de animales vertebrados, al parecer exclusivamente en las aguas cercanas al litoral yucateco, fue posible gracias a la riqueza y gran biodiversidad del ambiente natural mencionado, y es de suponer que dicha riqueza en recursos naturales haya posibilitado el asentamiento en la zona costera y el sustento con base en las áreas cercanas. Sin embargo, se pudo notar también que la riqueza de recursos faunísticos marinos aparentemente no reemplazó fuentes cárnicas de animales tierras adentro, mismas que se manifiestan, si bien a pequeña escala, en las muestras costeras de Xcambo e Isla Cerritos, pudiendo representar bienes de intercambio traídos desde tierra adentro.
Un punto importante en cuanto a los sitios de Isla Cerritos e Xcambo es la continuidad de los perfiles taxónómicos, considerando que ambos sitios, y las muestras procedentes de éstos, fechan de continuos períodos, desde el clásico temprano hasta el clásico terminal. Se evidencia entonces que los métodos de obtención de animales marítimos, así como la biodiversidad costera yucateca, no debieron haber sido sujetos a fuertes cambios entre el 250 d.C. y el 1100 d.C., ya que las muestras revelan en grandes medidas una semejanza y continuidad taxónómica y osteológica.
Un animal poco aprovechado, pero de gran importancia para la investigación de las zonas litorales prehispánicas, es la foca tropical (Monachus tropicalis). De esta foca se encontraron restos tanto en Isla Cerritos como en Xcambo, y se evidenció que los mayas prehispánicos utilizaron estos animales, cuando pudieron conseguirlos, a fines artefactuales y muy probablemente también culinarios.
Podemos concluir este trabajo con una visión al pasado inmediato y al futuro. Las investigaciones zooarqueológicas en sitios prehispánicos costeros han, en los últimos años, enriquecido nuestra visión acerca del desenvolvimiento de la cultura maya prehispánica en su entorno natural. Nuevas y cada vez más detalladas excavaciones, combinadas con nuevos descubrimientos resultaron en un entendimiento más claro acerca del aprovechamiento de fauna y también del impacto que estos asentamientos produjeron (o no) en el ambiente costero, hace más de 1000 años. Sin embargo, aún faltan muchos detalles por investigar, refiérase esto al detallado análisis de las redes tróficas en tiempos prehispánicos en relación a la ocupación humana, o bien, a las reminiscencias físicas de ocupación de focas en el entorno. Se espera que futuros proyectos, tanto arqueológicos como propiamente zooarqueológicos, puedan intentar acercarse a estas problemáticas, buscando soluciones para estas importantes e interesantes interrogantes.
SUMMARY
Recent archaeological explorations at the northern coast of the Yucatan peninsula of Mexico have generated new information about the interaction between humans and animals in pre-Hispanic times. In this paper we want to discuss the faunal use patterns followed by the prehispanic settlers of the above mentioned coastal zone, based on two zooarchaeological samples corresponding to the sites of Isla Cerritos and Xcambo respectively, both located in the Mexican State of Yucatan and belonging to the prehispanic Maya culture. The joint discussion of the use as shown through two samples is motivated on the first hand by the relative closeness of both sites, and secondly, because the two coastal settlements are chronologically continuous and allow thus to outline the development of precolumbian faunal use in the given area for a time span of approximately 850 years.
An important part of the paper is dedicated to describing the finds of a now-extinct mammal species, identified between the faunal materials, the Caribbean monk seal (Monachus tropicalis). The specimens constitute the only finds of this type related to prehispanic cultural reminiscences in Mesoamerica up to the date. For this reason, the finds are of particular interest, because for more than 20 years the use of those animals by the Maya culture had been supposed, without sustenance in material finds. The find of bones of this species in archaeological contexts allows us now to affirm the hypothesis, showing that these animals were used, though on a small scale, by of the prehispanic coastal occupants of the region.
AGRADECIMIENTOS
Queremos agradecer a Traci Ardren y Alejandra Alonso por la invitación a formar parte de esta publicación. Una parte importante de los agradecimientos van a los directores de los dos proyectos arqueológicos, a la Dra. Thelma Sierra Sosa (CRY INAH, Proyecto Arqueológico Xcambo) y al Dr. Rafael Cobos (FCA UADY, Proyecto Arqueológico Isla Cerritos), quienes amablemente facilitaron los materiales esqueléticos de su respectivo sitio para el análisis zooarqueológico en el Taller de Zooarqueología de la Facultad de Ciencias Antropológicas de la Universidad Autónoma de Yucatan y proporcionaron además muy valiosa información acerca de los sitios y contextos. Imágenes de fémur y húmero de foca tropical fueron facilitadas por Jim Thomason, National Marine Mammal Laboratory, Alaska Fisheries Science Center, NMFS y por Carol E. Colaninno, Department of Anthropology, University of Georgia, mientras que Peter Adam, Department of Biology, North West Missouri State University, Maryville, Missouri, fue de mucha ayuda en cuanto a la identificación del radio y maxilar de foca, con la descripción de rasgos diagnósticos de especímenes de esta especie en el año 2006. Agradecemos igualmente el apoyo de David A. Herrera Flores, quien estudió una parte importante de los ecofactos esqueléticos de Isla Cerritos, así como de Sandra I. Castillo Yam y de Nayeli G. Jiménez Cano, quienes estudiaron muestras arqueofaunísticas de Xcambo. Noris A. Vargas Garcíaguirre, Eduardo A. Chávez Lizama y Lesly A. Rodríguez Moo midieron los huesos de foca. Last but not least, agradecemos a los Dres. Anthony P. Andrews, Kitty F. Emery y un a dictaminador anónimo por los comentarios sumamente útiles al respecto de este artículo. Cualquier error contenido en estas líneas, sin embargo, será asumido por el autor de este artículo.