Introducción
La leche contiene seis proteínas principales de las cuales se conocen cuatro tipos de caseínas (representan un 80% del total de proteínas lácteas) y dos tipos de proteínas del suero (representantes del 20% restantes) (Swaisgood, Reference Swaisgood and Fox1992). A nivel molecular se han determinado seis variantes alélicas del gen kappa caseína (CSN3) de carácter codominante, codificadas por genes autosómicos (Formaggioni et al., Reference Formaggioni, Summer, Malacarne and Mariani1999; Threadgill and Womack, Reference Threadgill and Womack1990); el genotipo BB del gen CSN3 está relacionado con mejor aptitud de la leche para la producción de queso, asociándose con las características del cuajo (mayor firmeza, menor tiempo de formación), incrementando el rendimiento en la producción de queso (Ng-Kwai-Hang, Reference Ng-Kwai-Hang1998).
Por otro lado, las proteínas del suero son aquellas que permanecen en disolución tras la precipitación ácida de las caseínas y coagulación enzimática; entre éstas, las beta lactoglobulinas (BLG) están controladas cada una por un único locus en genes autosómicos y se han reportado 12 variantes alélicas para este gen, siendo A y B las variantes más frecuentes en los bovinos domésticos (Grosclaude, Reference Grosclaude1988). En algunas razas bovinas se ha evidenciado un efecto de los alelos del gen BLG sobre la composición de la leche y por ende sus propiedades de procesamiento, incluyendo el rendimiento quesero (Sabour et al., Reference Sabour, Lin, Keough, Mechanda and Lee1993; Ripoli et al., Reference Ripoli, Corva, Antonini, De Luca, Rojas, Dulout and Giovambattista2003): el alelo A de este gen (BLGA) está relacionado con una mayor producción de leche y proteína, mientras que el alelo B (BLGB) se asocia con un alto porcentaje de grasa (Bobe et al., Reference Bobe, Beitz, Freeman and Lindberg1999; Ikonen et al., Reference Ikonen, Ojala and Ruottinen1999) y un mayor rendimiento quesero al elevar la síntesis de caseínas sobre las proteínas del lacto suero (Bobe et al., Reference Bobe, Beitz, Freeman and Lindberg1999; Lunden et al., Reference Lunden, Nilsson and Janson1997).
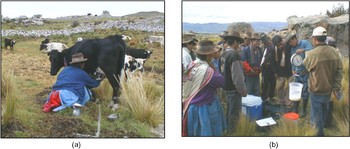
En el Perú el bovino criollo (“chusco”), adaptado a los diversos ecosistemas, cumple un rol importante en la vida de las comunidades altoandinas (Figura 1); es fuente de proteínas, fuerza de trabajo y cotidianamente en estas comunidades se vende el queso producido de forma artesanal, (Rivas et al., Reference Rivas, Veli, Aquino, Rivas, Pastor and Estrada2007). En los bovinos criollos los trabajos de caracterización molecular de proteínas lácteas son escasos (Veli et al., Reference Veli, Rivas, Rivas, Gutiérrez, Pastor and Altamirano2004) y en ausencia de programas de selección y mejora para este recurso zoogenético naturalizado, se está perdiendo el potencial que significa sus adaptaciones locales y facilidad para aprovechar mejor los recursos presentes en los ecosistemas a los cuales se ha adaptado (Rivas et al., Reference Rivas, Veli, Aquino, Rivas, Pastor and Estrada2007).
Actividades de pobladores de una comunidad altoandina con bovinos criollos: (a) Ordeño de vaca criolla por método manual en un corral de piedras; (b) Pobladores realizando el control de producción lechera de sus vacas criollas.

En el marco de las actividades de investigación y caracterización de recursos zoogenéticos de la Subdirección de Recursos Genéticos y Biotecnología (SUDIRGEB) del INIA, se identificaron animales criollos en cuatro comunidades de Junín. Presentamos los resultados del genotipado de 108 bovinos criollos para dos proteínas lácteas (kappa caseínas y beta lactoglobulinas), usando la técnica molecular PCR-RFLP.
Materiales y Métodos
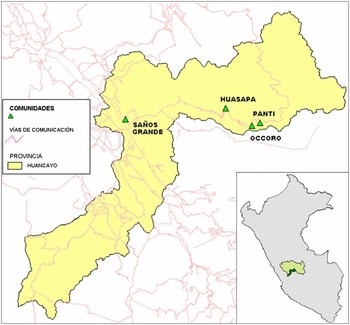
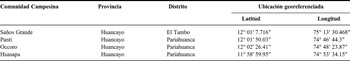
Se colectaron muestras de sangre periférica (vena caudal) de 108 bovinos criollos de las comunidades campesinas (CC) de Saños Grande (16), Panti (29), Occoro (28) y Huasapa (35), donde se manejan de forma tradicional (Figura 1). En la Figura 2 se muestra el mapa de las zonas de colecta y en la Tabla 1 los datos de ubicación geográfica.
Ubicación georeferenciada de las zonas de muestreo de bovinos criollo de Junín, Perú.

Ubicación georeferenciada de las zonas de muestreo en las comunidades campesinas de Junín, Perú.

Genotipado de proteínas lácteas
El material colectado fue procesado en el Laboratorio de Biología Molecular de la SUDIRGEB–INIA. Se extrajo el ADN a partir de linfocitos aislados de muestras de sangre entera con el protocolo de Veli et al. (Reference Veli, Rivas, Rivas, Gutiérrez, Pastor and Altamirano2004). La amplificación de ADN y la digestión del producto amplificado, para la determinación de los genotipos de CSN3 y BLG, se realizaron usando el protocolo descrito por Poli y Medrano (Reference Poli and Medrano1997).
Kappa caseínas (CSN3)
Para la amplificación del gen CSN3 se utilizaron los primers JK3 y JK5; los amplicones fueron digeridos con la endonucleasa de restricción HinfI (Fermentas). La reacción estándar de PCR de volumen final 25 µL en tubos 0,2 mL contenía 2 µL de ADN (40 ng/µL) y mezcla de reacción compuesta por: 2,5 µL buffer 10X, 1,5 µL MgCl2 (25 mM), 0,125 µL Taq polimerasa (5 U/µL), 2,5 µL dNTPs (1 mM), 0,25 µL de cada primer (10 µM) y H2O libre de nucleasas. Las condiciones de PCR fueron: una fase de desnaturalización de 94 °C por 3 minutos; 35 ciclos de 94 °C por 45 segundos, 60 °C por 60 segundos y 72 °C por 60 segundos (termociclador MJ Research PTC-200). La mezcla de digestión enzimática del producto amplificado se incubó por 2 horas a 37 °C y estuvo compuesta por: 15 µL de ADN amplificado, 0,6 µL de HinfI (10 U/µL), 2,25 µL de Buffer R y 4,65 µL de H2O libre de nucleasas.
Beta lactoglobulinas (BLG)
Para la amplificación gen BLG se utilizaron los primers BLGP3 y BLGP4; los amplicones fueron digeridos con la endonucleasa de HaeIII. La reacción estándar de PCR de volumen final 25 µL en tubos 0,2 mL contenía 2 µL de ADN (40 ng/µL) y mezcla de reacción compuesta por: 2,5 µL buffer 10X, 1,5 µL MgCl2 (25 mM), 0,125 µL Taq polimerasa (5 U/µL), 2,5 µL dNTPs (1 mM), 0,75 µL de cada primer (10 µM) y H2O libre de nucleasas. Las condiciones de PCR fueron: una fase de desnaturalización de 94 °C por 3 minutos; 35 ciclos de 94 °C por 45 segundos, 60 °C por 60 segundos y 72 °C por 60 segundos (termociclador MJ Research PTC-200). La mezcla de digestión enzimática del producto amplificado se incubó por 2 horas a 37 °C y estuvo compuesta por: 15 µL ADN amplificado, 0,36 µL de HaeIII (10 U/µL), 2,25 µL de Buffer R y 4,65 µL de H2O libre de nucleasas.
Electroforesis de los fragmentos de restricción
Los fragmentos digeridos con las enzimas de restricción, en ambos casos, fueron separados por electroforesis en gel de agarosa al 3% y visualizados en un transiluminador UV. La lectura de geles se realizó calculando el tamaño de alelos tomando como referencia la migración de fragmentos de un marcador de 50 pb (Fermentas).
Análisis estadístico
Para el análisis estadístico de la variabilidad genética se calcularon frecuencias alélicas y genotípicas y el equilibrio de Hardy–Weinberg (H-W) utilizando el software GenAlex v6.2 (Peakall & Smouse, Reference Peakall and Smouse2006).
Resultados y discusión
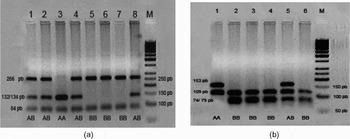
En las kappa caseínas, el producto amplificado y digerido con la endonucleasa de restricción HinfI generó tres fragmentos: uno de 266 y 84 pb (presente en alelo CSN3B), otro de 132/134 y 84 pb (presentes en el alelo CSN3A) y en la variante heterocigoto los fragmentos de 266, 132/134 y 84 pb (Figura 3a). En las beta lactoglobulinas, el producto amplificado y digerido con la endonucleasa de restricción HaeIII generó tres fragmentos: uno de 109 y 74/79 pb (presentes en el alelo BLGB), otro de 153 y 109 pb (presentes en el alelo BLGA) y en la variante heterocigoto los fragmentos 153, 109 y 74/79 pb (Figura 3b).
Variantes alélicas para los genes de kappa caseína (a) y beta lactoglobulina (b) en geles de agarosa.

Kappa caseínas
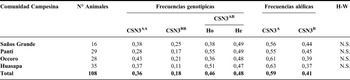
En la Tabla 2 se muestran los valores de heterocigosidad, frecuencias genotípicas y alélicas para el gen CSN3 encontrados en las poblaciones de bovinos criollos de Junín. La heterocigosidad observada (Ho) en la población total fue del 0,46; en la comunidad de Panti se encontró la mayor Ho (0,55), mientras que en Occoro se encontró una menor Ho (0,36).
Heterocigosidad, frecuencias genotípicas y alélicas del gen CSN3 en bovinos criollos de Junín, Perú.

N.S. = no significativo; * = p < 0,05; ** = p < 0,01; *** = p < 0,001
En relación a las frecuencias genotípicas en la población total, se encontró mayor frecuencia de heterocigotos (CSN3AB = 046); la frecuencia de homocigotos CSN3AA fue mayor con respecto a los homocigotos CSN3BB (0,36 y 0,18, respectivamente); sin embargo, las poblaciones de bovinos criollos se encontraron en equilibrio H-W.
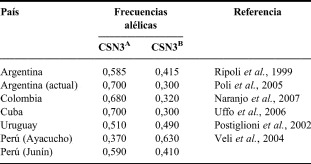
En cuanto a las frecuencias alélicas, en la población total la frecuencia del alelo CSN3A fue mayor (0,59) con respecto a la del alelo CSN3B (0,41). A nivel de comunidades, las frecuencias del alelo CSN3A en Huasapa y Occoro fueron similares (0,63 y 0,61, respectivamente) y superiores a las poblaciones de Panti y Saños Grande (0,55 y 0,56, respectivamente). En la Tabla 3, se muestran las frecuencias alélicas para el gen CSN3 en otras poblaciones de bovinos criollos. Las frecuencias alélicas encontradas en la población de Junín, Perú, fueron similares a las reportadas por Ripoli et al. (Reference Ripoli, Giovambattista, De Luca, Labarta, Echenique, Casas, Carrizo, Sánchez Mera and Dulout1999) para los bovinos criollos Argentinos. Sin embargo, Poli et al. (Reference Poli, Holgado and Rabasa2005) reportan un incremento en las frecuencias del alelo CSN3A para las poblaciones actuales de bovinos criollos de Argentina, coincidiendo con las frecuencias de los bovinos criollos de Cuba (Uffo et al., Reference Uffo, Martín-Burriel, Martínez, Ronda, Osta, Rodellar and Zaragoza2006) y Colombia (Naranjo et al., Reference Naranjo, Posso, Cárdenas and Muñoz2007). La frecuencia del alelo CSN3B en la población estudiada resultó superior a las frecuencias reportadas en los criollos de Argentina (Ripoli et al., Reference Ripoli, Giovambattista, De Luca, Labarta, Echenique, Casas, Carrizo, Sánchez Mera and Dulout1999; Ripoli et al., Reference Poli, Holgado and Rabasa2005), Colombia (Naranjo et al., Reference Naranjo, Posso, Cárdenas and Muñoz2007) y Cuba (Uffo et al., Reference Uffo, Martín-Burriel, Martínez, Ronda, Osta, Rodellar and Zaragoza2006); pero inferiores a las reportadas en la población de bovinos criollos de Ayacucho, Perú (0,63) (Veli et al., Reference Veli, Rivas, Rivas, Gutiérrez, Pastor and Altamirano2004) y del Uruguay (0,49) (Postiglioni et al., Reference Postiglioni, Rincón, Nelly, Llambi, Fernández, D'Angelo, Gagliardi, Trujillo, de Bethencourt, Guevara, Castellano and Arruga2002). Sería interesante y de utilidad para sentar las bases de un programa de selección de animales asistida por marcadores moleculares, correlacionar la información productiva de los animales portadores del alelo CSNB dirigida a mejorar la aptitud de la leche para la producción de queso.
Frecuencias alélicas para el gen CSN3 en diversas poblaciones de vacunos criollos.

Beta lactoglobulinas
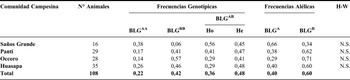
En la Tabla 4 se muestran los valores de heterocigosidad, frecuencias genotípicas y alélicas para el gen BLG encontradas en las poblaciones de bovinos criollos de Junín. En la población total, la Ho fue de 0,36. A nivel de comunidades, en Saños Grande se encontró mayor Ho (0,56) mientras que ésta fue menor para Occoro y Huasapa (0,29 para ambas comunidades).
Heterocigosidad, frecuencias genotípicas y alélicas del gen BLG en bovinos criollos de Junín, Perú.

N.S. = no significativo; * = p < 0,05; ** = p < 0,01; *** = p < 0,001
La frecuencia genotípica en la población total resultó mayor para los homocigotos BLGBB (0,42), seguida de los heterocigotos BLGAB (0,36) y homocigotos BLGAA (0,22). A nivel de comunidades, Occoro mostró la menor frecuencia de homocigotos BLGAA (0,14), mientras que en Saños Grande la frecuencia de este mismo alelo fue mayor (0,38). La frecuencia de homocigotos BLGBB en Saños Grande fue menor (0,06) y en Occoro resultó mayor (0,57). De las cuatro poblaciones de bovinos criollos estudiadas, la de Huasapa no se encontró en equilibrio H-W.
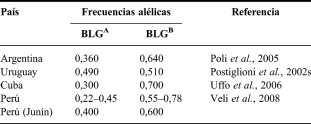
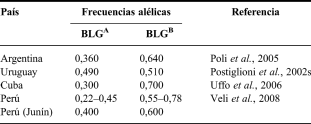
Respecto a las frecuencias alélicas, en la población total se encontró que la frecuencia del alelo BLGB (0,6) fue mayor que el alelo BLGA (0,40); a nivel de comunidades, Saños Grande presentó una mayor frecuencia para BLGA (0,66), mientras que Occoro mostró una mayor frecuencia para BLGB (0,71). En la Tabla 5 se muestran las frecuencias alélicas para el gen BLG en otras poblaciones de bovinos criollos. Las frecuencias alélicas para el gen BLG en la población bovina de Junín resultaron cercanas a las reportadas por Poli et al. (Reference Poli, Holgado and Rabasa2005) en los bovinos criollos de Argentina y por Veli et al. (Reference Veli, Rivas Seoane, Rivas Palma, Aquino and Estrada2008) en bovinos criollos de tres regiones del Perú; la población de criollos de Cuba (Uffo et al., Reference Uffo, Martín-Burriel, Martínez, Ronda, Osta, Rodellar and Zaragoza2006) muestra la mayor frecuencia del alelo BLGB, mientras que en los bovinos criollos de Uruguay (Postiglioni et al., Reference Postiglioni, Rincón, Nelly, Llambi, Fernández, D'Angelo, Gagliardi, Trujillo, de Bethencourt, Guevara, Castellano and Arruga2002) ambos alelos están en proporciones semejantes.
Frecuencias alélicas para el gen BLG en diversas poblaciones de bovinos criollos.
Resumen de los resultados
En las poblaciones de bovinos criollos de las comunidades andinas de Saños Grande, Panti, Occoro y Huasapa (Junín) se encontraron polimorfismos para los genes de kappa caseínas y beta lactoglobulinas. En las kappa caseínas se detectaron los fragmentos 132/134 y 84 pb correspondientes al alelo CSN3A y fragmentos de 266 y 84 pb correspondientes al alelo CSN3B. En las beta lactoglobulinas se detectaron los fragmentos 153 y 109 pb correspondientes al alelo BLGA y los fragmentos 109 y 74/79 pb correspondientes al alelo BLGB. A nivel de comunidades, Huasapa y Occoro mostraron frecuencias para CSN3A similares entre si pero mayores a Panti y Saños Grande, similitud que puede estar relacionada con la cercanía entre estas comunidades. Las frecuencias alélicas para BLGB resultaron similares en las poblaciones de Panti, Occoro y Huasapa; pero muy superiores a las de Saños Grande. Esto puede atribuirse al flujo de genes provenientes por cruzas con razas mejoradas en Saños Grande, debido a su cercanía a la capital de la provincia de Huancayo-Junín. Se confirma la presencia del alelo CSN3B en frecuencias superiores a 0,37 y del alelo BLGB con frecuencias superiores a 0,34 en las poblaciones de bovinos criollos de Junín. Se recomienda correlacionar esta información con datos productivos de las vacas criollas a fin de evidenciar algún efecto sobre la composición lechera y asociarla con el rendimiento quesero, lo que permitirá seleccionar animales para realizar mejoramiento genético para el carácter rendimiento quesero.